

en la genética del dimorfismo sexual y el
Introducción No estarías leyendo este artículo si no te fascinasen las aves, sus diferentes colores, la intensidad de los mismos o sus patrones de coloración. La diferencia entre sexos, especies, edades o individuos atraen la atención de muchos de nosotros. Se han ido caracterizando poco a poco que composición química tienen estos colores, pero, sin embargo, muchos de los caracteres genéticos que los controlan siguen aún por descubrir.
El canario de color se empieza a usar como organismo modelo de este tipo de exploraciones debido al gran número de variedades de color que acumula después de cientos de años de selección. Las modernas técnicas de secuenciación están ayudando a acelerar estos descubrimientos.
En un anterior artículo publicado en el número 88 (1) de esta misma revista se detalló el papel de un citocromo P450, CYP2J19, en la adquisición de la coloración roja en los canarios tras los cruces con el Cardenalito de Venezuela.
En otro artículo posterior, publicado en el número 89 de esta misma revista se detalló el papel clave que la proteína SCARB1 desempeña en la fijación de carotenoides en los tejidos y por tanto en la ausencia o presencia de lipocromos que conducen al blanco recesivo (2).
En este artículo se revisarán los últimos
Texto: Francisco Manuel Reyes Sosa
Fotos: Álvaro Blasina
avances científicos relacionados con la proteína BCO2, una enzima clave en la regulación del lipocromo presente en el plumaje de nuestros canarios.
Genética para andar por el aviario Antes de empezar a comentar a repasar estos nuevos avances merece la pena recordar algunos conceptos de genética que ayudarán a la comprensión del artículo. Existen muy buenos manuales de genética e incluso manuales de genética aplicados a ornitología deportiva que servirán para profundizar en estos conceptos (3).
Dentro del núcleo de las células de nuestros canarios se encuentra su ADN. El ADN es el manual de instrucciones, la molécula de la herencia, donde se escribe como desde la fecundación se llega a un individuo adulto, como este individuo va a reaccionar con el ambiente, su comportamiento, etc etc. En esta molécula se encuentra la información codificada en 80 fascículos (así podríamos llamar a los cromosomas), donde 40 fascículos provienen de la madre y los restantes 40 del padre. El conjunto de los 80 fascículos se conoce como genoma. Dentro de estos fascículos se encuentra la información escrita en capítulos y versículos, como si de una biblia se tratase. Cada uno de estos versículos (así podríamos llamar a un gen) ocupa una página, un párrafo y una línea determinada dentro del fascículo (lo que se reconoce como locus).
Cada ejemplar dispone para la mayoría de esta información de dos copias de un gen, colocadas en el mismo locus de cromosomas homólogos. En caso de que las dos copias contengan la misma versión de un gen se conocen como individuos homocigotos para ese gen o carácter mientras que en el caso que las dos copias del versículo sean diferentes se conocen como heterocigotos. Una excepción particular son genes en los cromosomas sexuales, digamos que son los únicos fascículos que son diferente entre los machos y las hembras, ya que contienen diferente información, pero no entraremos hoy en ello. También dejaremos a un lado, por no complicar, los últimos avances en citogenética, ya que como recientemente se puede leer en el número 101 de esta
Urucum mosaico
revista (4), se ha encontrado un cromosoma extra restringido a células germinales, de proveniencia exclusivamente materna.
Estos genes, digamos en duplicado, acaban definiendo todos los caracteres y no solo fenotípicos sino como hemos dicho etológicos o comportamentales. Químicamente son ácido desoxirribonucleico, y la información se guarda en ellos por un código (código genético) universal compuesto por solo 4 letras. Estas 4 letras se combinan de 3 en 3 en palabras (codones). En total existen 64 palabras posibles. Salvo una palabra que marca el inicio de la frase del versículo y varias palabras que marcan el final del mismo, el resto de las mismas codifican un aminoácido. En total hay 20 aminoácidos,
Urucum mosaico
luego existen varias palabras que “significan” o se traducen en un mismo aminoácido (código degenerado). Es un poco complejo de explicar, pero a la vez un idioma muy simple para todo lo que viene después. Desde el ADN a las proteínas dejo en medio otros muchos procesos biológicos que no son útiles por ahora para la comprensión de este artículo. Tenemos entonces que la mayor parte de las veces los genes (versículos) acaban siendo traducidos a una secuencia de aminoácidos. Estas secuencias de aminoácidos son las proteínas y ellas son las moléculas funcionales que acaban ejecutando la información que estaba encriptada en el ADN. Algunas de estas proteínas son estructurales, sirven de estructura, como el caso de la queratina de pico y uñas y otras son catalizadores de reacciones químicas, las enzimas. Ejemplos de enzimas son el citocromo CYP2J19 responsable que el canario pueda tener coloración roja o la enzima SCARB1 que se encarga de fijar los carotenoides en los tejidos y que en cuya ausencia se obtiene el fenotipo blanco recesivo.
Espero que esta introducción sea comprensible y suficiente para comprender el resto del artículo.
Nuevos avances científicos en la genética del factor mosaico
El dimorfismo o dicromatismo sexual es la diferenciación fenotípica entre sexos que tienen los individuos de una misma especie. Se trata de una cualidad muy extendida en muchas especies en la naturaleza. En muchas especies de pájaros el dimorfismo es tan aparente que parecería que ambos sexos son diferente especies.
Como ha evolucionado, ha atraído la atención y la discusión científica durante muchos años. Al propio Darwin, la capacidad de algunos machos generar fenotipos muy llamativos sirvió de inspiración para su teoría de la selección sexual (5). Darwin consideraba acertadamente que el dimorfismo sexual es fruto de la selección de los machos por sus hembras ya que ellas relacionan el fenotipo como una señal de fortaleza y vigor (6,7). Adicionalmente, el dimorfismo podría surgir de la selección para el camuflaje por parte de las hembras (8). Probablemente ambos criterios sean correctos y operen al mismo tiempo y sobre ambos sexos. Pero siguen faltando evidencias genéticas a estas observaciones para conocer el mecanismo que subyace y su regulación (9, 10).
En los pájaros el dimorfismo sexual ha evolucionado muy rápidamente, con múltiples diferencias incluso entre especies cercanas (9), y se basan principalmente en modificaciones de lo que nosotros llamamos lipocromos y los científicos extienden al concepto general de carotenoides (11). Ya sean rojos o amarillos, el lipocromo se ha considerado como una señal de la condición general del individuo, aunque como funciona esto aún está por conocerse (12).
Muchos trabajos científicos (13) han tratado de explicar estos rasgos ligados al sexo. De cómo los carotenoides se procesan y depositan en los tejidos y como el sexo determina estos procesos sigue teniendo más sombras que luces. Desde un punto de vista molecular y genético se conoce poco o muy poco sobre cómo se explican los cambios fenotípicos entre individuos de la misma especie y que tienen por tanto genomas (lo que antes llamábamos colección de fascículos) casi idénticos (14).
Recientemente se ha publicado un artículo en la prestigiosa revista Science donde se estudia el papel de una región del genoma que contiene el gen BCO2 en el dimorfismo sexual del canario (15).
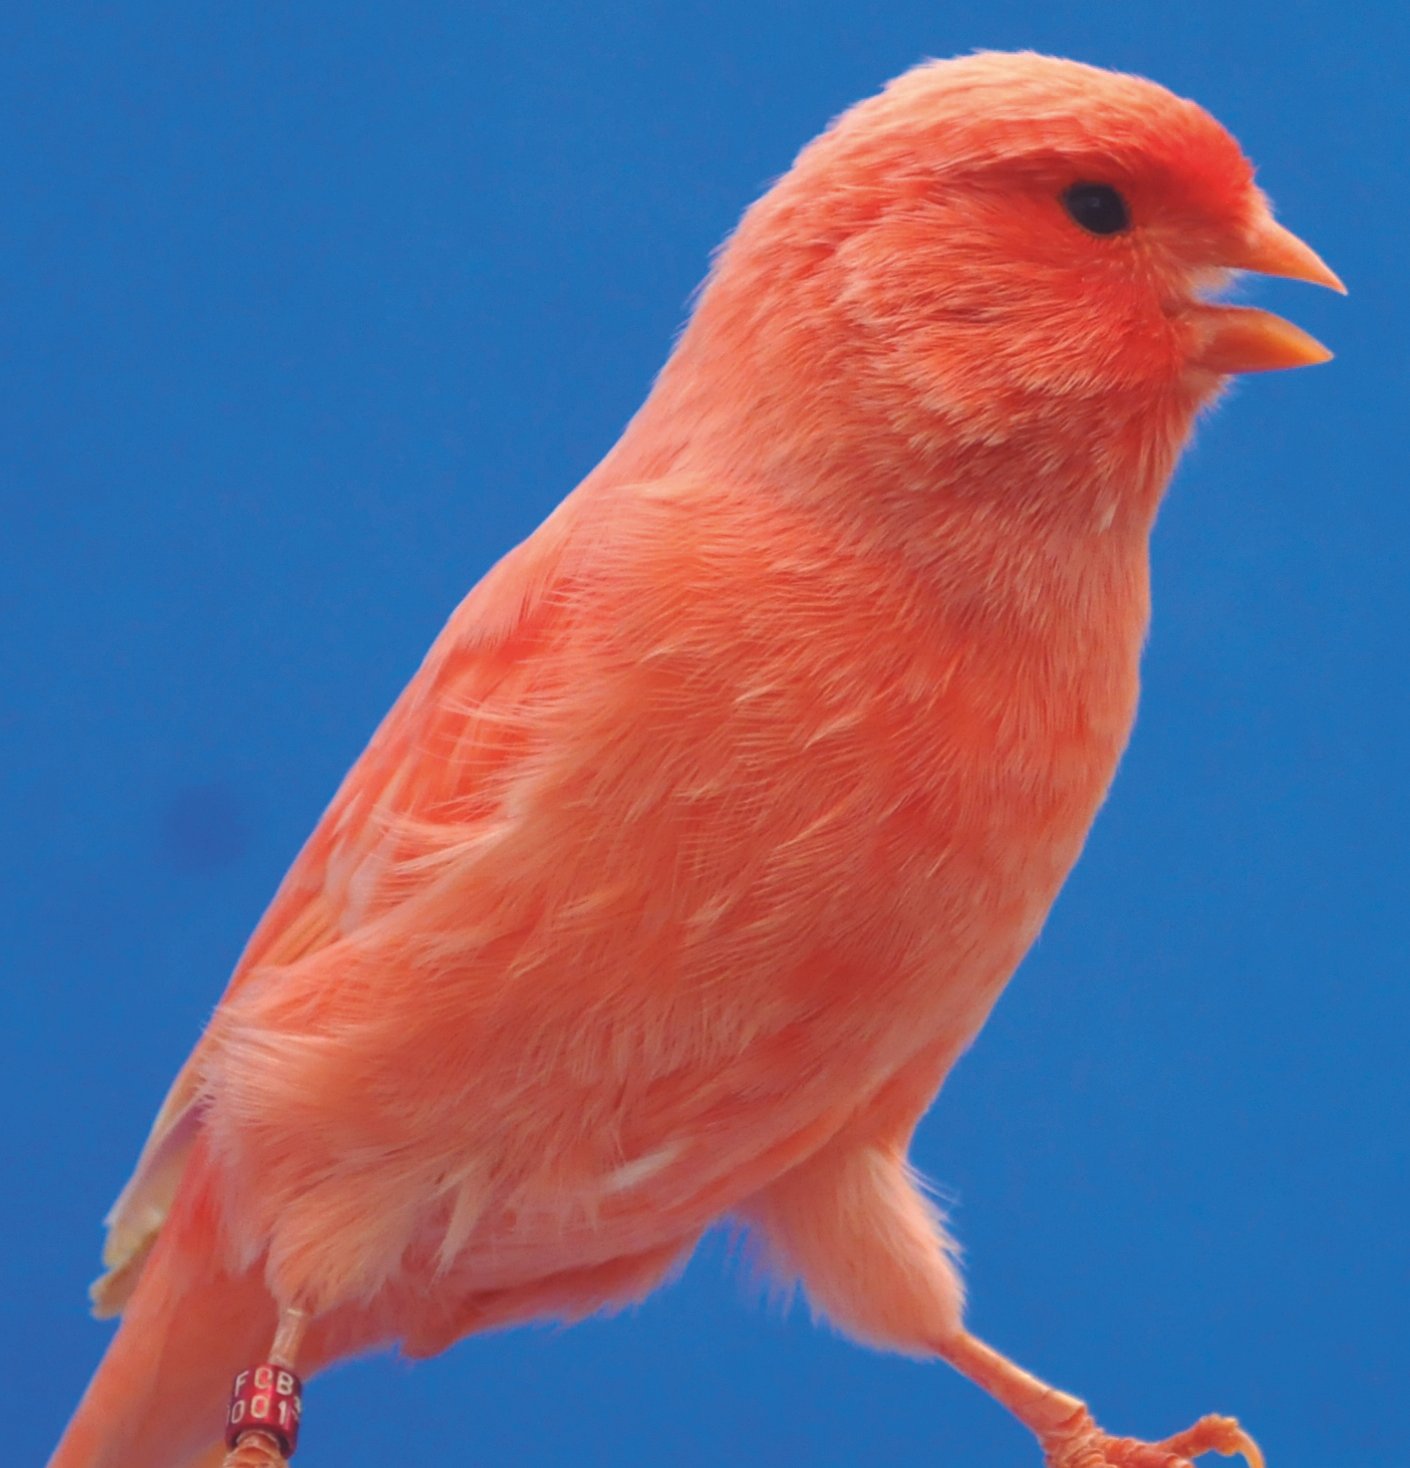
Los canarios mosaicos pueden ser amarillos o rojos, aunque incluso me atrevería a citar también los blancos. Estos últimos son evidentes en variedades como los phaeos pero vamos a centrar el artículo en los lipocromos y los phaeos blancos serán objeto de otros estudios relacionados con la librea melánica (feomelánica). Los canarios mosaicos machos se distinguen de las hembras por una mayor cantidad de lipocromo, particularmente en la máscara.
Los investigadores autores de estos estudios son portugueses y estadounidenses de las Universidades de Oporto, Coimbra, Tulsa y Aurburn. El trabajo desarrollado comienza con varias hipótesis y pistas a seguir. Por un lado, se reconoce que el dimorfismo sexual está relacionado con la hibridación con el cardenalito de Venezuela (1). Esta pista ha ayudado a los investigadores a reducir las zonas del genoma a analizar, centrándose en las regiones que se incorporaron al genoma del canario fruto de la hibridación.
Otra pista es que, si se considera que el fenotipo mosaico es recesivo con respecto al ancestral, los ejemplares mosaicos debieran ser homocigotos para esa región que deriva del cardenalito.
Por otro lado, las variedades mosaicas son gamas muy establecidas, y los individuos machos y hembras, hermanos o progenitores e hijos tienen un genoma similar y mostrarán diferencias en regiones que estén relacionadas con el fenotipo mosaico con respecto a variedades no mosaicas.
Pues bien, analizando la secuencia del genoma del canario heredada del cruce con el cardenalito, se ha identificado una región asociada con el dimorfismo sexual. Para afinar aún más en su búsqueda y caracterización, se estudiaron los patrones de expresión de los genes de esta región. Los patrones de dimorfismo se generan por diferencias en la expresión de genes durante el desarrollo, la mayoría de ellas controladas por hormonas sexuales tales como estrógeno y testosterona.
Después de este trabajo los autores han identificado un único gen en esta región de interés que se expresa diferencialmente en las plumas de machos y hembras, es el gen BCO2. Esta enzima se encarga de romper y reducir el tamaño de los carotenos hasta convertirlos en apocarotenoides como por ejemplo la vitamina A (retinol y ácido retinoico, etc.). Esta enzima por tanto muestra menor actividad en las zonas de elección, donde carotenoides se muestran en la librea. En el resto del pájaro, la enzima se sobreexpresa y actúa oxidándolos (podemos decir degradándolos) dejando únicamente color blanco.
Esto ocurre diferencialmente en machos y hembras lo que demuestra que las diferencias fenotípicas entre sexos se originan por la regulación diferencial de este único gen.
Se conocía que este gen estaba relacionado también con la concentración de carotenoides en ovejas, vacas y otras aves (14). De acuerdo con estos estudios previos, los científicos han demostrado que la proteína BCO2 se expresa activamente fuera de las zonas de elección lo que acaba dando lugar a plumas blancas.
La conclusión es clara, el patrón del mosaico se debe a la regulación de este gen mediada por el sexo del individuo. El dimorfismo sexual no se debe a diferencias en la deposición de los carotenos, sino en su diferente degradación en las distintas zonas de la librea del canario mediante la actividad de la proteína BCO2.
Estos estudios abren una línea de investigación aplicable a otras especies. De hecho, en el mismo estudio se analiza también los patrones de expresión de esta proteína en otras dos especies, el verdecillo, chamariz o gafarrón (Serinus serinus) y el camachuelo o carpodaco mexicano (Haemorhous mexicanus). Los patrones de expresión del verdecillo concuerdan con los observados en los canarios mosaicos. Las hembras y las zonas con menos pigmentación de lipocromos tienen mayor expresión de la proteína BCO2. Sin embargo, en el carpodaco esto no ocurre así, sugiriendo que existen múltiples mecanismos para el dimorfismo incluso dentro de las paseriformes.
Estoy convencido que estos estudios serán los primeros de otros que vendrán sobre este tema, ya que los resultados dejan muchas cosas por explicar. Los propios autores sugieren que la regulación de la expresión del gen BCO2 debe ser compleja con otras regiones del genoma cercanas y más alejadas también implicadas.
De lo que también estoy convencido, y teniendo en cuenta que los criadores de canarios lipocromos mosaicos son hoy en día investigadores reconocidos por ejemplo por sus trabajos en des- y pigmentación, de que este articulo podrá despertar la inquietud por hacer nuevas pruebas. El papel que tienen las concentraciones de hormonas en la regulación sería un punto que aún queda pendiente de clarificar y sin duda no van a faltar aviarios que prueben. Es verdad que existen machos adultos que en su juventud lucieron hermosas máscaras y van perdiendo su intensidad, quizás pueda deberse a una pérdida de hormonas que les desregula la distribución de actividad de la proteína BCO2 y acaban depositando menos carotenos en su librea, se vuelven más blancos en general. Desde un punto de vista científico, seguro que surgirán nuevos estudios que estudien esta relación vigor sexual y fenotipo
Nuevos avances científicos en la genética del Urucum
Poco antes del anterior artículo, el mismo grupo de investigadores se centraron en la caracterización del factor Urucum, como pista para entender los factores genéticos que controlan la coloración en las partes corneas de canarios y por extensión de otras aves. El estudio fue publicado en mayo de 2020 en la revista Molecular Biology and Evolution ha contado con la colaboración de criadores españoles como Susana Mondelo y brasileños como Alvaro Blasina (17). Como sabéis esta mutación se relaciona con una intensa coloración roja del pico y otras partes corneas (patas y uñas) y que tiene su variante amarilla en el canario de pico amarillo recientemente admitido por la COM.
Los científicos secuenciaron el genoma de estos canarios y realizaron un análisis exhaustivo de las diferencias con el genoma de canarios de fenotipo “silvestre” o no mutado para intentar relacionar las diferencias genéticas con el fenotipo Urucum.
Tras este análisis, identificaron una mutación que alteraba el mensaje contenido en el gen BCO2 resultando una proteína con una secuencia de aminoácidos alterada. Justo la misma proteína encargada del fenotipo mosaico, pero en esta ocasión incapaz de funcionar correctamente.
Esta admitido por todos que el factor Urucum tiene una herencia autosómica recesiva, incluso así se publica en numerosas publicaciones como:
• Este propio artículo científico • Dosieres de presentación del pico rojo/Urucum o pico amarillo • Artículos anteriores en esta revista como los publicados en el numero 81 ó 50.
Aunque se trate de una herencia autosómica y recesiva hay quien plantea que ya los portadores de Urucum o pico amarillo (heterocigotos) tienen un fenotipo diferente a los ejemplares homocigóticos no mutados, particularmente evidente en los ejemplares nevados. Desde luego no es el objetivo de este artículo y por ello dejaremos este aspecto técnico para otra ocasión, pero podría darse el caso que una simple copia mutada ya tendría cierto fenotípico (tal vez en los primeros días de nacer, etc…).
Pues bien, se pudo evidenciar una prefecta asociación entre ejemplares cuyo genoma tenía una doble copia del gen mutado BCO2 y el fenotipo Urucum. Por esta mutación, parece que la actividad de la enzima se anula y por tanto los niveles de carotenoides se acumulan en los tejidos y se reduce la concentración de apocarotenoides comparado con otras razas de canarios.
Me llama poderosamente la atención y así lo remarcan también en el artículo que, incluso surgiendo en aviarios diferentes separados en espacio y tiempo:
• La mutación Urucum aparece en Brasil en 1992 en el criadero de Maercio Laranjo, en la ciudad de Resende. • La mutación pico amarillo aparece en 1993 en el criadero de Jose Luis Lozano en Orihuela (Alicante).
Urucum mosaico
Tanto los ejemplares de pico rojo como los ejemplares de pico amarillo presenten la misma mutación, la sustitución del residuo de histidina 413 de la proteína BCO2 por una arginina, lo que viene a confirmar la misma base genética de ambas mutaciones.
El detalle genético viene acompañado en el artículo publicado por mediciones de la concentración de carotenoides en pico y plumas comparando ejemplares Urucum, pico amarillos y no mutados. Los ejemplares Urucum o pico amarillo tendrían a acumular concentraciones significativamente superiores de carotenoides en el pico frente a los ejemplares no mutados.
En el caso de las plumas no se encontraron diferencias significativas entre los ejemplares Urucum o picos amarillos y los no mutados.
Se hace raro pensar que el nivel de carotenoides de la pluma de un Urucum o un pico amarillo sea similar al de un ejemplar no mutados o incluso a ejemplares portadores, particularmente en ejemplares nevados donde visiblemente tienen diferente coloración. Tendremos que esperar a nuevos estudios para profundizar en estos detalles.

Tampoco pudieron demostrarse diferencias significativas entre la concentración de carotenoides en la retina de ejemplares Urucum, pico amarillo o no mutados. No obstante, el nivel de apocarotenoides en la retina de ejemplares Urucum pareció ser ligeramente inferior en los ejemplares no mutados, lo que vuelve a sugerir que en este tejido la actividad de la enzima BCO2 estaría afectada en ejemplares mutados. La comprensión detallada del metabolismo de los carotenoides y su importancia bioquímica y fisiológica tienen el potencial de una mejor comprensión no sólo de la coloración ornamental en las aves, sino también el papel de los micronutrientes en la salud y la enfermedad en los vertebrados en general. Los que han criado Urucum y pico amarillo son conscientes del efecto que puede tener en estos ejemplares un exceso de carotenoides en la dieta y se conocen casos de problemas de equilibrio, movilidad, coordinación, inactividad y la visión.
Existen estudios que han demostrado que altos niveles de carotenoides tienen efectos fisiológicos negativos. Por ejemplo, estudios con otros fringílidos (Carduelis tristis), ratones deficientes de la actividad de la proteína BCO2 o incluso algunos peces (Danio rerio), han servido de ejemplo para demostrar el papel de la proteína en la homeostasis de los carotenoides y la protección frente a los efectos potencialmente dañinos de estos pigmentos.
Según este artículo los investigadores hipotetizan que el color de las partes corneas en otras aves puede estar muy relacionado también por la regulación en este tipo de enzimas de tal manera que reduciendo o aumentando su actividad pueden obtenerse ejemplares con las partes corneas más o menos coloreadas. Existen estudios previos donde se relaciona esta enzima con coloraciones típicas de varias razas de gallinas domesticas con patas amarillas mientras que sus antepasados tengan patas grises sin coloración asociada a carotenos. En esta ocasión se argumentaba diferencias en la regulación de este gen, pero en cualquier caso supone diferencias en la actividad enzimática. Existen otros estudios que tratan de relacionar este gen BCO2 con la coloración debida a carotenos como en currucas, lagartos o en el color de la leche de animales domésticos.
También llama la atención a los investigadores que un único gen esté implicado en cambios tan significativos de la pigmentación con respecto a los ejemplares no mutados lo que relacionan con la facilidad que tienen grupos de aves en la naturaleza para evolucionar en su coloración, cosa que por otra parte nos beneficia enormemente a los apasionados del color de las aves.
El canario Mosaico Urucum/pico amarillo
A la vista de ambos artículos, como debería entonces ser un canario de categoría mosaica y mutado en la mutación pico rojo/amarillo?
Partamos de la base que al tratarse de la combinación de efectos sobre la actividad de la proteína BCO2, por un lado, la mutación urucum/pico amarillo que reduce la actividad de la enzima y por otro lado la diferente sobreexpresión de la misma (dimorfismo sexual) el individuo resultante debiera ser claramente más coloreado que un ejemplar mosaico no mutado. Partiendo del estándar de ejemplares mosaicos debería considerarse por tanto la imposibilidad de tener el plumaje blanco yesoso. Si bien en las zonas de elección el lipocromo puede verse aún más intenso, el ejemplar debe presentar coloración en toda su librea de un tono similar a la coloración que presentan los nevados mutados en los extremos de sus plumas. Será difícil valorar la delimitación entre las dos tonalidades, aunque sin duda al igual que ocurre en mosaicos no mutados debiera perseguirse al igual que la intensidad y el brillo en el lipocromo como en el resto de los lipocromos mutados. Claramente no debieran evidenciarse restos de nevaduras.
Sobre las grandes plumas remeras y timoneras aparecería una contradicción con los ejemplares mosaico no mutados y es que no existe razón genética para considerar que estas plumas no debieran ser coloreadas en parte. En caso de seleccionarse o estandarizarse en el mismo sentido que los clásicos tendríamos un ejemplar similar a un lipocromo alas blancas donde se evidenciaría adicionalmente el mosaico.
Por su parte las partes corneas debieran de ser vivamente coloreadas reflejando claramente la mutación urucum/pico amarillo.
Dejaremos para más adelante como debieran ser los ejemplares marfiles.
El resto de los aspectos de una planilla, melaninas en su caso, lipocromo, plumaje, talla y forma, posición, etc. No tendrían por qué verse modificados en estos ejemplares con respecto a los no mutados.
Desde aquí animo a la cría de estos ejemplares como lo están haciendo ya grandes criadores de Europa y Latinoamérica. Sin duda la hermosa contradicción genética de una expresión regulada de la proteína BCO2 pero menos funcional que nos traerá un bonito fenotipo.
Aprovecho las ultimas líneas de este artículo para agradecer a Alvaro Blasina por sus fotos y a Miguel Araujo, Investigador de la universidad de Oporto, por su interés científico en los caracteres genéticos que dominan la librea del canario.
Referencias.
1. Francisco M. Reyes Sosa (2018) Nuevos avances científicos en la genética del factor rojo. Ornitología Práctica 88. 2. Francisco M. Reyes Sosa (2018) Nuevos avances científicos en la genética del blanco recesivo. Ornitología Práctica 89. 3. Rafael Cuevas Martínez (2000) Genética y reproducción aplicadas a la Ornitología deportiva. Coma press. 4. Rafael Cuevas Martínez (2020) Citogenética en aves. Cromosoma extra en el canario. Ornitología Práctica 101.
5. C. Darwin (1871) The Descent of Man, and Selection in Relation to Sex. John Murray. 6. 5K. Kraaijeveld et al. (2011) Sexual Selection and Speciation: The Comparative Evidence Revisited. Biol. Rev. Camb. Philos. Soc.86, 367. 7. Francisco Manuel Reyes (2018) Ellas deciden. Ornitología Práctica nº 91. 8. A. R. Wallace (1889) Darwinism: An Exposition of the Theory of Natural Selection with Some of Its Applications. Macmillan. 9. A. V. Badyaev, G. E. Hill, (2003) Avian Sexual Dichromatism in Relation to Phylogeny and Ecology. Annu. Rev. Ecol. Evol. Syst.34, 27. 10. J. J. Price (2019) Sex diferences in song and plumage color do not evolve through sexual selection alone: new insights from recent research J. Ornithol.160, 1213. 11. A. V. Badyaev, G. Hill (2000) Evolution of sexual dichromatism: contribution of carotenoids- versus melanin-based coloration. Biol. J. Linn. Soc. Lond.69, 153. 12. P. A. Svensson et al. (2011) Behaviour 148, 131 13. M. Andersson (1994) Sexual Selection. Princeton Univ. Press. 14. T. M. Williams, S. B. Carroll (2009) Genetic and Molecular Insights Into the Development and Evolution of Sexual Dimorphism. Nat. Rev. Genet.10, 797. 15. M. A. Gazda et al. (2020) A genetic mechanism for sexual dichromatism in birds. Science 368, 1270. 16. D. P. L. Toews et al. (2017) The evolution and genetics of carotenoid processing in animals. Trends Genet.33, 171. 17. M. A. Gazda et al (2020) Genetic Basis of De Novo Appearance of Carotenoid Ornamentation in Bare Parts of Canaries Molecular Biology and Evolution 37, 1317–1328.
Texto: Francisco Manuel Reyes Sosa. Créditos fotográficos conservados en el artículo.