
Introducción
Con este artículo, cuyo título, ciertamente, resultará desconocido para una gran mayoría de los aficionados a la tenencia y cría de aves, pretendemos explicar el concepto de fenoma, además de otros términos científicos como: genoma, epigenoma, epigénetica, fenotipo y genotipo, los cuales están interrelacionados y determinan e influyen, junto con el ambiente, en la expresión de los rasgos o caracteres observables en nuestras aves. Especialmente, nos detendremos, aunque de forma general dada su extensión, en el estudio del fenoma relacionado con la expresión del color (fenotipo cromático), objeto de una minuciosa evaluación por los jueces en los concursos-exposiciones, al igual que otras manifestaciones fenotípicas como el canto, plumaje, forma y posición.
Este trabajo pretende ofrecer un compendio general de los conceptos de genética necesarios para tener una visión panorámica de la herencia en las aves, así como conocer la naturaleza de los diferentes factores que determinan, influyen o modifican la expresión de su fenotipo. Para una mayor profundización en el tema, los lectores pueden consultar mi obra: Genética y reproducción aplicadas a la Ornitología Deportiva. Croma Press. 2012.
Genoma
La genómica es la ciencia que estudia el genoma. El genoma se refiere a la totalidad del material genético (ADN) presente en una determinada especie; es decir, incluye tanto a la secuenciación de los genes de todo tipo, como a otras secuencias de ADN no codificante (mal llamado ADN basura, pues presenta funciones reguladoras y necesarias para el funcionamiento de las células), mayoritario, presentes en los cromosomas del núcleo, así como el ADN mitocondrial.
Al menos desde 1999, hace ya más de veinte años, se están secuenciando genes del genoma del canario, tanto en el canario silvestre como el canario doméstico, así como otros Serinus y Carduelis (Arnaiz-Villena et al.).
Genotipo
Con extraordinaria frecuencia los términos de genotipo y fenotipo son muy utilizados por los criadores de aves ornamentales, incluso por simples aficionados, por lo que se hace imprescindible comprenderlos y diferenciarlos claramente para evitar que se pueden prestar a confusiones, pues van a condicionar enormemente los resultados de la prole en los cruzamientos que efectuemos. Es fundamental conocer el tipo de herencia para no llevarnos sorpresas, evitar perder el tiempo y decepcionarnos con la progenie obtenida.
El genotipo puede hacer referencia a uno, varios o un conjunto de genes responsables de los caracteres hereditarios. A veces se usa como sinónimo de genoma, pero realmente no es correcto, pues en realidad, y como hemos dicho anteriormente, el genoma corresponde a la totalidad del material genético, tanto de los cromosomas del núcleo como el ADN mitocondrial.
Los alelos son versiones o formas alternativas (secuencias de ADN) de un mismo gen, localizados en una zona concreta del cromosoma (locus), los cuales compiten entre sí por expresarse.
Tipos de genes
Existen muchos tipos de genes y alelos:
Genes autosómicos y ligados al sexo. Los genes autosómicos se encuentran en los autosomas, cromosomas no sexuales. Los genes ligados al sexo se localizan en el segmento diferencial de los cromosomas sexuales Z y W y no siguen una herencia mendeliana, pues los resultados (fenotipos) de la progenie están condicionados por su sexo.
Hay genes específicos de un determinado sexo; así, los genes localizados en el cromosoma W de las aves sólo están presentes en las hembras, mientras que los genes localizados en el cromosoma Y, son exclusivos de los machos de los mamíferos.
Genes modificadores, cómo su nombre indica, modifican, no enmascaran, intensificando o disminuyendo la expresión (fenotipo) de un gen estructural (gen principal o mayor), no siendo alélicos con relación a este, tal como ocurre con los genes dominantes y recesivos. Como ejemplo tenemos los genes modificadores del gen principal para el carácter mosaico o alas grises, posiblemente, o de los genes modificadores que afectan a genes principales encargados de la síntesis de melanina.
Genes pleiotrópicos, cuando un solo gen influye al mismo tiempo en varios caracteres. La pleiotropía es el caso opuesto a la herencia poligénica. Ejemplo, los genes que modifican la estructura de la pluma y, además, reducen la concentración de los pigmentos (opal y marfil, por ejemplo). En ocasiones incorporamos mediante hibridación y seleccionamos un determinado carácter que nos interesa, y puede suceder que, debido a la pleiotropía, con dicho carácter se arrastre a otros fenotipos a veces indeseables, pues el gen responsable tiene otros efectos. Un gen pleiotrópico puede expresarse como dominante para un determinado efecto fenotípico y recesivo para otro.
Los poligenes o genes aditivos. Se trata de varias parejas de genes que influyen en un mismo carácter y siguen una herencia de mendelismo complejo. Presentan efectos sumativos o aditivos en el grado de expresión de un determinado carácter. Son responsables de un amplio rango de variabilidad fenotípica -mayor cuantos más poligenes haya para un determinado carácter-, como sucede, por ejemplo, con la talla, factor de refracción, concentración de lipocromo, longitud del plumaje, etc.

Genes letales y subletales (o deletéreos). Los genes letales – por ejemplo, blanco dominante en homocigosis - provocan la muerte en diferentes estadios embrionarios o tras el nacimiento y los subletales -intenso, pieles negras, moña-producen diferentes taras, como muda continua, esterilidad y una disminución de la capacidad de los ejemplares para sobrevivir o reproducirse.
Genes epistáticos. Actúan facilitando o impidiendo la expresión de otra pareja de alelos. Existen muchos tipos de epistasia; como ejemplo, epistasia simple recesiva, donde el gen blanco recesivo en hemicigosis se comporta como epistático con relación a los genes para el blanco dominante, amarillo y genes para la categoría.
Genes dominantes y recesivos. Los genes dominantes se expresan tanto en simple dosis (heterocigosis y hemicigosis) como doble dosis (homocigosis). Los genes recesivos solo se expresan en homocigosis (nevado, opal, por ejemplo), o bien, en hemicigosis en el caso de los genes ligados al sexo como pastel y marfil, por ejemplo.
Genes ligados. Son aquellos que se localizan en un mismo cromosoma, pero en diferente locus. Se transmiten juntos a no ser que ocurra recombinación genética.
Genes reguladores. Son genes que no codifican proteínas responsables de los caracteres, pero, sin embargo, regulan a otros genes que si lo hacen. Los genes reguladores actúan activando o desactivando muchos procesos genéticos que ocurren en la célula. Como vemos, a través de este y posteriores ejemplos, los genes para su expresión dependen unos de otros.
Oncogenes. Son genes productores de tumores.
Tipos de herencia
Herencia mendeliana. Es aquella basada en las Leyes de Mendel.
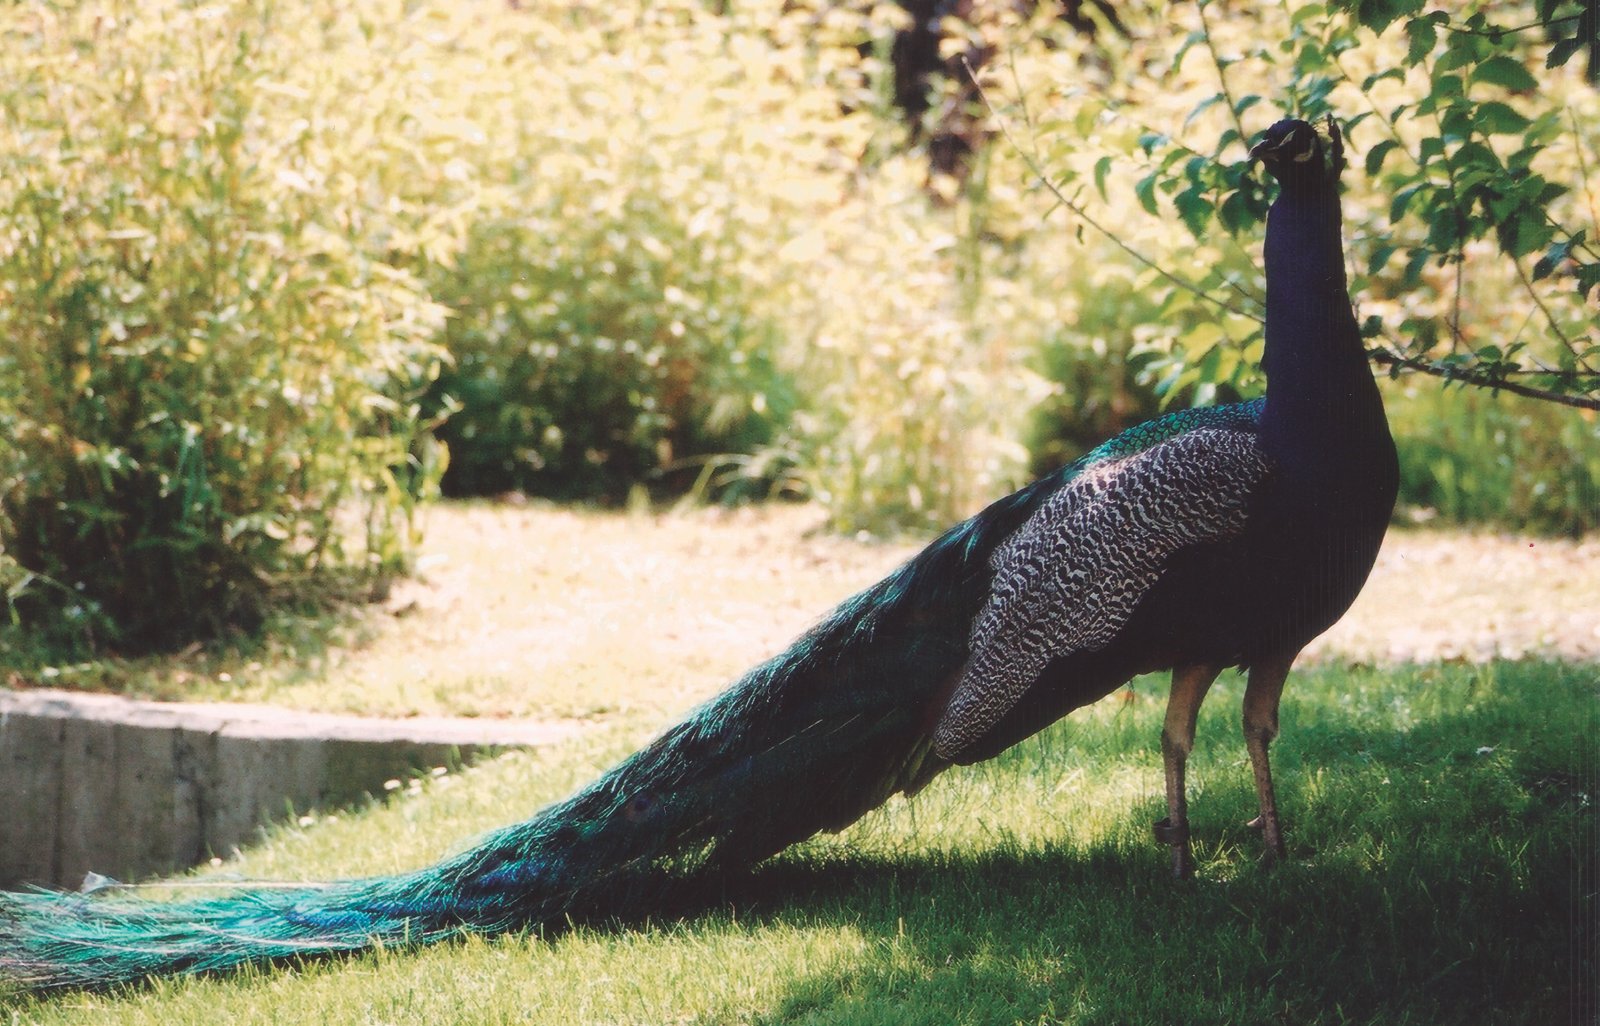
Herencia limitada al sexo. Da lugar a caracteres exclusivos de un sexo, como por ejemplo las plumas de adorno del macho del pavo real, el diseño específico del plumaje de un sexo, determinados ornamentos, espolones en los machos, puesta de huevos en las hembras, canto de los machos, etc.
Herencia influida por el sexo. Se trata de caracteres cuya expresión está influida por las hormonas sexuales, como ocurre con la mayor concentración de eumelanina negra y marrón en los machos, la mayor concentración de feomelanina en las hembras, o la peculiar distribución, según el sexo del ejemplar, del lipocromo o melaninas en el plumaje, como con el carácter mosaico o phaeo, respectivamente.
Herencia ligada al sexo. Se da en aquellos caracteres cuyos genes responsables se localizan en los segmentos diferenciales de los cromosomas sexuales (Z y W). Ejemplos de genes localizados en el cromosoma Z del canario tenemos: marfil, satiné pastel, ágata, etc. Se piensa que la coloración y diseño del plumaje de las aves también depende genes localizados en el cromosoma W.
Herencia poligénica. Se debe a muchos genes (poligenes) situados en diferentes loci, e incluso en diferentes cromosomas, que presentan efectos sumativos o acumulativos, como ya comentamos. En la herencia multifactorial o cuantitativa la valoración del nivel de influencia de cada gen en el fenotipo es una tarea ardua y compleja. Es impresionante la variedad fenotípica en los ejemplares píos o variegados y ello es debido a la intervención de múltiples parejas de genes.
Alelismo múltiple. Ocurre cuando aparecen más de dos alelos para un determinado gen. Ejemplo la serie alélica formada por los alelos: oxidación, dilución y satiné. Este hecho determina la imposibilidad, por ejemplo, de obtener genéticamente canarios bruno satiné, aunque fenotípicamente se puedan obtener por un proceso de selección inversa del estándar, al seleccionar y aparear los ejemplares más apartados del estándar.
Epigenoma y epigenética
El ambiente actúa modificando la expresión de los genes mediante la producción de marcas epigenéticas en el material genético, las cuales pueden ser transmisibles a la descendencia y permiten activar o desactivar (“encendido” y “apagado”) a determinados genes de una especie, dando lugar a su expresión o silenciamiento.
Se designa epigenoma al conjunto de todas las marcas epigenéticas presentes en el ADN e histonas (proteínas asociadas al ADN) de una especie o individuo. Por tanto, la información genética no solo reside en la secuencia del ADN, sino también en las marcas epigenéticas, lo que da lugar a una importante variabilidad fenotípica, por la influencia de diferentes factores: alimentación, temperatura, humedad, iluminación, fármacos, toxinas, contaminantes, estrés, etc., ya que las modificaciones en el epigenoma también pueden ocasionar cambios en la expresión de los genes y, por ello, en el fenotipo de las aves. La tasa de epimutaciones (marcas epigenéticas), por lo general, es superior a la tasa de mutación, lo que representa una importante fuente de variabilidad genética.
La temperatura de incubación, déficits nutricionales y situaciones de estrés durante la puesta podrían dar lugar a marcas epigenéticas transmisibles a la descendencia e influir y modificar el fenotipo de las aves. Las diversas sustancias químicas contenidas en el huevo también pueden influir posteriormente en el fenotipo del adulto.
La epigenética estudia la interacción de los genes con el ambiente (externo e interno), dando lugar a que el fenotipo se exprese de una u otra forma, lo que puede explicar, al menos en parte, la enorme variabilidad fenotípica cromática presente en las aves.
Fenoma
El término fenoma (del inglés phenome) hace referencia a la suma o totalidad de los fenotipos expresados por un organismo o especie, en nuestro caso las diferentes especies de aves. Por tanto, el fenoma abarcaría el estudio global de los diferentes rasgos o caracteres (fenotipos): morfológicos, biométricos, fisiológicos, cromáticos (pigmentación y diseño del plumaje, lo que se conoce como patrón de pigmentación), de comportamiento, dimensiones y estructura de las plumas, canto, color de los ojos y partes córneas, etc. Podemos hablar de fenotipo cromático, fenotipo del plumaje, fenotipo de talla, fenotipo morfológico, de comportamiento, etc.).
La investigación del fenoma de las especies es conocida como fenómica. Se están llevando diversos proyectos de fenoma en diferentes especies de seres vivos: ratón, perro, pez cebra, levadura, etc. El proyecto fenoma canario, por ejemplo, tomaría como referencia (base de datos del fenoma de canario).
FENOTIPO
A continuación, nos detendremos en el estudio del fenotipo, objetivo central de este artículo. Simplificadamente podemos decir que el fenotipo (etimológicamente la forma que se muestra) es la apariencia externa, lo que se expresa y percibe mediante los órganos de los sentidos: color, talla, plumaje, canto, etcétera; o sea, son las peculiaridades o caracteres morfológicos (postura, forma), fisiológicos, canoros, biométricos, de comportamiento, etc. observables en un individuo. Se refiere tanto caracteres o rasgos de expresión de tipo cualitativo (opal, cobalto, etc.) como cuantitativos (talla, forma, factor de refracción, concentración de lipocromo, longitud del plumaje, etc.) que están presentes en los ejemplares.
El fenotipo es el resultado de la expresión de la información genética influida por las hormonas sexuales y los factores ambientales que actúan sobre el genotipo de las aves, con mayor o menor influencia según el tipo de genes; por ejemplo, el color del plumaje se modifica al añadirle determinadas sustancias químicas del medio o la incidencia de diferentes tipos de radiación, solar o no. Podemos hablar de fenotipos silvestres o selváticos y de fenotipos mutados. Son también los llamados “nuevos colores” en la canaricultura de color.
FENOTIPO = GENOTIPO + INFLUENCIA AMBIENTAL
El genotipo no cambia, salvo la ocurrencia de excepcionales mutaciones. Sin embargo, el fenotipo es variable a lo largo de la vida del individuo por distintos factores (edad, estación del año, alimentación, circunstancias ambientales, etc.).
Las diferencias fenotípicas permiten diferenciar especies, subespecies, jóvenes y adultos, sexo del ejemplar -aunque no siempre, pues existen especies monomórficas-, elección de pareja y marcar jerarquías. La descripción de los diferentes fenotipos de las especies, subespecies, híbridos, exóticos y razas de canarios aparecen recogidos, con mayor o menor acierto, en los correspondientes estándares que pueden consultar los criadores, quienes, por medio de cruces adecuados y selección genética, intentan para competir aproximarse, lo más posible, al considerado canon o modelo ideal de belleza, siguiendo la línea o líneas selectivas marcadas en los estándares e incluso sus gustos personales. Obviamente, los ejemplares bajo diferentes líneas selectivas (por ejemplo, diferentes tendencias en los estándares) dan origen a diversas expresiones fenotípicas; de aquí la necesidad con vistas al campeonato mundial e internacionales de un estándar unificado para todos los países.
Las diferentes interacciones o interferencias entre genes no alélicos (opal y pastel, cobalto y jaspe, onyx y cobalto, etc.) dan lugar a la aparición de fenotipos muy diversos. Así, determinadas combinaciones de mutaciones ocurridas en diferentes genes silvestres (salvajes o ancestrales, no mutados) o, incluso, determinadas combinaciones de alelos de un determinado gen, pueden dar lugar a fenotipos verdaderamente espectaculares, de gran belleza e incluso superiores a los expresados separadamente por dichas mutaciones, aunque oficialmente no estén reconocidas la mayoría de dichas combinaciones, pese a ser criadas por los aficionados, y los muchos solapamientos de fenotipos cromáticos que se producen.
Finalmente, hay que añadir que se necesitan aún más análisis genéticos en las aves para vincular determinados fenotipos con los correspondientes genotipos determinantes de la variabilidad en la estructura de las plumas y su pigmentación, por ejemplo, así como establecer la localización y función/es de muchos genes existentes en su genoma.
VARIABILIDAD FENOTÍPICA
La variabilidad fenotípica presente en las aves domésticas, y en general en todos los animales domésticos y plantas cultivadas, es superior a la expresada por las aves silvestres, debido a la ausencia de selección natural que eliminaría a aquellos fenotipos e individuos menos adaptados al medio.
Fenotipos cromáticos
Existen colores de tipo químico o pigmentarios y físicos o estructurales. Ambos tipos de coloración pueden estar interrelacionados y ser dependientes entre sí; o sea, es necesario para su expresión la existencia de pigmentos y, al mismo tiempo, una determinada estructura de pluma y viceversa. Se suelen presentar ambos tipos de coloraciones en la librea de una misma especie. Los colores pigmentarios en las aves son debidos, como su nombre indica, a diferentes tipos de pigmentos: carotenoides, melaninas, porfirinas (turacina, turacoverdina, por ejemplo) y psitacofulvina. Estas dos últimas mucho menos frecuentes en relación con las anteriores. En una especie pueden estar simultáneamente varios tipos de estos pigmentos, como ocurre con las melaninas y porfirinas, por ejemplo. Por el contrario, los llamados colores estructurales se deben a microestructuras o nanoestructuras presentes en la queratina de las plumas, las cuales regulan la luz reflejada por la pluma y dan lugar a diferentes fenómenos físicos de reflexión, dispersión y refracción de la luz que, en combinación o no, con los diferentes pigmentos presentes en las plumas, son responsables de dichos colores. Son consecuencia de la interferencia y dispersión de la luz incidente. En general, la base genética de los diferentes colores estructurales en las aves es menos conocida con relación a los colores pigmentarios.
Según recientes investigaciones (Ismael Galván, 2018. CSIC) la coloración del plumaje es debida, sobre todo, a la forma de vibración de las moléculas de los pigmentos, lo que puede afectar a la absorción de luz y, por tanto, al color percibido.
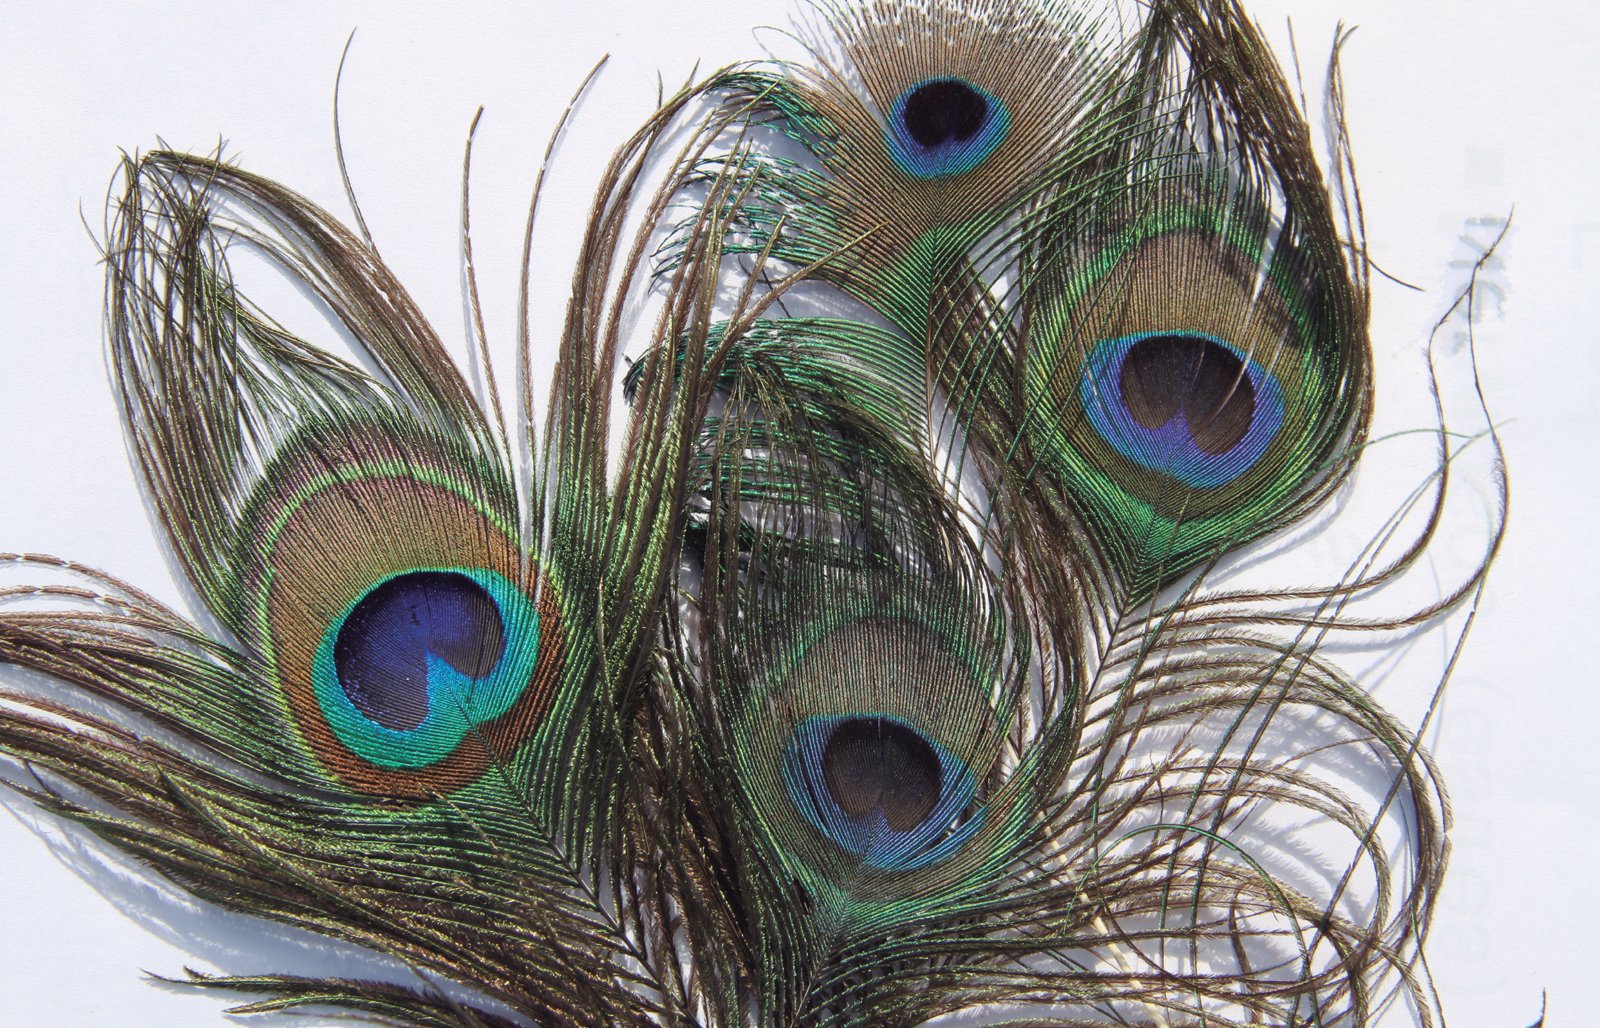
En algunos colores estructurales también se produce el fenómeno de iridiscencia (del griego iridos, arco iris), lo que da lugar a la expresión en el plumaje de diferentes tonalidades brillantes (iridiscentes) según el ángulo con el que las plumas sean observadas o al mover el ave la cabeza o el cuerpo y, como otros fenómenos ópticos, es consecuencia directa de los pigmentos y la coloración estructural producida cuando la luz incidente interactúa con nanoestructuras fotónicas presentes en la queratina del plumaje, como ocurre por ejemplo con el ibis eremita, colibríes o la cola del macho del pavo real. No todos los colores estructurales presentan iridiscencia.
La iridiscencia nos recuerda la imagen de un caleidoscopio y representa una forma de comunicación entre las aves, aunque también algunos autores hipotizan con otras funciones como defensa frente a la depredación. Además de las aves se da en otros grupos zoológicos como arácnidos e insectos.
Los fenotipos cromáticos pueden ser debidos a reducción (cuantitativa y/o cualitativa) o inhibición, tanto melánica como lipocrómica, total o parcial. La reducción puede afectar tanto a las dimensiones y características del diseño, como a la cantidad de melanina sintetizada. En este último caso, la consecuencia evidente es la dilución del pigmento melánico. El fenómeno contrario a la reducción es el aumento en la síntesis de melanina (melanismo) y la extensión o amplificación de las áreas de depósito melánico (cobalto) o lipocrómico (canarios de pico rojo y pico amarillo). En general, la presencia de carotenoides en las partes córneas de las aves es más frecuente que la de melaninas.
Con la evolución de las aves ha ido aumentando su variabilidad cromática en el plumaje, aumentando también su brillantez en comparación con las aves ancestrales, las cuales se muestran de tonalidad más apagada.
La coloración de las aves se puede cuantificar mediante colorímetros o espectofotómetros, y se consideran tres parámetros, relativos a la luminosidad, saturación y tono.
Fenotipos de plumaje
Los fenotipos de las plumas están influidos tanto por la acción de los genes como de las hormonas sexuales y varían según el sexo, edad, tipo de plumas (en general, mayor variabilidad en en las plumas de vuelo) y estación del año.
Fenotipo canoro
El canto de las aves como los canarios (silvestres y domésticos) , se ha ido modificando (duración, frecuencia e intensidad) por acción de la selección (natural, sexual y artificial) y el aprendizaje. El canto se ha enriquecido con nuevos repertorios de notas, dando lugar a las diferentes razas de canarios de canto (timbrado, roller, malinois) y líneas dentro de cada raza (timbrado continuo y discontinuo).
En el canto intervienen numerosos genes, hormonas sexuales y factores ambientales (otros congéneres, sonido ambiental, aprendizaje por DVD, videos, etc.). Existe un componente innato (genético) y otro adquirido. También la morfología y estructura de la siringe (órgano fonador) influye.
Se ha comprobado en algunos estudios científicos, como en algunas especies el tráfico rodado de las ciudades da lugar a un canto más lento y en un tono más agudo, adaptando su canto al ruido, lo que podría resultar menos atractivo para las hembras.
Factores que influyen en el fenotipo
El fenotipo depende del genotipo, epigenoma y ambiente. En la expresión de los caracteres o rasgos fenotípicos en las aves, Influyen numerosos factores: alimentación, edad, sexo, hormonas sexuales, temperatura, estado físico, intensidad luminosa, humedad, enzimas, sustancias químicas del medio, etcétera. O sea, hay factores internos (genéticos y hormonales, principalmente) y factores exógenos o ambientales. Debido a ello, un ejemplar con un determinado genotipo puede expresar distintos fenotipos, según las circunstancias ambientales dónde se desarrolle.
Factores genéticos
La coloración de las aves está determinada por multitud de genes -pueden ser varios cientos- y es un proceso bastante complejo a nivel genético y molecular. Según recientes estudios, se evidencia una relación o interacción entre genes responsables de la pigmentación melánica y mediante carotenoides. O sea, se produce un efecto pleiotrópico de algunos de estos genes que actúan sobre las melaninas.
Existen fenotipos debidos a la selección genética (natural o artificial), a errores durante la división celular (mitosis o meiosis) y otros son debidos a mutaciones que ocurren al azar, tanto en el genoma como epigenoma, combinaciones génicas aleatorias, crossing-over (canarios isabela, por ejemplo), solapamiento de varios fenotipos (cobalto y jaspe, por ejemplo). Por medio de la selección artificial hay una mayor variabilidad fenotípica -entendida como número de fenotipos distintos- que, en la selección natural, con relación a la expresión de un determinado carácter: talla, estructura, dimensiones, tonalidad cromática y diseño del plumaje, caracteres morfológicos, etc. Dentro de un mismo carácter existe variabilidad fenotípica (versiones diferentes), por ejemplo, diferente concentración de pigmentos, distinta talla, etc.
La selección natural y artificial (zootécnica) modifican el fenotipo en una determinada dirección para poder adaptarse al medio o al estándar correspondiente, respectivamente. Así, por ejemplo, podemos seleccionar canarios satiné en forma divergente, bien en la dirección señalada en el estándar o, por el contrario, llevar a cabo una selección inversa (bruno satiné).
En la inmensa mayoría de los casos un gen (herencia monogénica), por sí mismo, no es responsable de un determinado rasgo o carácter (fenotipo), sino que además del ambiente, influyen otros muchos genes sobre ese gen principal, pues los genes no actúan solos. Sin embargo, para facilitar la comprensión por los aficionados de la herencia en las aves ornamentales se suele simplificar el genotipo con un determinado alelo o gen principal.
En el canario hay mutaciones y fenotipos que afectan al color y diseño del plumaje, color de los ojos y las partes córneas, talla, forma, posición, estructura y longitud del plumaje, etc. Existen mutaciones no solo en el gen silvestre, sino también en el gen mutado a partir de este, e incluso en los genes reguladores de otros genes, los cuales pueden tener una tasa de mutación superior a los genes principales. La mayoría de los alelos mutados son de reducción de pigmentos, autosómicos y recesivos (opal, onyx, eumo…).
Existen mutaciones y fenotipos de carácter dominante y recesivo, así como diferentes formas de influir los genes en el fenotipo del ejemplar: dominancia completa, incompleta o parcial, intermedia (lipocromo amarillo y rojo) codominancia (lipocromo x melánico que da lugar a canarios píos, variegados, o moteados, por ejemplo). En este último caso, el genotipo heterocigótico expresa un fenotipo intermedio entre los genotipos homocigóticos correspondientes. Canarios píos, manchados o variegados, por ejemplo.
Existen diferentes patrones de pigmentación en las aves y son debidos a la acción de numerosos genes, algunos de los cuales son alelos (intenso y nevado, por ejemplo). En otros casos se producen interacciones génicas no alélicas. (opal + jaspe, cobalto + onyx, por ejemplo). Para reconocer si dos genes son alelos o no, se realiza la llamada prueba operativa del alelismo que consiste en llevar a cabo diferentes tipos de cruzamientos para poder descartar o no el alelismo.
Las investigaciones sobre genética aviar mediante secuenciación de alto rendimiento, técnicas de edición de genes (CRISPR) ), así como otras tecnologías punta, nos permiten a los aficionados a la ornitología conocer mejor las relaciones entre genotipo y fenotipo.
El fenotipo del canario se puede deber a genes propios, o bien genes exógenos, es decir, procedentes de hibridaciones con otras especies (Cardenalito de Venezuela, cabecita negra, xantogastra, etc. La introgresión genética consiste en el traspaso de genes de una especie a otra por medio de la hibridación y posterior retrocruzamiento. Así ha ocurrido, por ejemplo, con la introducción del factor rojo en el canario a partir del cardenalito. La secuencia del ADN de un gen en distintas especies puede ser muy parecida entre sí debido a un mismo origen evolutivo, estos genes son llamados genes ortólogos.
Variabilidad genética
El acervo genético (gen pool), o reserva genética está constituido por el conjunto de alelos de una especie o una determinada población. A mayor acervo genético mayor variabilidad genética en una población y, por tanto, fenotípica.
Las fuentes de variabilidad molecular (genoma y epigenoma) fundamentalmente son la mutación y la recombinación génica. Los reordenamientos de ADN, intracromosómicos e intercromosómicos, producidos por los transposones o elementos genéticos transponibles, dan lugar a nuevas secuencias de ADN en los genes. En ocasiones, se producen nuevos fenotipos y alteraciones metabólicas por sobrexpresión y silenciamiento de genes -por modificaciones epigenéticas, genes reguladores e, incluso, no descarto totalmente inactivación de uno de los cromosomas Z presente en los machos, tal como ocurre con el cromosoma X en las hembras de los mamíferos-, así como modificaciones en los genes reguladores de genes principales. La mezcla de genes durante la reproducción sexual también aumenta la variabilidad genética. Por el contrario, la presión de selección reduce la variabilidad genética.
Las mutaciones, tanto en el genoma como en el epigenoma, en los seres con reproducción sexual no son la única fuente de aparición de nuevos fenotipos. Las mutaciones tanto en los genes principales como reguladores del gen para un determinado carácter pueden dar lugar a alteraciones fenotípicas en la forma, talla, color, plumaje, etc. La duplicación de genes y las translocaciones, cambios de lugar que ocurren en los genes saltarines, representan mecanismos moleculares de variabilidad genética. Los cambios de posición de los genes saltarines en el cromosoma podrían dar lugar a cambios heredables en el plumaje, tal como ocurre por ejemplo, con los granos de maíz que cambian de color, o en el pez arroz japonés donde un transposón inactiva el gen responsable del color y el pez queda albino.
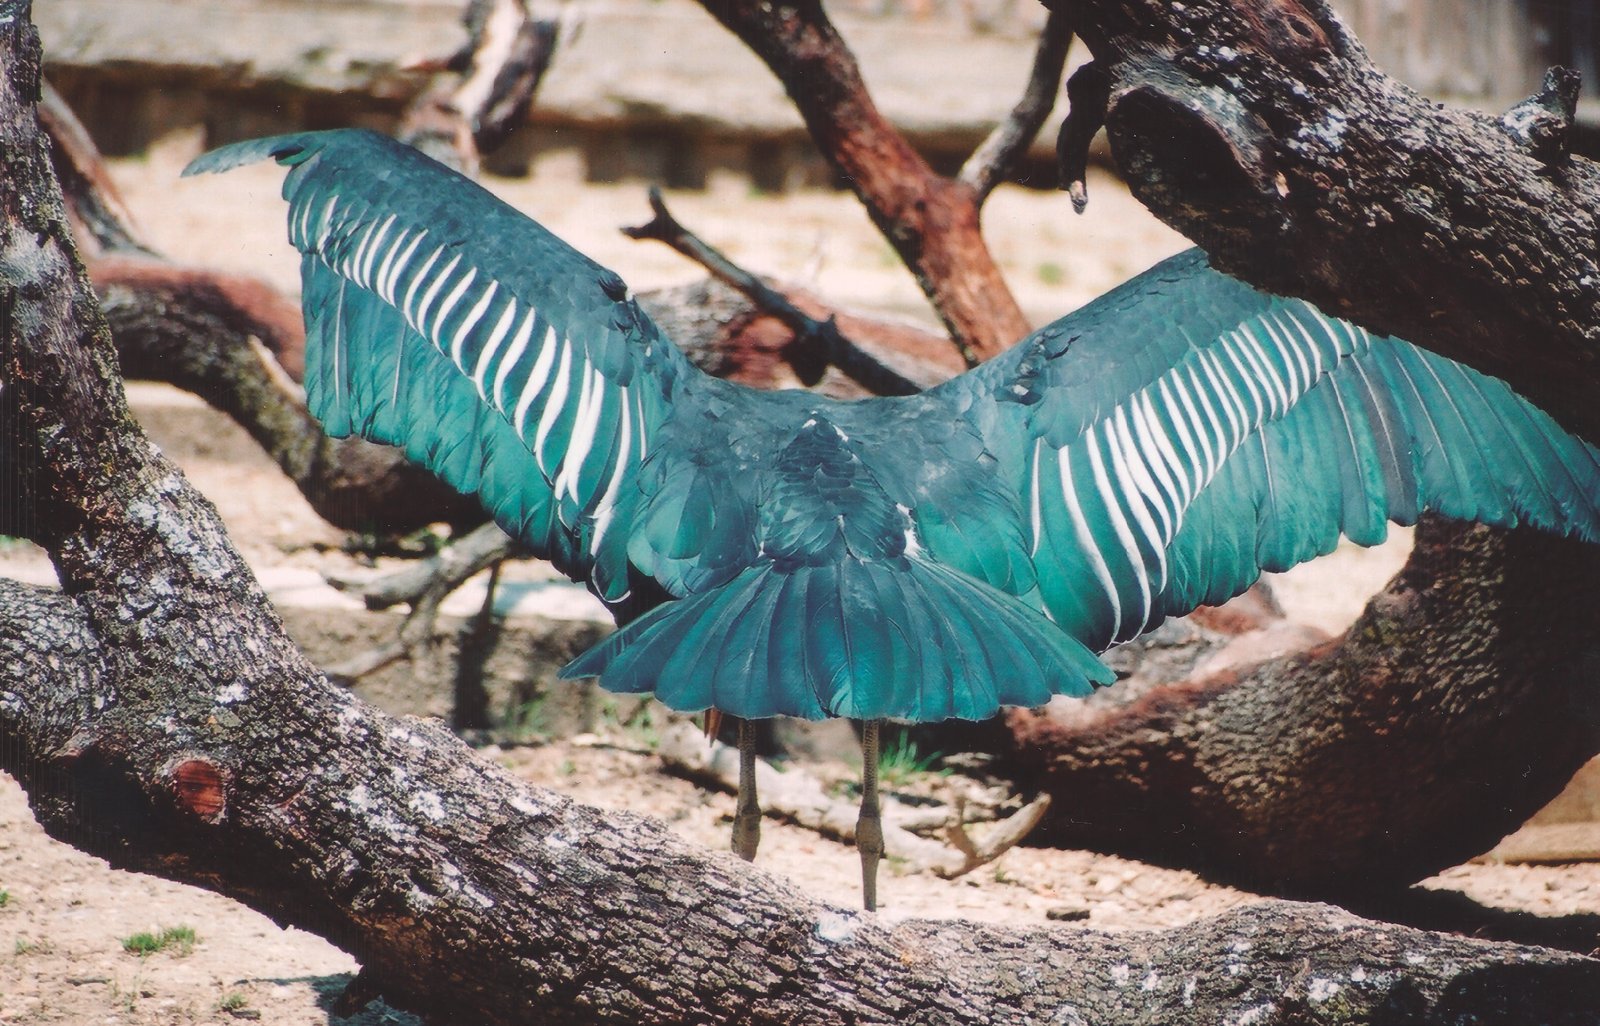
El sobrecruzamiento, entrecruzamiento (crossing-over, en inglés) produce una amplia variabilidad genética en los gametos. Asimismo, el alelismo y, especialmente, las series alélicas son una fuente importante de variabilidad genética. A mayor número de alelos para un determinado gen, mayor número posible de combinaciones posibles.
La separación al azar durante la meiosis de los pares de cromosomas homólogos y su combinación con otros cromosomas de pares separados, así como la combinación aleatoria de los gametos masculino y femenino, dando lugar a un exorbitante número de posibilidades en relación con su material genético constituye una inmensa fuente de variabilidad genética.
Penetrancia, expresividad y heredabilidad
La penetrancia se refiere al porcentaje o frecuencia con la que se expresa en el fenotipo un determinado alelo presente en el genotipo de los ejemplares; es decir, el porcentaje de ejemplares que presentan un determinado gen (dominante o recesivo en homocigosis y lo expresan, con relación a la totalidad de ejemplares que incorporan dicho gen. La penetrancia puede: ser completa cuando el 100% de los ejemplares expresa el carácter/es, e incompleta o reducida cuando en esa expresión, los caracteres no llegan al 100% Si, por ejemplo, lo expresan 30 de cada 100, decimos que la penetrancia es del 30%. Ejemplo: si tres de cada cuatro ejemplares que portan un alelo recesivo en homocigosis de un determinado carácter, lo expresan, significa que la penetrancia es del 75%.

En el caso de las enfermedades genéticas, la penetrancia reducida permite que no todos los individuos donde esté presente un determinado gen patológico padezcan esa enfermedad. La penetrancia reducida es debida, bien a genes dominantes o recesivos, aunque, además, puede deberse a la presencia de diversos tipos genes: modificadores, supresores, epistáticos
La expresividad se refiere a la constancia o variabilidad en la expresión fenotípica de un determinado alelo o fenotipo cuando este es penetrante; o sea, que ha llegado a manifestarse en su fenotipo. La expresividad se puede valorar entre 0 y 1.
La expresividad variable es el fenómeno por el cual un determinado carácter se expresa en diversas graduaciones y variaciones fenotípicas en los individuos que presentan dicho carácter sin la intervención de poligenes o genes modificadores y se relaciona con interacciones genéticas y factores ambientales. Es decir, influyen factores intrínsecos (internos) y extrínsecos (externos).
Tanto en la expresividad como en la penetrancia de un gen influye el ambiente, así como otros genes (alelos) presentes en el genoma (interacciones genéticas, epistasia…) y del resto del genoma, lo que puede dar lugar aquí un gen presente en el genotipo de un ejemplar se pueda expresar o no. Están muy relacionadas la penetrancia reducida y la expresividad variable, así puede haber genes con penetrancia completa y expresividad variable. La penetrancia reducida se asocia siempre a una expresividad variable, pero no siempre ocurre, al contrario. El acianismo y los quistes de pluma presentan penetrancia reducida y expresividad variable, o sea, que estos caracteres se manifiestan de forma diferente en los ejemplares. El gen intenso muestra expresividad variable y por ello son posibles diversos fenotipos (ultraintenso, intenso, intenso medio, semiintenso).
La heredabilidad hace referencia a la proporción de variación fenotípica de un carácter debida a la herencia y no a los factores ambientales. La heredabilidad puede ser alta, media y baja. Sus valores oscilan entre 0 y 1. Es muy importante conocer la heredabilidad de los caracteres que pretendemos seleccionar, ya que, en función de su valor, obtendremos una mejor o peor respuesta mediante la selección. Si la heredabilidad es baja, al seleccionar los mejores fenotipos, es posible que no estemos eligiendo los mejores genes, los cuales podrían estar enmascarados por el efecto del medio ambiente
Factores hormonales: dimorfismo sexual
Existen muchos caracteres en las aves cuya expresión fenotípica (canto, color, diseño y características del plumaje, etc.) está influida, principalmente, por el sexo (dimorfismo sexual) del ejemplar. El término dimorfismo (di= dos y morfos= forma) sexual, hace referencia a las diferencias de forma o aspecto anatómico entre los dos sexos de una especie. En realidad, no solo se trata de diferencia en la morfología, sino que afecta tanto a los caracteres morfológicos (crestas, espolones, etc.), biométricos (tamaño, peso, longitud del pico, plumas de vuelo, tarso, alas), cromáticos o de diseño (dicromatismo): babero, espejuelo ocelos, corbatas, así como a caracteres fisiológicos y etológicos (comportamiento), lo que da lugar a fenotipos diferentes en el macho y la hembra.
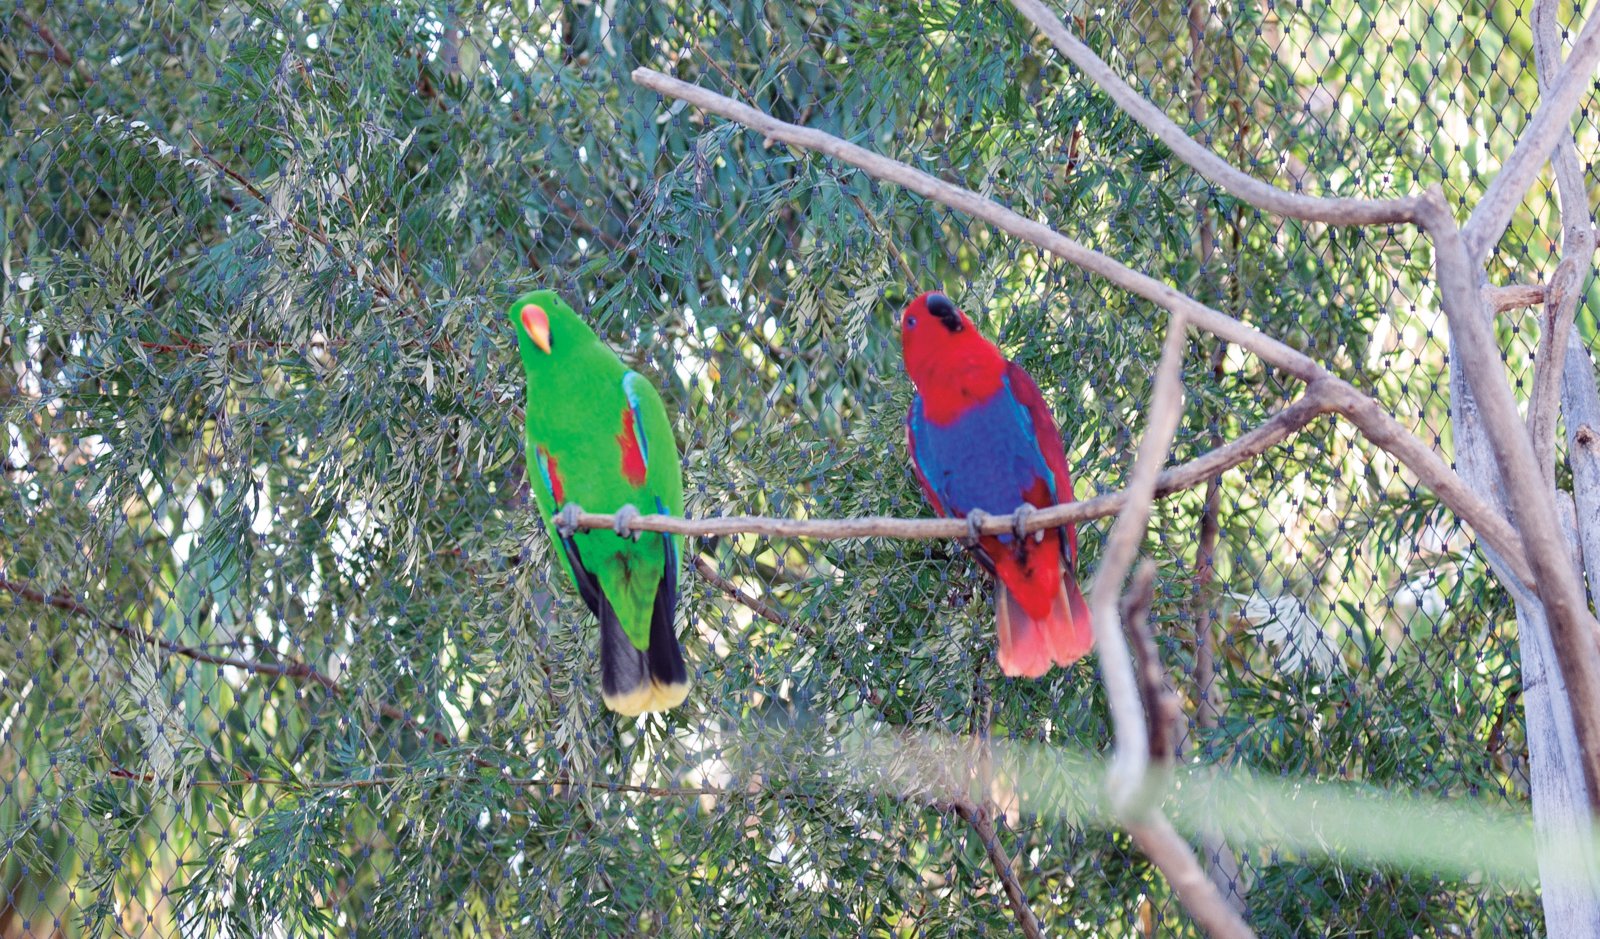
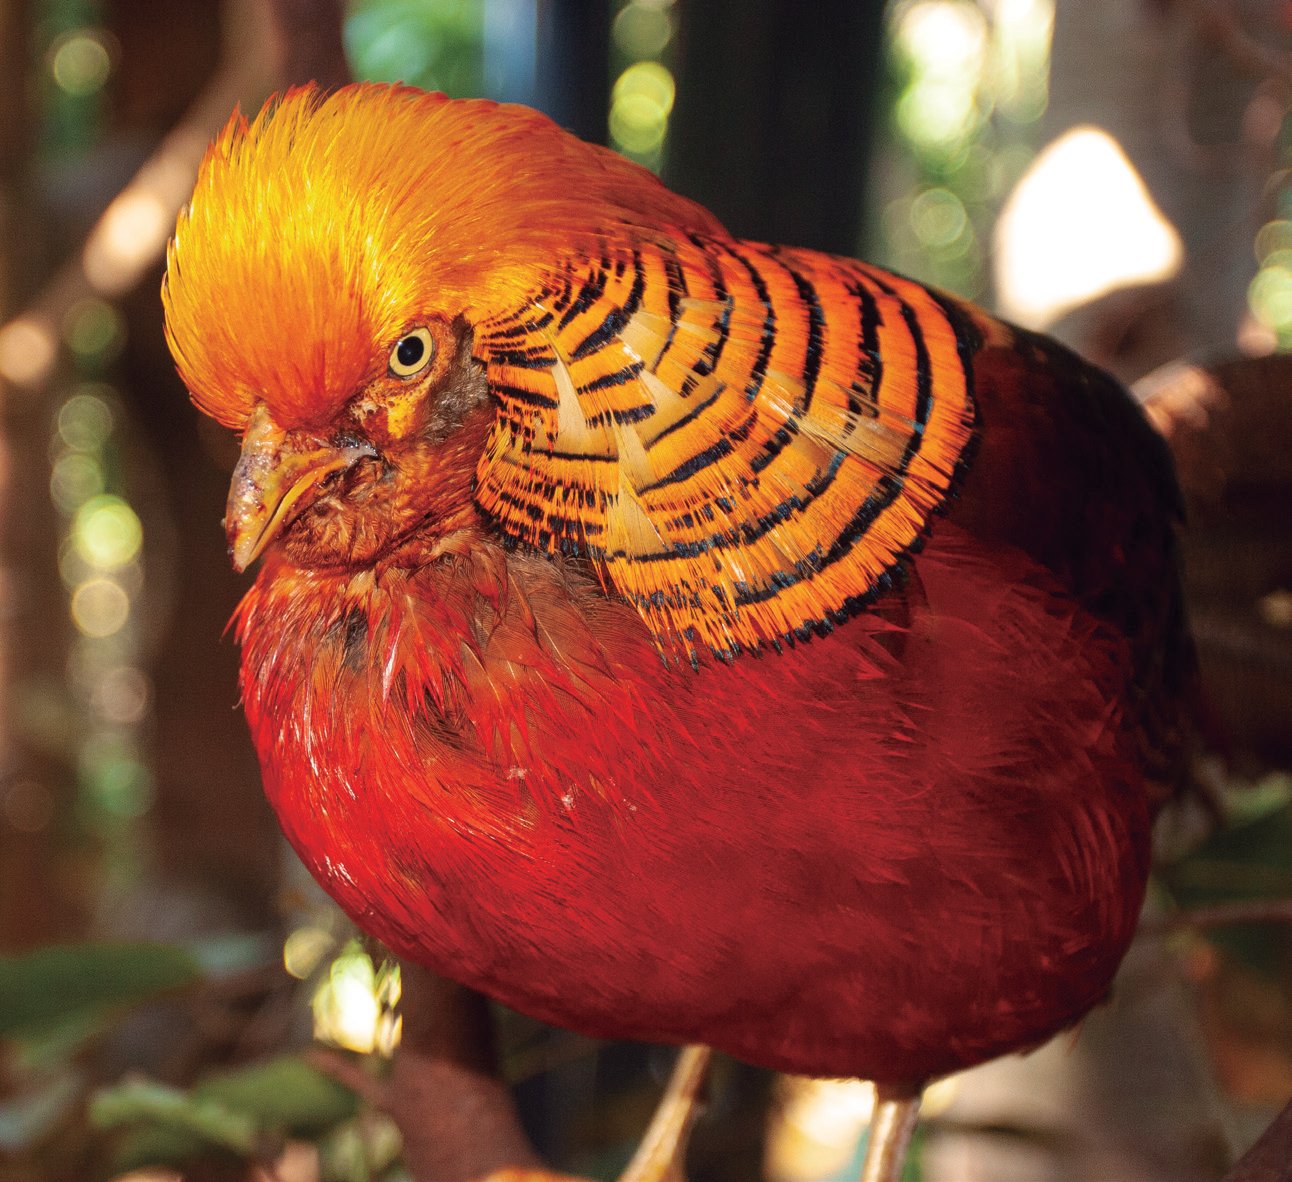
El grado de dimorfismo sexual es muy variable según las especies, pues en algunas está muy acentuado (aves del paraíso, avutarda, faisán dorado, etc.) y, en otros casos, incluso está ausente (especies monomórficas). En este apartado nos centraremos específicamente de las diferencias cromáticas (dicromatismo sexual). En cuanto a la forma, las hembras suelen presentar una mayor redondez y en algunas especies son de menor tamaño (gallináceas, por ejemplo).
La producción de hormonas sexuales (andrógenos, estrógenos) condiciona el dimorfismo sexual en los patrones de pigmentación, ejemplos canarios mosaico y phaeos. Los niveles de dichas hormonas influyen en el fenotipo y varían estacionalmente debido al fotoperíodo.
Cuando la apariencia fenotípica de machos y hembras es similar se habla de monomorfismo sexual (cacatúas, guacamayos, miná, etc.), por lo que la identificación del sexo no es fácil y, en algunos casos, hay que recurrir a diferentes métodos de sexaje: pruebas genéticas (cromosomas sexuales Z y W, genes específicos como el CHD localizados en dichos cromosomas, etc.), moleculares, endoscópicas, PCR, etc. Para el sexaje mediante el ADN se utilizan muestras de plumas, sangre e incluso del huevo.
Según un reciente trabajo publicado en la revista Nature, las especies de mayor talla muestran también mayor diversidad en la coloración de ambos sexos y, asimismo, las especies tropicales son también más intensamente coloreadas. En el caso de la golondrina común, parece que, tanto la selección natural como la selección sexual, han influido en la determinación de la longitud de las plumas timoneras.
En el canario silvestre (negro-bruno amarillo nevado) el dimorfismo sexual cromático existente, es decir, en cuanto a sus pigmentos y dibujo melánico, no es muy acusado. Los machos presentan mayor concentración de eumelanina negra y el color verde es más intenso y luminoso que en las hembras, las cuales, al igual que los jóvenes, son más ricas en feomelanina. Las hembras son más listadas, con mayor expresión de la nevadura y el obispillo es de tonalidad más apagada con relación a los machos.
El dimorfismo sexual varía en las diversas mutaciones de canarios de color; es decir, depende de estas; así en los canarios mosaicos y phaeos es mucho más evidente que en otras mutaciones. Los canarios blancos son monomórficos en cuanto al plumaje.
Por lo general, el lipocromo, tanto rojo como amarillo, se expresa mejor en los canarios machos; o sea, con más extensión intensidad, saturación y brillantez. Las hembras presentan una tonalidad más apagada que los machos. Los machos presentan mayor cantidad de eumelanina y menos estrías en los flancos -las hembras aparecen más marcadas y listadas-, pecho y cabeza (especialmente en la frente) y, además, presentan los bigotes más marcados. Por el contrario, en las hembras y los jóvenes la cantidad y distribución de feomelanina es mayor, pues dicha melanina, determinada por la acción y efecto de las hormonas sexuales, tiene una función de camuflaje (selección natural) frente a los predadores y, por ello, correr así menos riesgo de ser depredados. También existen diferencias en relación con la expresión de la categoría, donde los machos suelen expresar con más calidad la categoría intenso y nevado. La nevadura también se expresa de forma más destacada en las hembras, dando lugar a placas de nevadura, especialmente entre la zona del cuello y el dorso, lo que constituye un defecto penalizable en el estándar de estos canarios de color.
La edad también influye en el fenotipo: canto, coloración…; así los ejemplares jóvenes con objeto de camuflarse mejor presentan un plumaje (plumaje juvenil) diferente a los adultos y más parecido al de las hembras. A mayor edad, menor intensidad en la pigmentación. Los adultos más viejos expresan plumajes más apagados, menos brillantes y de tonalidad menos saturada. En los pájaros más viejos se produce desmelanización, pues los melanocitos productores de melanosomas son menos numerosos y activos, por lo que producen menos melanina. Esto se debe a modificaciones en la expresión de los genes responsables de la coloración.
En el libro: Conocimiento de las diez aves menores. (1603) del autor Juan Bautista Xamarro nos dice lo siguiente: “…y para conocer si son viejos o nuevos se ha de mirar que los encuentros de las alas y la pluma de todo el cuerpo y pecho tiran un poco más amarillo que otros, que son nuevos….”
La alimentación en relación a la administración de pigmentos o sustancias precursoras de éstos (carofil, cantaxantina, astaxantina, luteína,..), a través de frutas y verduras, o directamente, puede dar lugar a un déficit de tales sustancias y que la intensidad de pigmentación quede por debajo de la capacidad genética que le permita al ejemplar, influyendo, por tanto, en su fenotipo. Por otra parte, si la dosis es variable a lo largo de la muda, pueden expresarse zonas de diferente tonalidad de lipocromo.
La influencia del ambiente puede modificar la expresión e incluso impedir que se expresen los genes, ejemplo un ejemplar con déficit de proteínas no alcanzará la talla que sus genes le permiten, tal y como ocurría con muchos españoles que les pilló durante el período de crecimiento en la guerra civil y años posteriores.
Según la estación del año se observan variaciones fenotípicas de tipo cromático determinadas por la temperatura y el fotoperíodo, lo que da lugar a diferencias en la concentración de hormonas, las cuales influyen en la expresión de los genes y, por tanto, modifican los caracteres, dando lugar a un plumaje blanco en invierno y de color pardo en el verano, como ocurre con la perdiz nival para adaptarse mejor al medio y camuflarse frente a los depredadores. En el jilguero, por ejemplo, en la época reproductora desaparece la mancha negra del pico.
Sustancias químicas como fármacos (algunos antibióticos, sulfamidas), contaminantes, (pesticidas, por ejemplo), carbón vegetal, etc. modifican artificialmente el fenotipo sin considerar la información genética, lo que, indudablemente, perjudica la selección llevada a cabo por el criador. La enrofloxacina y otros tipos de antibióticos, por ejemplo, afectan a la melanogénesis -disminuyéndola-. observándose zonas de desmelanización en las plumas de vuelo. La ingesta de sales metálicas de plata, plomo, oro, pueden dan lugar a mayor cantidad de melanina al aumentar la actividad enzimática de la enzima tirosinasa.
Las sustancias químicas presentes en el medio ambiente también influyen en el color del plumaje. Así, existen aves que para camuflarse modifican el color (colores cosméticos) de las plumas al rociarlas con determinadas sustancias contenidas en la glándula uropigial (carotenoides, por ejemplo), en el suelo; o bien al bañarse en aguas ricas en tales sustancias como, por ejemplo, óxido de hierro. También los jugos de las frutas pueden modificar el color del plumaje. Los flamencos al frotar las plumas de las diferentes zonas del plumaje con la secreción del uropigio intensifican la coloración de carotenoides.
Los agentes físicos, tales como rayos X, rayos ultravioletas, radiactividad e interacciones moleculares. pueden provocar modificaciones fenotípicas. El exceso de intensidad luminosa da lugar a un lipocromo menos saturado y brillante, lo que algunos canaricultores utilizan, poniendo los ejemplares al sol, para disminuir el efecto de la sobredosificación de pigmentantes durante la muda. En relación con la radiactividad un equipo de investigación internacional (Ismael Galván y varios) demostró, basándose en el accidente nuclear de Chernobyl, como según el tipo de pigmentación, las aves son más o menos susceptibles al efecto de la radiactividad. En este sentido, las aves que mostraban una mayor extensión en la pigmentación feomelánica, con el paso del tiempo eran más afectadas negativamente por la radiactividad y resultaban ser menos abundantes en la zona.
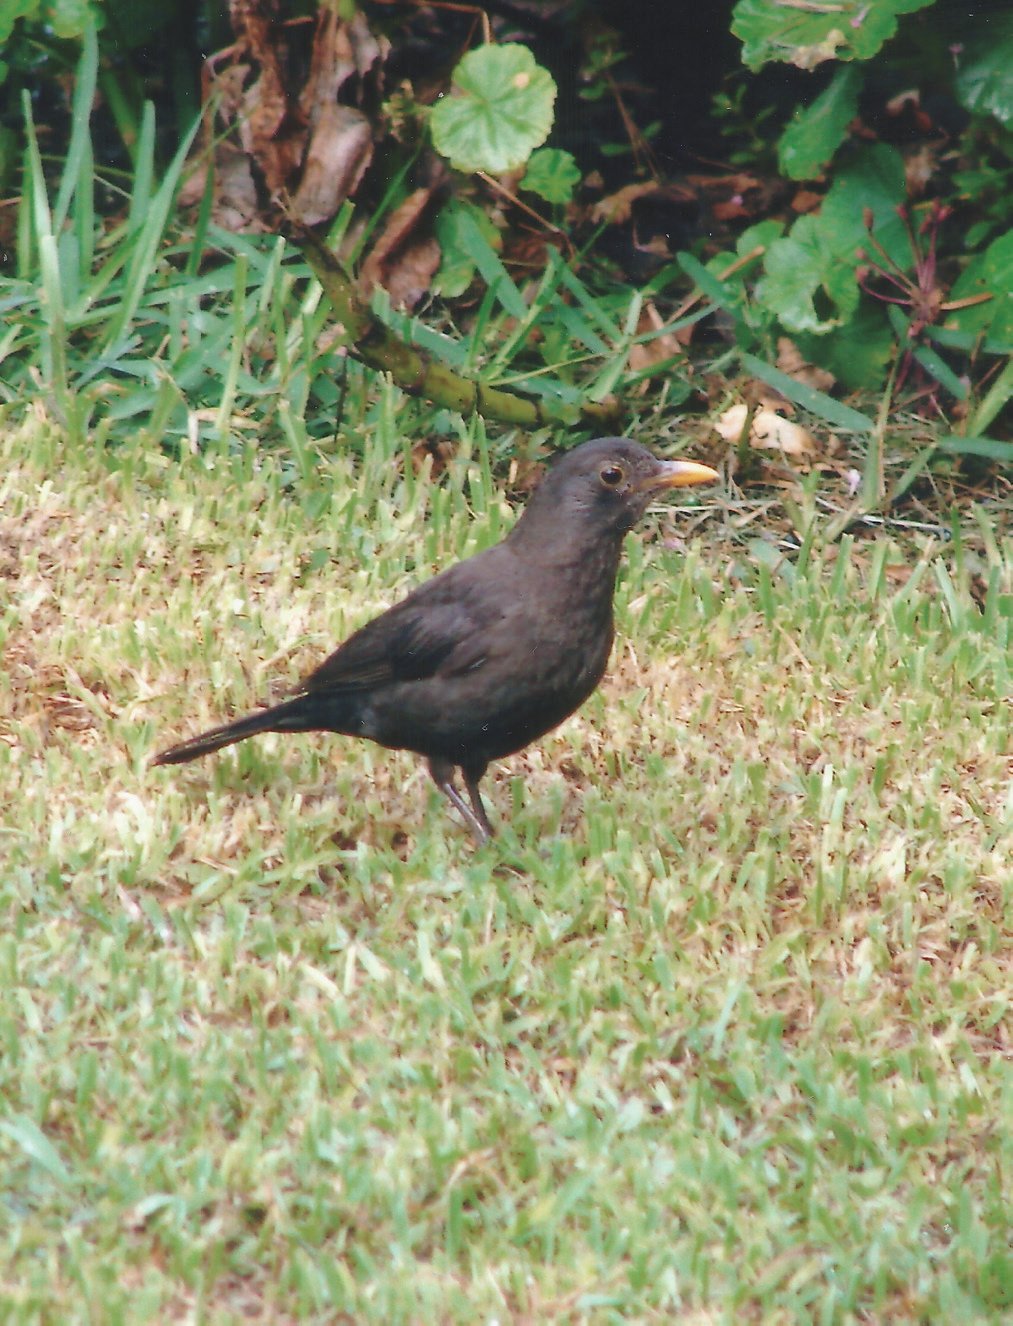
En cuanto a la temperatura existen fenotipos cromáticos que solamente se expresan con determinados valores de temperatura. El frío aclara, reduce la expresión melánica, mientras que las altas temperaturas la oscurecen). Este fenómeno es llamado acromelanismo o efecto Himalaya y ocurre en algunas aves y mamíferos (gato siamés, por ejemplo) y es debido a las diferentes temperaturas en las distintas zonas del cuerpo. Como ejemplos de acromelanismo que aparecen en las aves, tenemos la tórtola reidora y el mirlo negro con cabeza coloreada (mirlo siamés. Parece ser que también se presenta en los canarios perla, pues esas diferencias tan significativas en la pigmentación de las diferentes zonas del plumaje, algunos autores lo atribuyen a un posible caso de acromelanismo.

Las alteraciones en el estado de salud por estrés, parásitos, enfermedades y trastornos intestinales y hepáticos producen modificaciones en los niveles hormonales y las reacciones metabólicas de transformación de unos pigmentos en otros, lo que da lugar a variaciones en el fenotipo si ocurren durante el período de muda.
Fenocopias. Consiste en la aparición en el fenotipo de un carácter diferente como consecuencia de la actuación de un factor ambiental, y por ello no es heredable, que copia la manifestación externa idéntica de otro gen. Es decir, la fenocopia consiste en la modificación de un genotipo por factores ambientales, lo que produce el fenotipo correspondiente a otro genotipo diferente. Ejemplo un canario amarillo que se alimenta con cantaxantina o carofil durante la muda, expresa un fenotipo correspondiente a los genes para el factor rojo. La modificación fenotípica producida por un factor externo, en este caso los alimentos, imita la expresión de determinados genes.
ANOMALIAS FENOTIPICAS
Anomalías pigmentarias o cromáticas
Existen diferentes tipos de alteraciones pigmentarias (discromía) producidas por causas naturales: endogamia, mutaciones, alteraciones metabólicas, parásitos, enfermedades intestinales y hepáticas, hibridaciones, etc., o bien, artificiales: contaminación, suciedad, exposición a diferentes radiaciones, temperatura. Estas anormalidades se pueden producir por una reducción melánica, tanto cualitativa -ausencia de algún tipo de melanina- como cuantitativa -variación de la concentración-. Nos encontramos diferentes tipos, entre ellos:
- Amelanismo total (albinismo), hipomelanismo: reducción (disminución) de la concentración de melanina, lo que da lugar en las plumas, partes córneas, piel y ojos a una tonalidad diluida en relación con el fenotipo silvestre.
-Aeumelanismo, afeomelanismo, ausencia de eumelanina y feomelanina, respectivamente. Este último es más raro. La inhibición de la eumelanina da lugar a que sólo se exprese la feomelanina (feomelanismo), como ocurre por ejemplo en los canarios phaeos.
Por lo general, las plumas melanizadas muestran una mezcla en diferentes proporciones de eumelanina y feomelanina, lo que determina su coloración.
- Hipermelanismo. En este caso se produce un aumento o exceso de la concentración de melaninas en el plumaje, piel, partes córneas y ojos (pieles negras).
En cuanto a los carotenoides, también se puede dar una ausencia parcial o incluso total de dichos pigmentos, dando lugar a aves con color de fondo blanco, o incluso blancas si ya estaban desprovistas de melanina. Por mutación también se puede extender o amplificar la zona de pigmentación lipocrómica y afectar a las partes córneas como ocurre en el canario de pico pigmentado (pico rojo o urucum y pico amarillo).
Anomalías cromáticas no hereditarias (aberraciones): half-sider
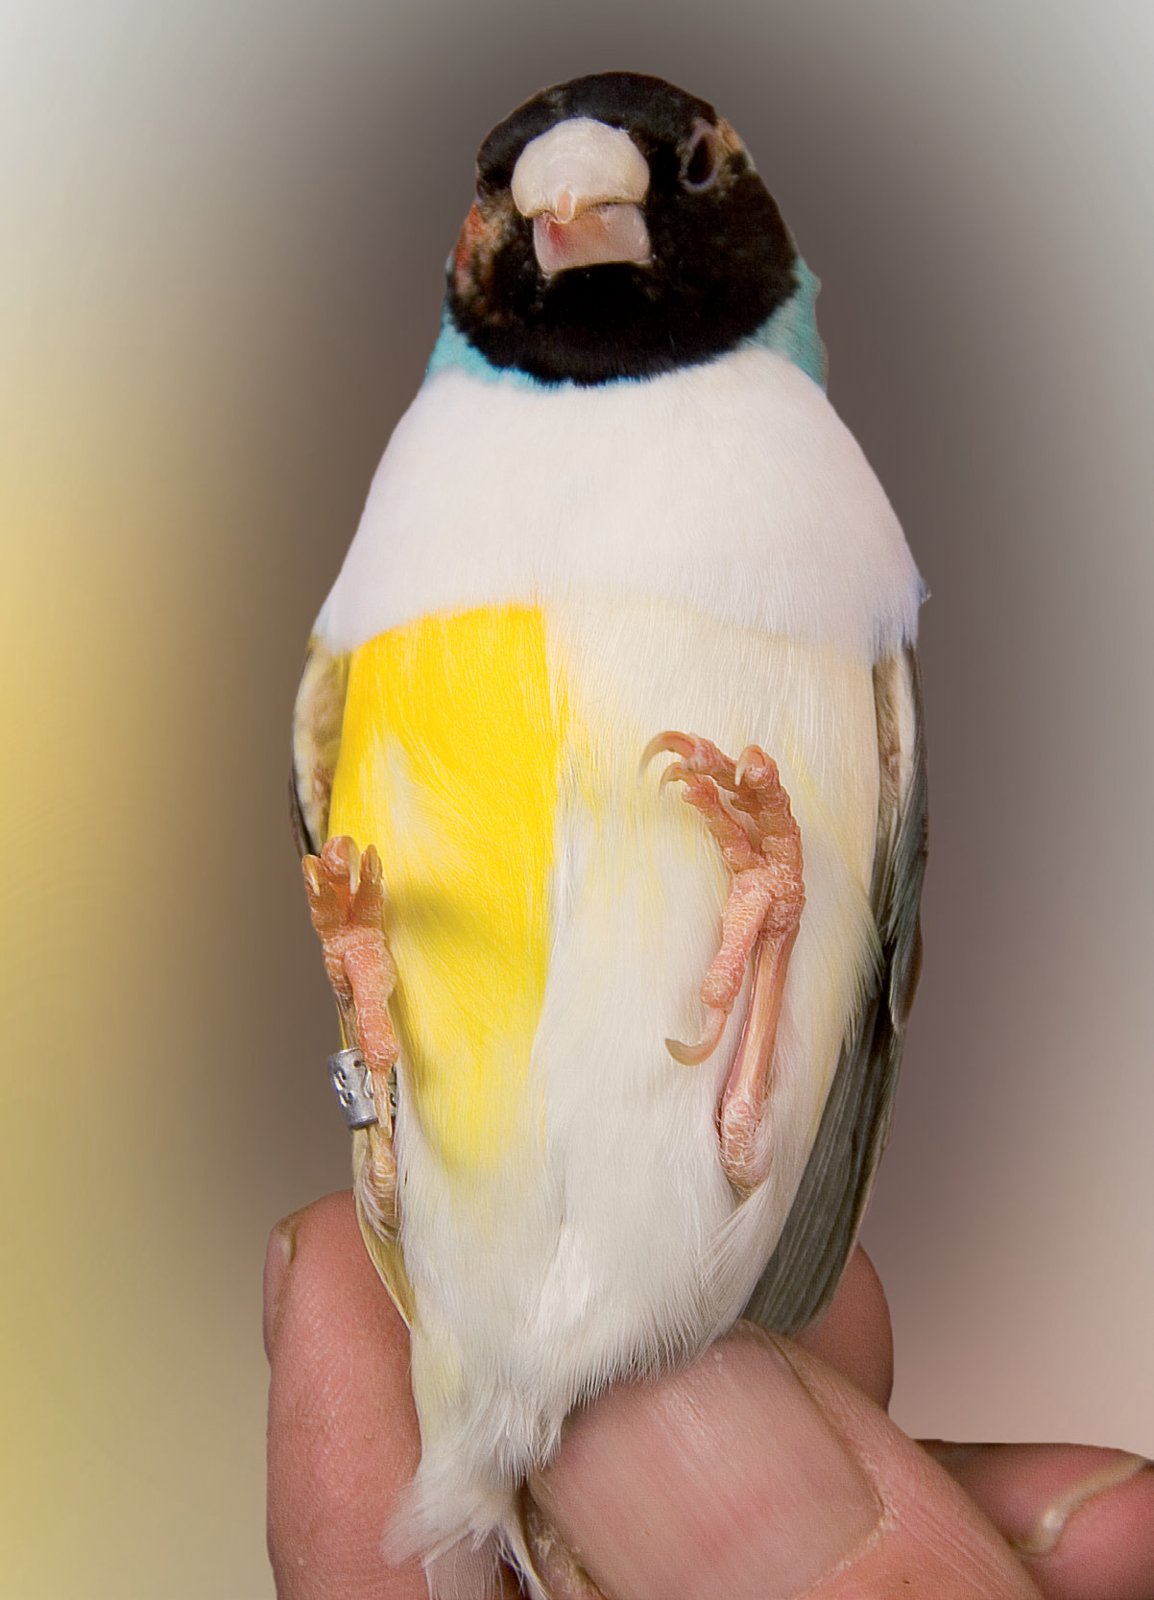
Con el término de half-sider (medio lado o parte, traducido al español) conocemos a las aves que manifiestan en la parte izquierda del cuerpo un color completamente diferente a la parte derecha. Es decir, cada mitad del cuerpo, simétricamente, corresponde a un fenotipo distinto. Estos ejemplares también son conocidos con los nombres de simétricos bicolores, quimeras o mosaicos genéticos. Se trata de un fenómeno poco frecuente, de baja proporción. Ha sido observado en numerosas especies de aves: canario, periquito, diamante de Gould, agapornis, diamante mandarín, camachuelo, etc. Se han observado los siguientes canarios half-sider: canario ágata mitad blanco dominante y mitad rojo, canario mitad blanco recesivo y mitad rojo, canario mitad verde y mitad bruno, canario mitad bronce y mitad gris.
Se han observado algunos ejemplares half-siders especiales, ya que esta aberración afecta a la repartición simétrica de los caracteres sexuales (mosaico) y reciben el nombre de ginandromorfos (mosaicos sexuales), entre ellos citamos: un canario rojo mosaico con la mitad izquierda de fenotipo de macho y la mitad derecha con fenotipo de hembra; asimismo, un macho ágata rojo mosaico, mostrando un fenotipo de macho en el lado izquierdo y de hembra en el lado derecho. Estos ejemplares observados se muestran estériles. No se trata de un carácter transmisible a la descendencia al no afectar la mutación o alteración genética a los gametos.
Para que se presente el fenotipo half-sider, los pájaros han de ser heterocigotos para el color, o bien tratarse de ejemplares hermafroditas, con gónadas masculinas y femeninas, en el caso de los ginandromorfos, debido a la pérdida de algún cromosoma sexual e incluso a disfunciones hormonales severas o anormalidades en el proceso de división celular (mitosis) que afecten a los cromosomas sexuales y que, posiblemente, hayan ocurrido en los primeros estadios de la división celular. En un mismo individuo aparecen células con diferente dotación cromosómica o genotípica procedente de divisiones celulares atípicas de un único cigoto. El mosaicismo puede originarse en diferentes fases del desarrollo embrionario e incluso tras el nacimiento del ejemplar.
Agradecimientos
A todos los criadores de aves que con su inmensa afición y actividad han contribuido a la impresionante variabilidad fenotípica presente en las aves domésticas y al conocimiento de los mecanismos de transmisión hereditaria de los diferentes caracteres. La presencia como biólogo, juez y criador en los criaderos, pajarerías, concursos y ferias ornitológicas a lo largo de casi medio siglo en España y otros países, me ha permitido observar detenidamente y valorar las decenas de miles de ejemplares criados y expuestos por ellos.m
Referencias
A Aguillon, Stephanie et al. Extensive hybridization reveals multipli coloration genes underlying a complex plumage phenotyphe. Proceedings of the Royal Society B: Biological Sciencies. 2020.
Aberraciones cromáticas del plumaje en aves: nuevos reportes en Chile. 2011. Boletín chileno de Ornitología 17 (2).
Aberraciones de pigmentos de melaninas en la coloración de las plumas de cuatro especies acuáticas en baja California.
Albinismo, leucístico, albinismo parcial, melanismo, etc…: mejor cambiar este vocabulario!!!. La Chirioca. Número 8. 2009.
Andrew J. Parnell et al. Spatially modulated structural colour in bird feathers. Scientific Reports. 2015.
Cuevas Martínez, Rafael. Epigenética y Ornitología. Ornitología Práctica. Número 55. Croma Press.
Cuevas Martínez, Rafael. Eredità poligenetica nel canario. Italia Ornitologica. 10/1999.
Cuevas Martínez R. Genética y reproducción aplicadas a la ornitología deportiva. Croma Press 2012.
Cuevas Martínez, Rafael. Genoma del canario. Ornitología Práctica. Croma Press.
Cuevas Martínez, R. Los canarios lipocrómicos y melánicos. Hispano Europea. 2010.
Cuevas Martínez, Rafael. Selección sexual y dimorfismo en las aves. Ornitología Práctica. Número 90.
Dawkins Richard. El fenotipo extendido. El largo alcance del gen. Capitán Swing. 2017.
Dawkins Richard. Evolución. El mayor espectáculo sobre la Tierra. 5ª edición. Espasa. 2010.
Epigenetic and phenotypic variability: some interesting insights from bird. C. Frésard, M. Morrison, JM et al. 2013.
Erick R. Rodríguez y col. México. Nuestros registros de aves con normalidad pigmentaria en México y propuesta de clave dicotómica para la identificación de casos.
Galván, Ismael. La vibración molecular contribuye al color de las plumas de las aves. CSIC. 2018.
Genética. UCM. 2016.
Gonnissen; Louis. Acromelanisation chez le Merle à tête colorée. CRO/COM. 2003.
Griffiths Anthony JF et al. Genética 9ª edición. McGraw-Hill Interamericana. 2008.
Klug Williams S, Cumming, Michael R et al. Conceptos de genética. 10ª edición. Pearson. 2013.
Makherjee, Siddarta. El gen. Una historia personal. Debate. 2017.
Martínez Trujillo, M y Sáenz Romero, C. Principios de Genética Mendeliana. 2ª edición México 2003.
Nurse Paul, (premio Nobel). What is life? Understand Biology in five steps. David Fickling Books. 2020.
Paz César. Genética molecular y Citogenética humana. Ecuador. 2014.
Pérez-Rodríguez, Lorenzo. La medición del color: técnicas y fundamentos para el estudio de la ecología de las aves. Revista de anillamiento. Numero 31-32. 2013.
Prum, Richard O. La evolución de la belleza. Ático de los libros. Barcelona. 2019.
Revista Italia Ornitológica FOI. Diversos artículos.
Rosalyn Price-Waldm and Mary Caswell. Avian coloration genetics: recent advances and emerging questions. 2021.
Sanz, Elena. ¿Por qué a los pájaros no les salen canas? 2016.
Yusti-Muñoz, Ana Paola y H. Velandia-Perilla, Jorge. Un caso de leucismo en Columbina talpacoti en el Valle del Cauca. Colombia.
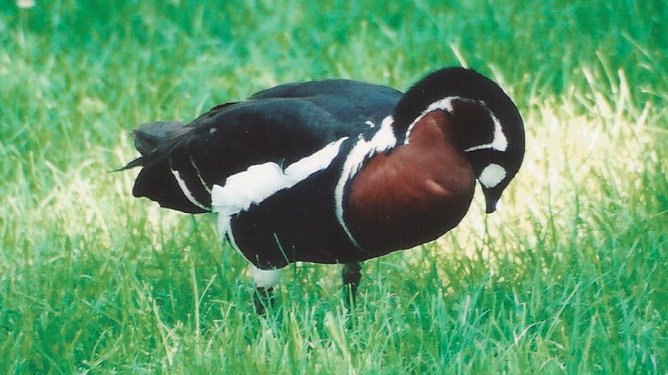
2. La barnacla cuellirroja presenta un diseño inconfundible con tonalidades blancas, negro y castaña.
3. La tórtola turca es una especie de la familia Columbidae donde el macho y la hembra son similares; o sea, el dimorfismo sexual está ausente. Es característico y distintivo el collar negro rodeado de blanco que rodea al cuello.
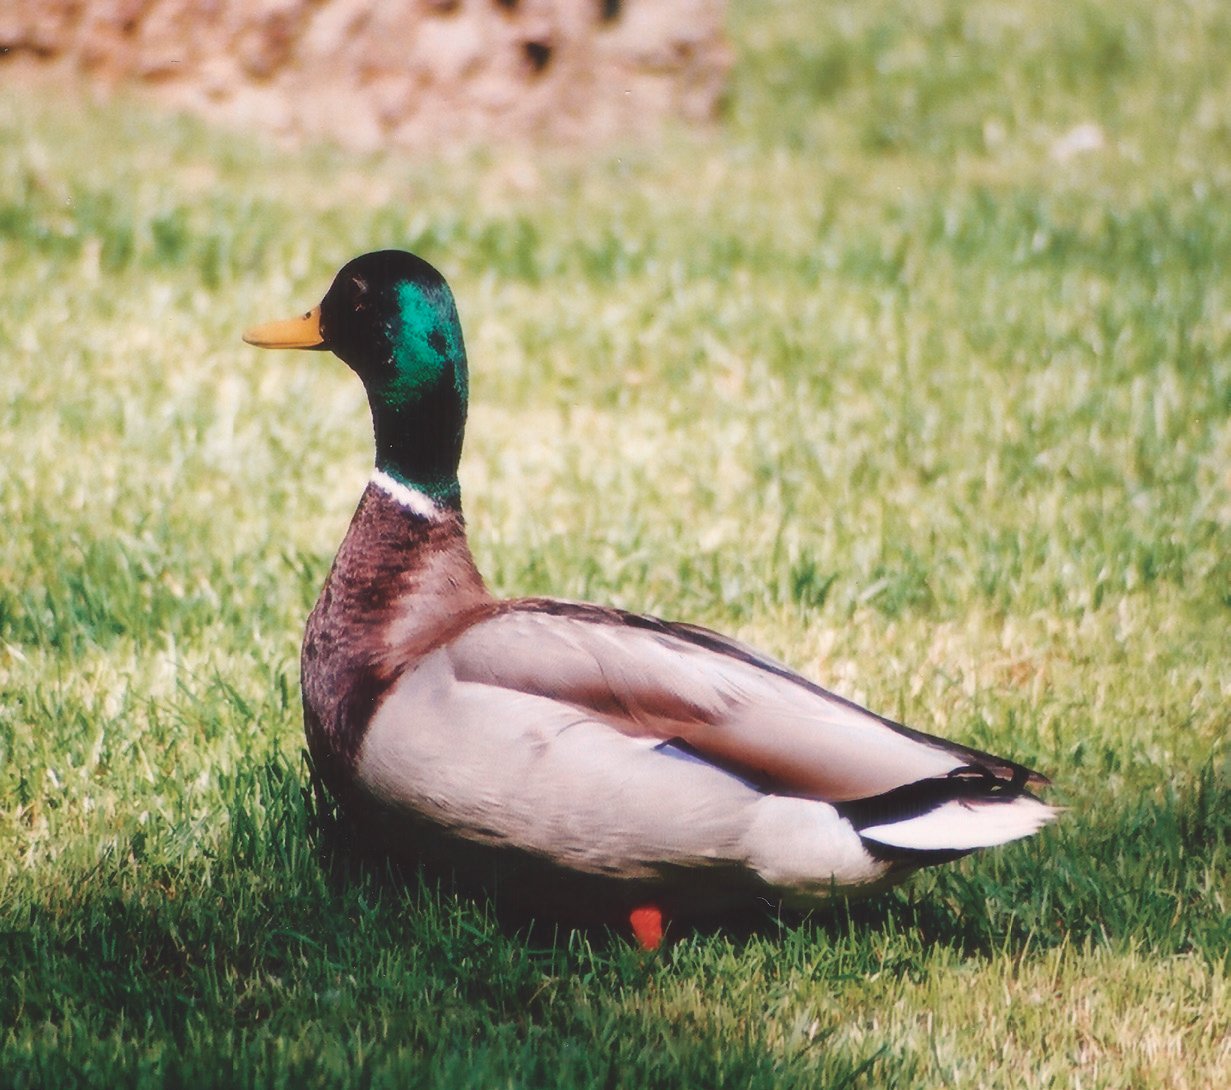
4. Ánade real (macho). Esta especie presenta un dimorfismo sexual muy evidente, tanto en el plumaje como en la coloración del pico-. La cabeza muestra un color verde iridiscente. El llamado espejuelo presente en las rémiges secundarias identifica a la especie y expresa un color azul o morado según el ángulo de observación (iridiscencia).
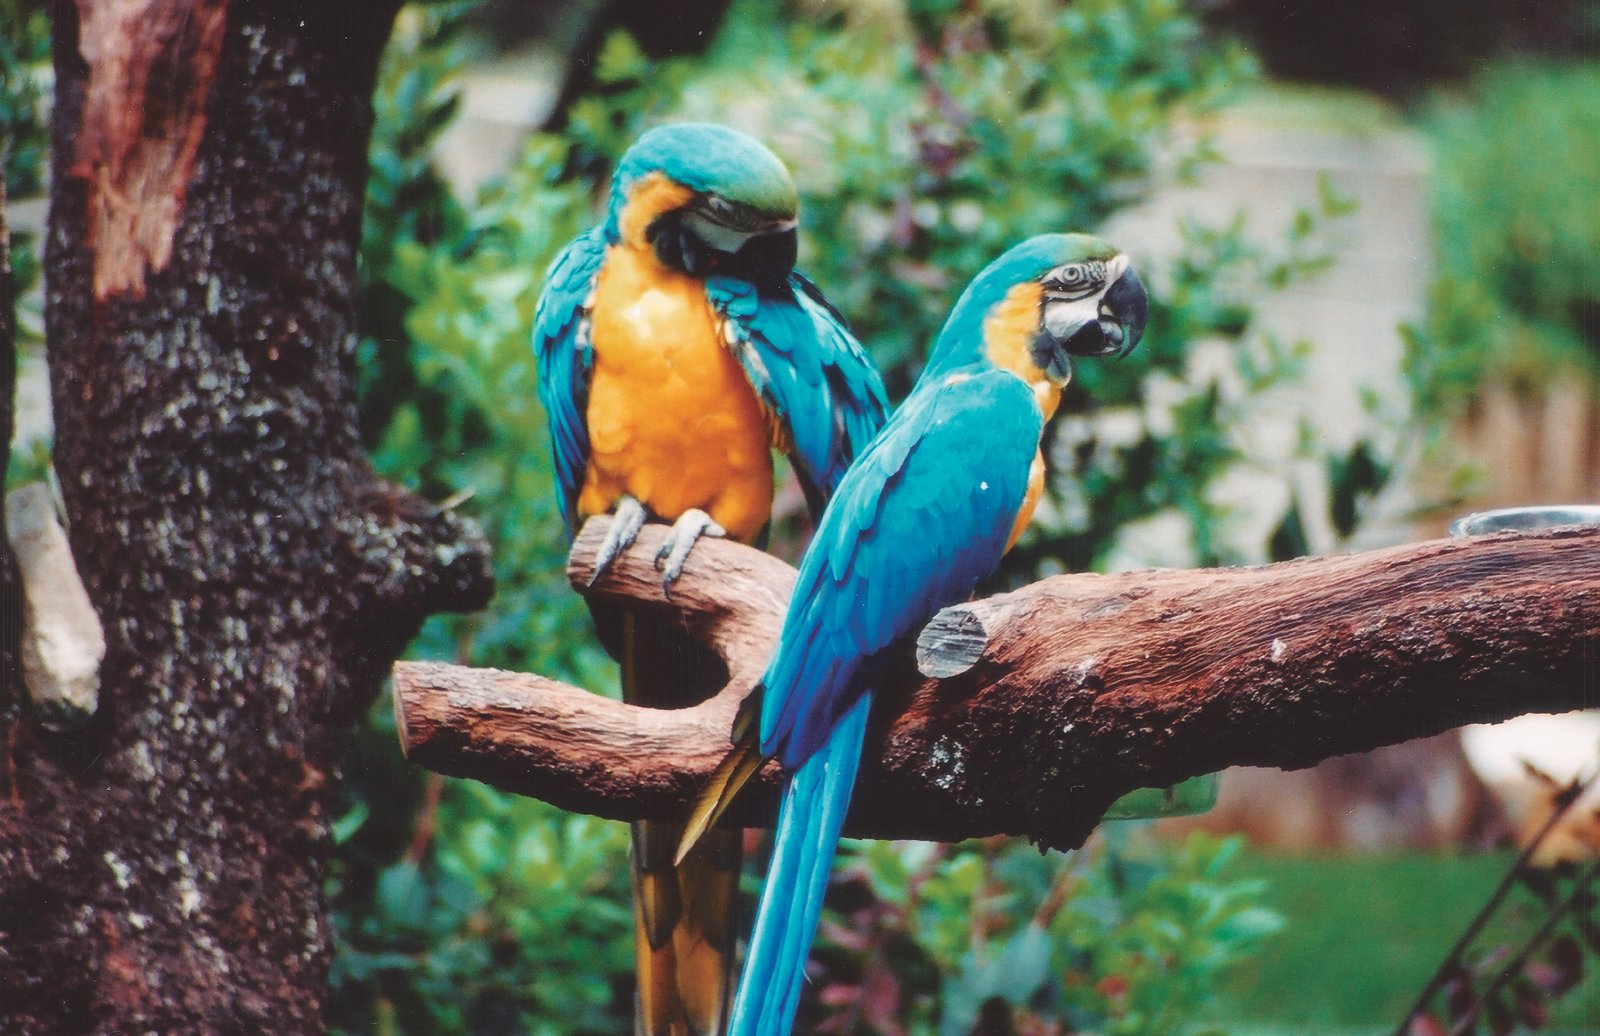
5. En los guacamayos no se presenta dimorfismo sexual y es necesario, en la mayoría de las especies recurrir a diferentes métodos de sexaje para diferenciar al macho de la hembra, como en el guacamayo azul y amarillo, especie del género Ara.
Texto: Rafael Cuevas Martínez. Créditos fotográficos conservados en el artículo.