

Texto y gráficos: Rosa María Martínez Espinosa. Doctora en Biología. Departamento de Agroquímica y Bioquímica. Facultad de Ciencias. Universidad de Alicante.
Papel biológico y efectos en las aves
Introducción.Descripción de la molécula de glutatión.
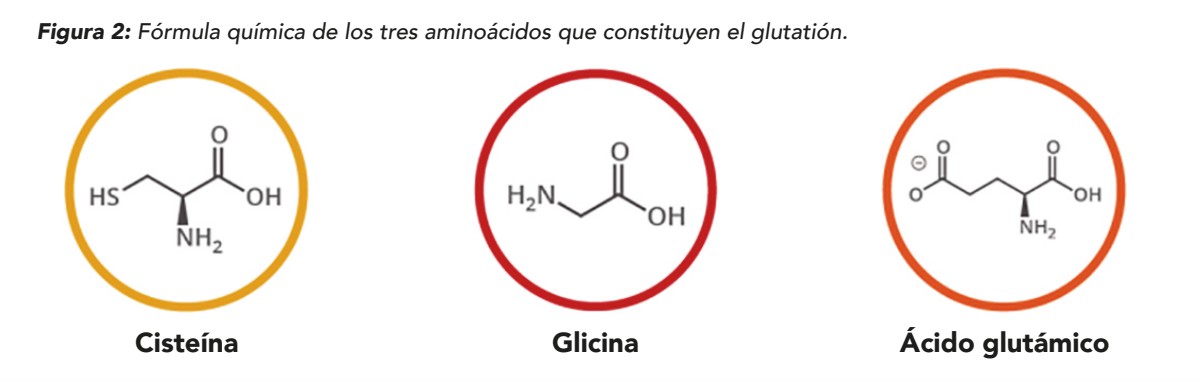
El glutatión (GSH) (Figura 1) es un tripéptido, es decir, una molécula formada por tres aminoácidos no esenciales (aminoácidos que se pueden ser sintetizados por el organismo): ácido glutámico (o en su forma ionizada glutamato), cisteína y glicina (Figura 2). Sus principales funciones biológicas en los seres vivos están relacionadas con su capacidad antioxidante.
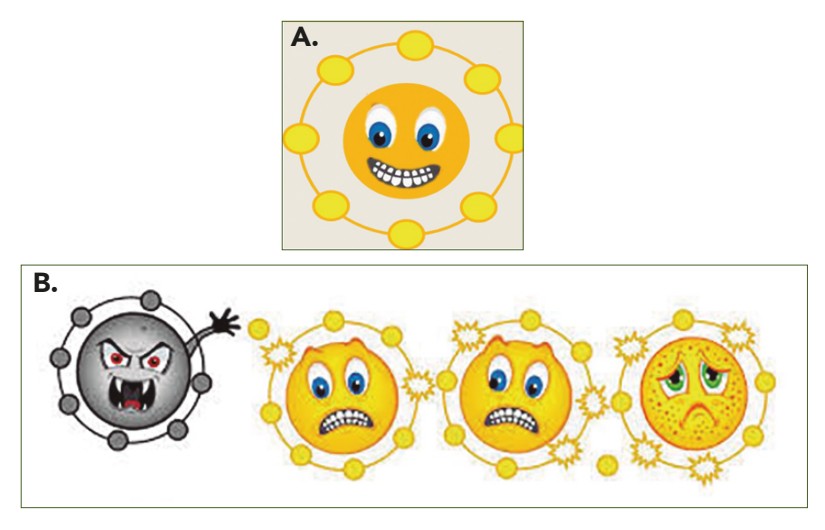
Los antioxidantes son sustancias que el organismo fabrica para combatir el ataque de los radicales libres. Así, un compuesto o molécula es un buen antioxidante cuando protege a las células de esos compuestos químicos llamados “radicales libres” o “especies reactivas”. Existen dos tipos de especies reactivas: “especies reactivas del oxígeno” (ROS) y “especies reactivas del nitrógeno” (RNS). Estas especies reactivas se producen en muchas de las reacciones habituales del metabolismo de todos los seres vivos y su acumulación en las células y tejidos provoca daños que en muchas ocasione son irreparables. Las especies reactivas del oxígeno, por ejemplo, son causantes en gran medida del proceso de envejecimiento.
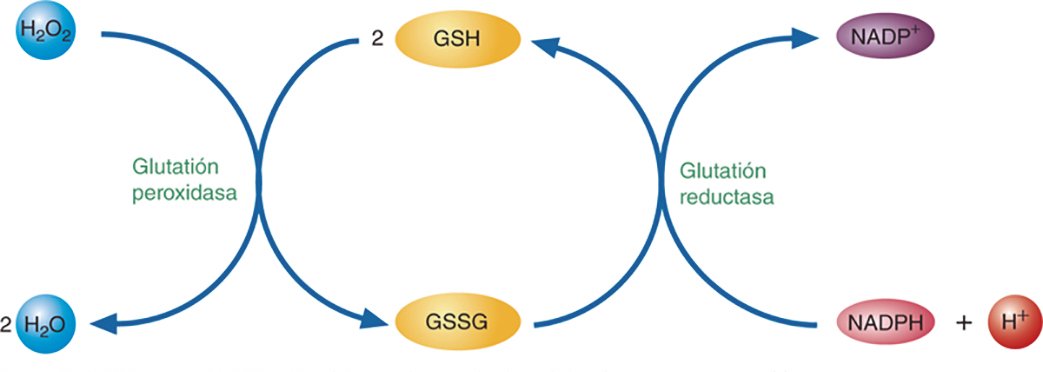
El glutatión ejerce esta capacidad antioxidante gracias a su participación en reacciones químicas que implican la transferencia de electrones (reacciones redox). Así, el glutatión puede presentar dos formas: oxidada, llamada disulfuro de glutatión (GSSG) y reducida, llamada glutatión (GSH).
En las células y tejidos sanos, el glutatión se encuentra principalmente en su estado reducido (GSH: supone aproximadamente el 90 % del total de glutatión) y, en mucha menor proporción, en su estado oxidado (GSSG: 10% restante). De hecho, la proporción GSH/GSSG dentro de las células de los tejidos tanto de animales como de vegetales, se utiliza a menudo como “indicador” del estado oxidativo de la célula y de la toxicidad celular (cuanto mayor es la cantidad de GSH, menor es la toxicidad celular).
Las dos formas del glutatión GSSG y GSH se interconvierten una en la otra de forma cíclica según las necesidades de las células y tejidos gracias a dos enzimas (biocatalizadores) (Figura 3). La enzima glutatión peroxidasa convierte el GSH (forma reducida) en GSSG (forma oxidada). La enzima glutatión reductasa realiza la reacción inversa.
Mecanismo de actuación de las moléculas antioxidantes: el caso del glutatión.
Para entender de forma sencilla cómo el glutatión, u otras moléculas antioxidantes, combaten el efecto negativo de las moléculas ROS y RNS, podríamos decir que las moléculas ROS y RNS se encargan de oxidar, es decir, de quitar electrones a otras moléculas, mientras que el glutatión cede electrones a otras moléculas paliando así el efecto negativo provocado por ROS y RNS.
Funciones biológicas del glutatión en animales.
Tal y como se ha mencionado, el glutatión es probablemente el antioxidante endógeno más potente producido por las células, y participa directamente en la neutralización (eliminación) de radicales libres y compuestos de oxígeno reactivo, así como en el mantenimiento de los antioxidantes exógenos; por ejemplo, las vitaminas C y E, en sus formas reducidas (activas). Gracias a reacciones en las que el glutatión se combina con esas especies reactivas, se consigue la “desintoxicación” de muchos xenobióticos (compuestos extraños) y agentes carcinógenos, tanto orgánicos como inorgánicos.
Así, el glutatión tiene los siguientes efectos en el organismo:
- Es esencial para que el sistema inmunológico pueda ejercer todo su potencial.
- Desempeña un papel fundamental en numerosas reacciones metabólicas y bioquímicas tales como la síntesis y reparación del ADN, la síntesis de proteínas, la síntesis de prostaglandinas (hormonas), el transporte de aminoácidos y la activación de enzimas (proteínas que actúan como catalizadores biológicos de las reacciones químicas que se desarrollan en todos los seres vivos).
En consecuencia, todos los sistemas del organismo animal pueden verse afectados por el estado del sistema glutatión, especialmente el sistema inmunitario, el sistema nervioso, el sistema gastrointestinal y los pulmones.
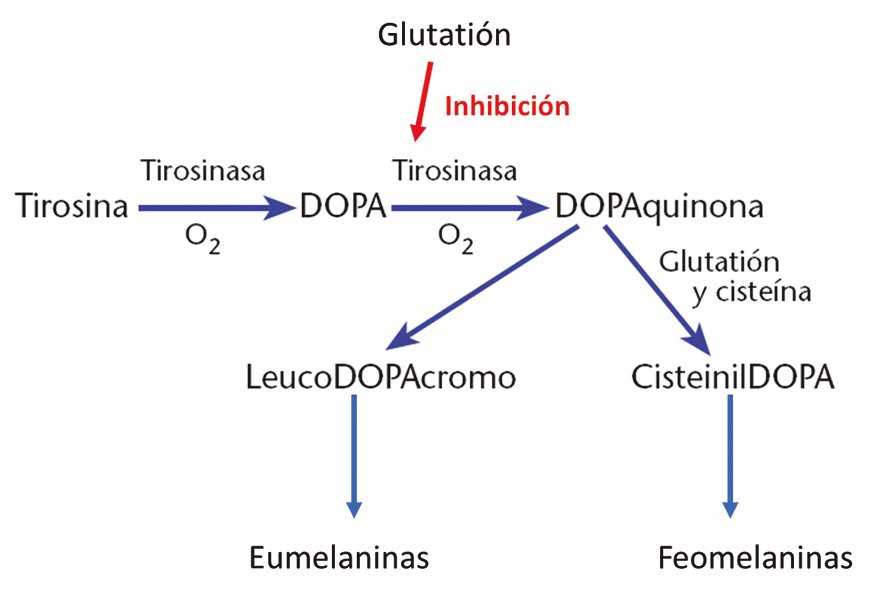
Glutatión y síntesis de melaninas en aves Eumelaninas y feomelaninas están entre los pigmentos más abundantes en animales vertebrados. La mezcla de estos compuestos, la concentración de cada uno de ellos y la forma en la que se depositan entre la estructura de las plumas, cornamentas y células de la piel da lugar a una gran variedad de colores y tonalidades. Diversos estudios sobre la síntesis de melaninas y el color del plumaje de las aves han puesto de manifiesto que el glutatión está directamente relacionado con el proceso de fabricación de las melaninas.
El glutatión inhibe competitivamente la síntesis de melanina en la reacción de la tirosinasa (enzima) y la L-Dopa mediante la interrupción de la capacidad de la L-Dopa para unirse a la tirosinasa durante la síntesis de melanina. La inhibición de la síntesis de melanina se ve contrarrestada por el aumento de la concentración de L-DOPA, pero no por el aumento de la tirosinasa (Figura 5). Así, el glutatión favorece la fabricación de la feomelanina (rojo-marrón) e inhibe la síntesis de eumelanina (negro-gris), mientras que otras hormonas como las melanocortinas tienen el efecto opuesto.
Por tanto, para la síntesis de feomelanina (feomelanogénesis) se requieren altas concentraciones de glutatión, mientras que la eumelanogénesis es inhibida por el glutatión. Esto pone de manifiesto que especies animales que fabrican mucha feomelanina probablemente están más limitadas que las especies o ejemplares que fabrican más eumelanina a la hora de llevar a cabo otros procesos metabólicos. Dicho en otras palabras, los ejemplares feomelánicos son a priori más sensibles por estar más expuestos a estrés oxidativo. Para llegar a estas conclusiones se han realizado diversos estudios de investigación con gorrión común (Passer domesticus) y otras aves de mayor porte como halcones (Falco peregrinus) o la lechuza común (Tyto alba).
Por otro lado, el glutatión también se ha descrito como una molécula vinculada a un fenómeno denominado “polimorfismo de coloración”, esto es, en algunas especies de aves (entorno al 3,5% de las especies descritas), algunos individuos presentan grandes diferencias de pigmentación. En estos casos, la correlación directa que se ha establecido es que aquellos individuos que presentan altos niveles de melanina presentan niveles bajos de glutatión. Investigaciones realizadas en España (CSIC-Parque Nacional de Doñana- Islote canario de Alegranza) con pollos de águila calzada (Hieraaetus pennatus) y de halcón de Eleonor (Falco eleonorae) muestran que el nivel de glutatión es más de un 5% superior en águilas de fase clara, cuya concentración media es de 3,2 micromoles por cada gramo de sangre (mmol/g). En el caso de los halcones, este factor se ve influido por el género. Las hembras de fase clara tienen un 10% más de glutatión. No obstante, son los machos de fase oscura los que superan la concentración de esta molécula en un 9% a los de fase clara, con 2,43 mmol/g. Además, se ha observado que los ejemplares de plumaje oscuro también presentan una mayor concentración de otros antioxidantes alternativos en el plasma sanguíneo, lo que compensaría su falta de glutatión. Esta necesidad de compensación puede suponer una desventaja fisiológica en términos de tasas menores de fecundidad y supervivencia respecto a sus congéneres más claros.
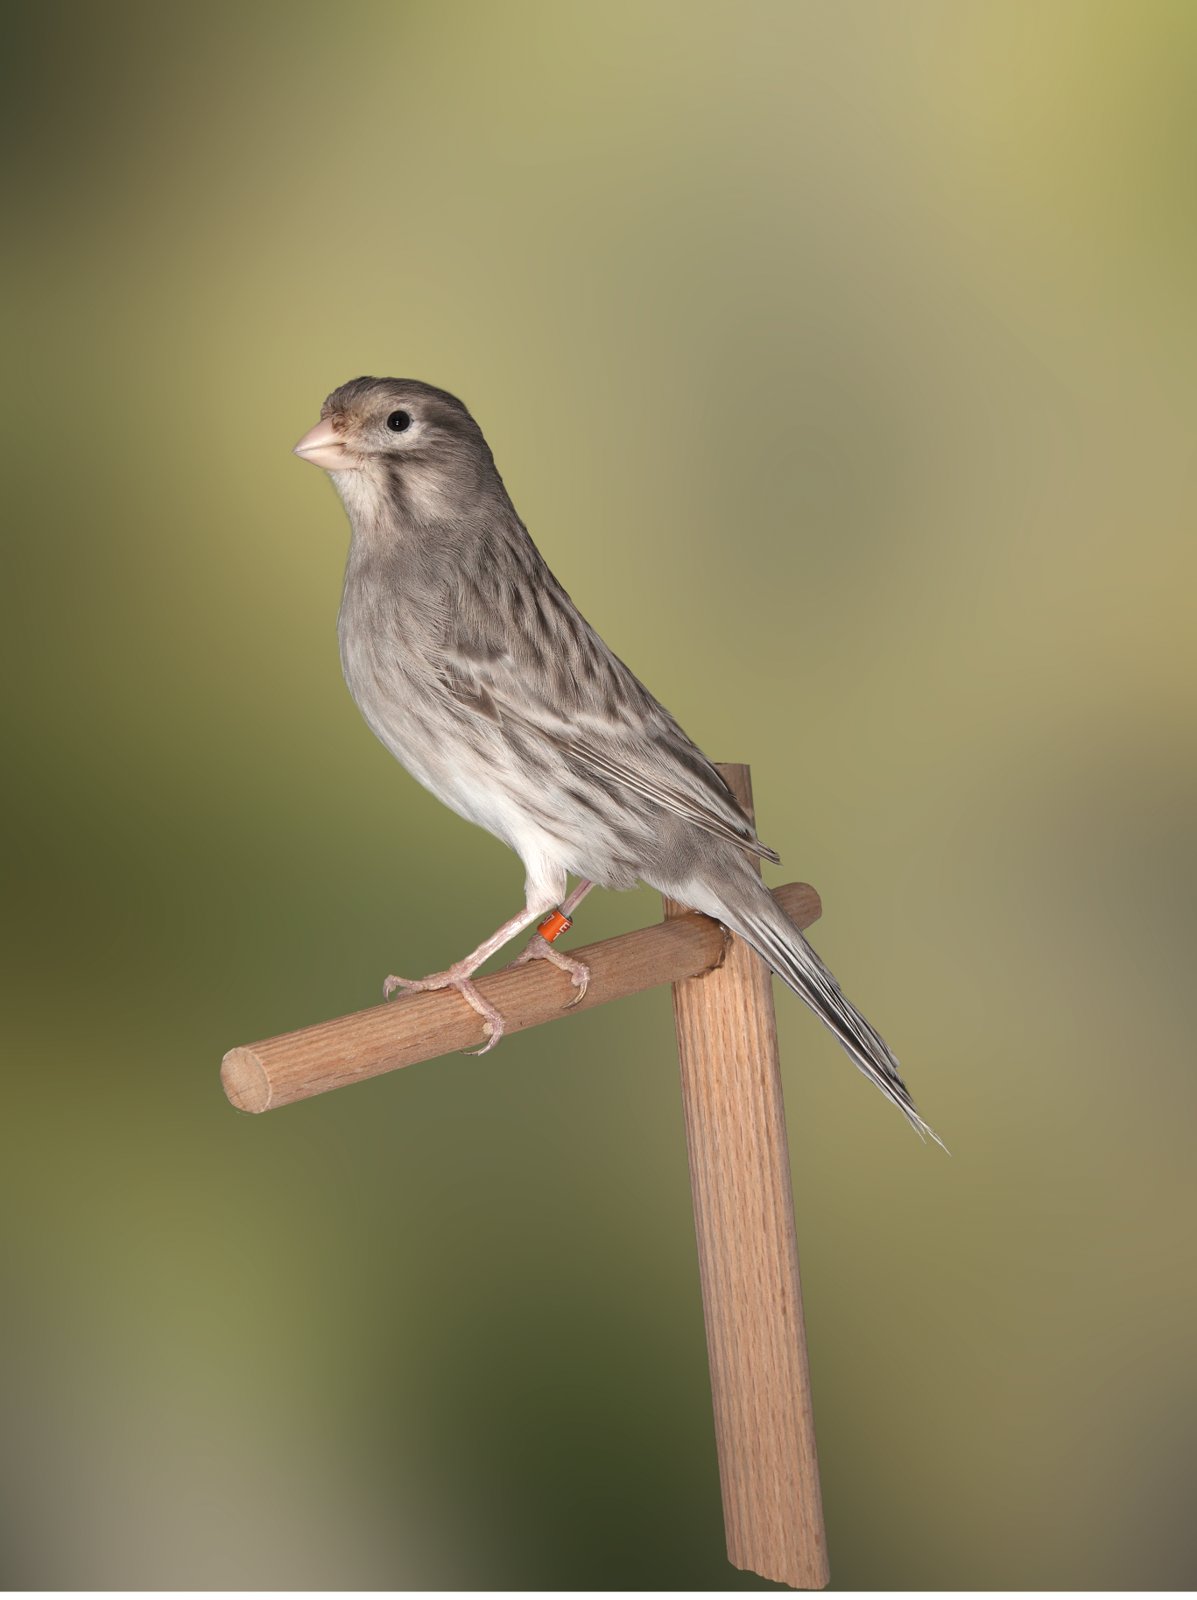
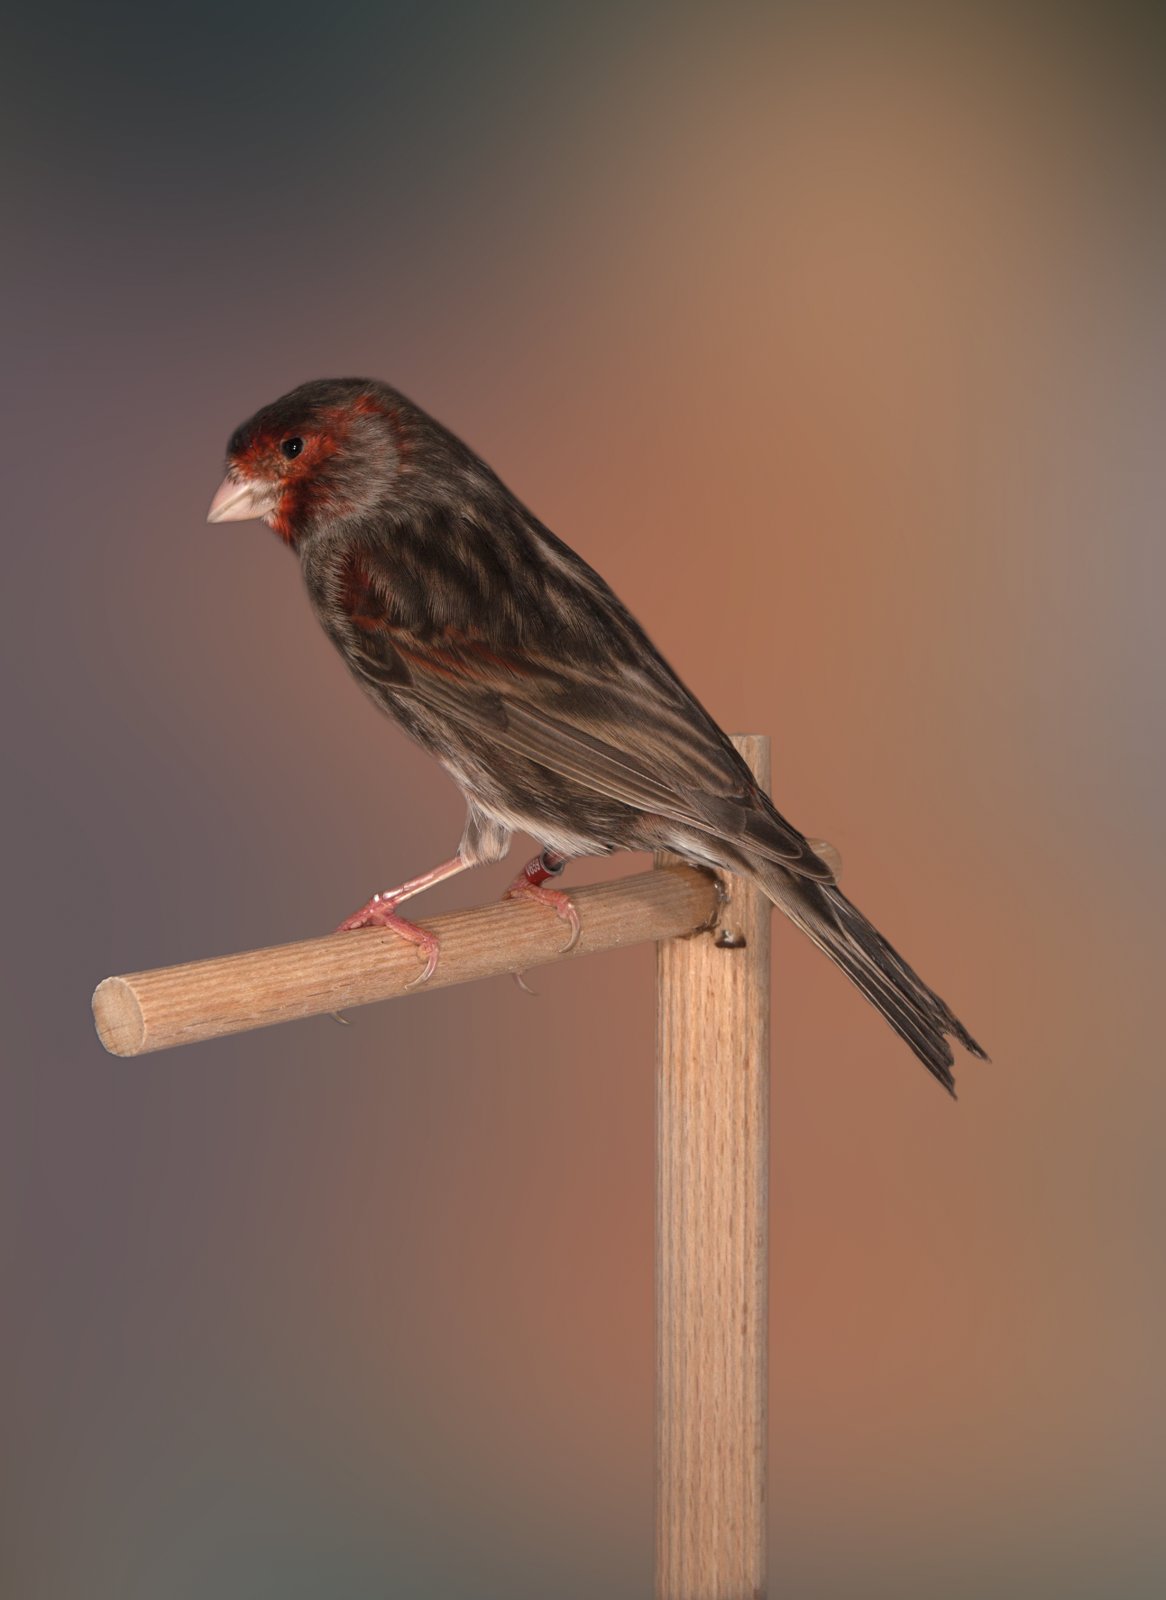
Fuentes naturales de glutatión: Para mantener unos niveles adecuados de glutatión es necesario consumir alimentos que lo contienen: frutas y verduras frescas, especialmente los espárragos, las fresas, la calabaza, las espinacas, el aguacate, las nueces, el brócoli o las coles de Bruselas. Normalmente, las aves que se crían en ornitología deportiva no tienen en su dieta natural todas estas frutas y verduras, incluso algunas especies las rechazan por su sabor y/u olor. No obstante, pequeñas porciones de calabaza o brócoli ligeramente cocidos suelen ser tolerados por la mayor parte de fringílidos.
Además, para aumentar la síntesis de glutatión en el propio organismo es muy importante que la dieta suministre los precursores del glutatión, es decir los aminoácidos que lo forman glutamato, cisteína y glicina. De estos tres aminoácidos, probablemente la cisteína sea más difícil de obtener ya que es sensible al calor y pierde muchas de sus propiedades cuando el alimento que las contiene se somete a temperaturas medias/altas (como por ejemplo durante la cocción).
Referencias: Galván I, Alonso-Alvarez C. The expression of melanin-based plumage is separately modulated by exogenous oxidative stress and a melanocortin. Proc Biol Sci. 2009 Sep 7;276(1670):3089-97. doi: 10.1098/rspb.2009.0774. Galván I, Inácio Â, Romero-Haro AA, Alonso-Alvarez C. Adaptive downregulation of pheomelanin-related Slc7a11 gene expression by environmentally induced oxidative stress. Mol Ecol. 2017 Feb;26(3):849-858. doi: 10.1111/ mec.13952.
Galván I, Gangoso L, Grande JM, Negro JJ, Rodríguez A, Figuerola J, AlonsoÁlvarez C. Antioxidant machinery differs between melanic and light nestlings of two polymorphic raptors. PLoS ONE. DOI: 10.1371/journal.pone.0013369 Galván I, Møller AP. Brain size and the expression of pheomelanin-based colour in birds. J Evol Biol. 2011 May;24(5):999-1006. doi: 10.1111/j.14209101.2011.02232.x. Galván I, Moraleda V, Otero I, Álvarez E, Inácio Â. Genetic favouring of pheomelanin-based pigmentation limits physiological benefits of coloniality in lesser kestrels Falco naumanni. Mol Ecol. 2017 Oct;26(20):5594-5602. doi: 10.1111/ mec.14322. Epub 2017 Sep 20.
Galván I, Wakamatsu K, Camarero PR, Mateo R, Alonso-Alvarez C. Low-quality birds do not display high-quality signals: The cysteine-pheomelanin mechanism of honesty. Evolution. 2015 Jan;69(1):26-38. doi: 10.1111/evo.12549
Galván I. Predation risk determines pigmentation phenotype in nuthatches by melanin-related gene expression effects. J Evol Biol. 2018 Dec;31(12):1760-1771. doi: 10.1111/jeb.13379. Epub 2018 Oct 13. Roulin A, Almasi B, Meichtry-Stier KS, Jenni L. Eumelanin- and pheomelanin-based colour advertise resistance to oxidative stress in opposite ways. J Evol Biol. 2011 Oct;24(10):2241-7. doi: 10.1111/j.14209101.2011.02353.x.
Texto: Rosa María Martínez Espinosa. Créditos fotográficos conservados en el artículo.