Texto: Juan Jesús Montilla Pinos C.N: Y-662 Fotos: Javier Mas
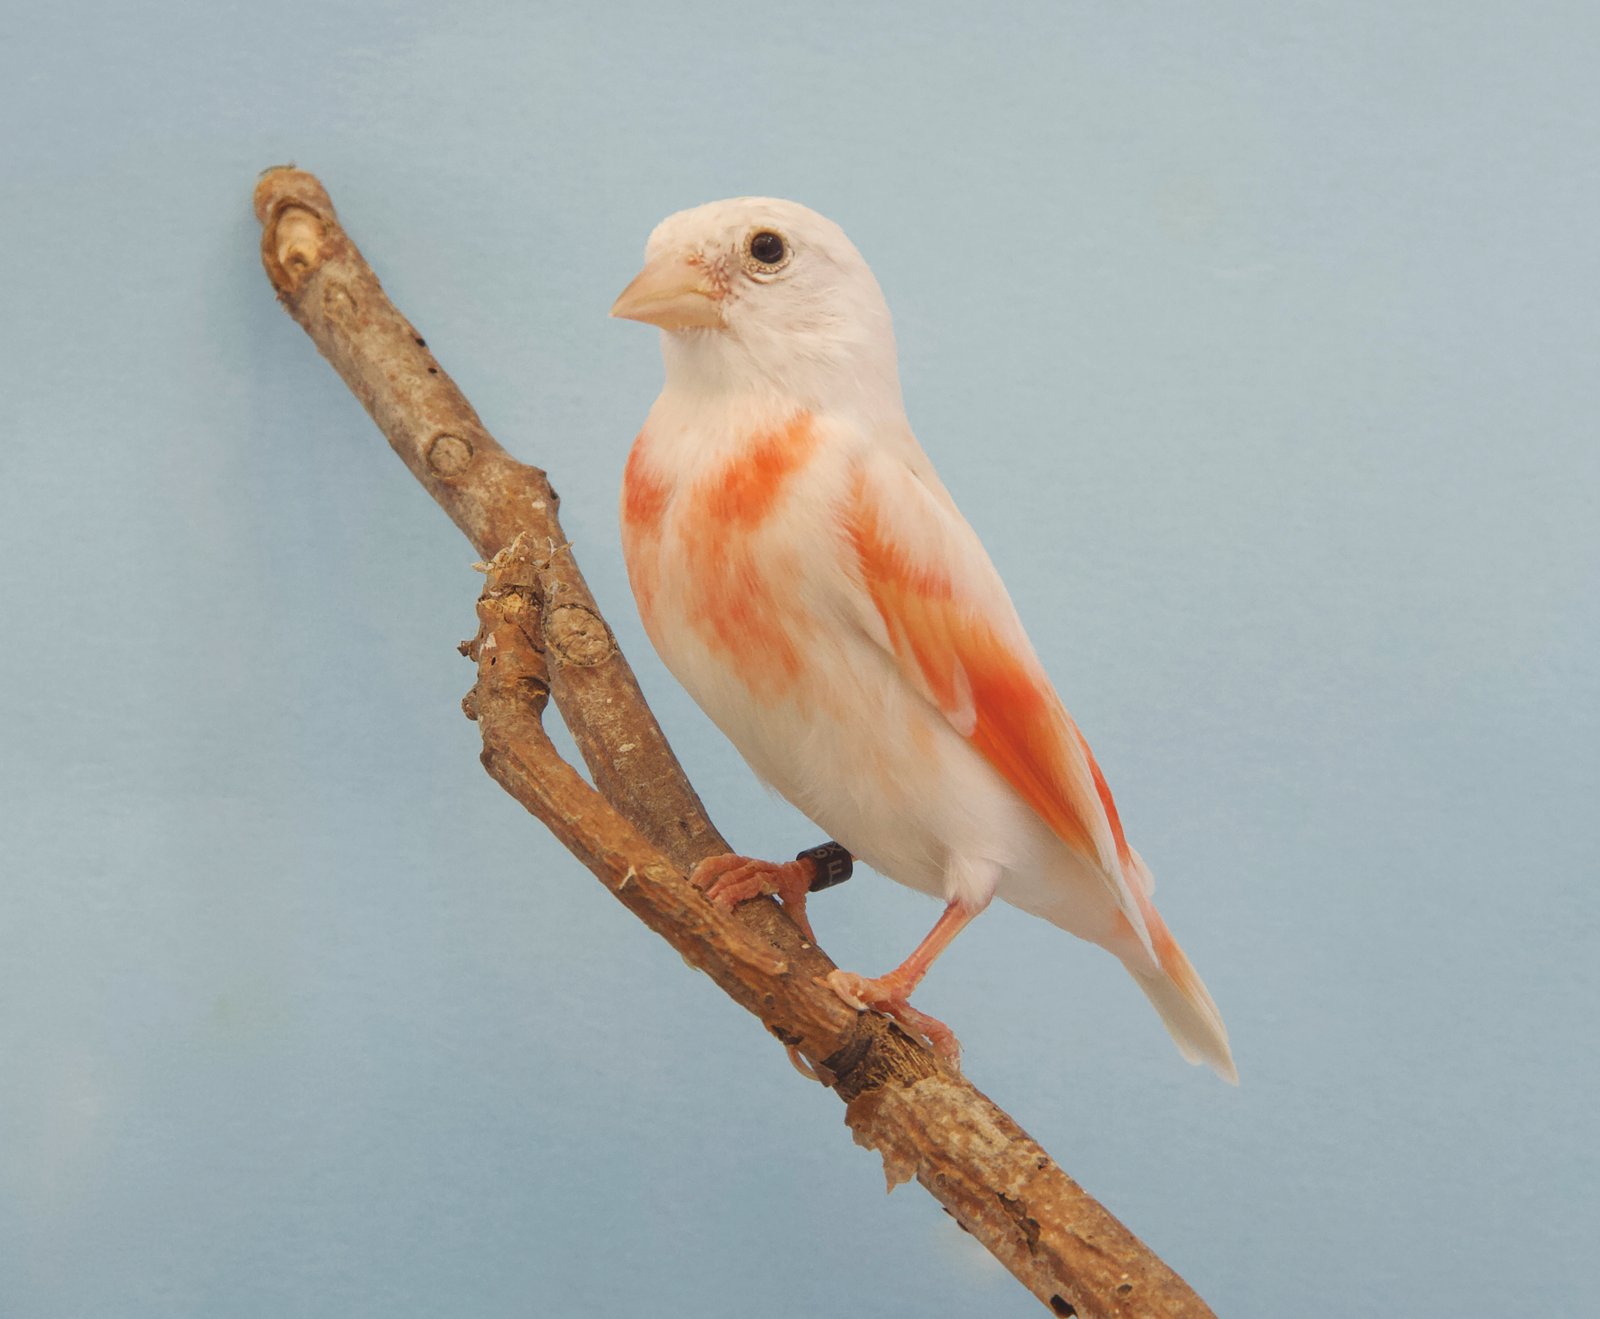
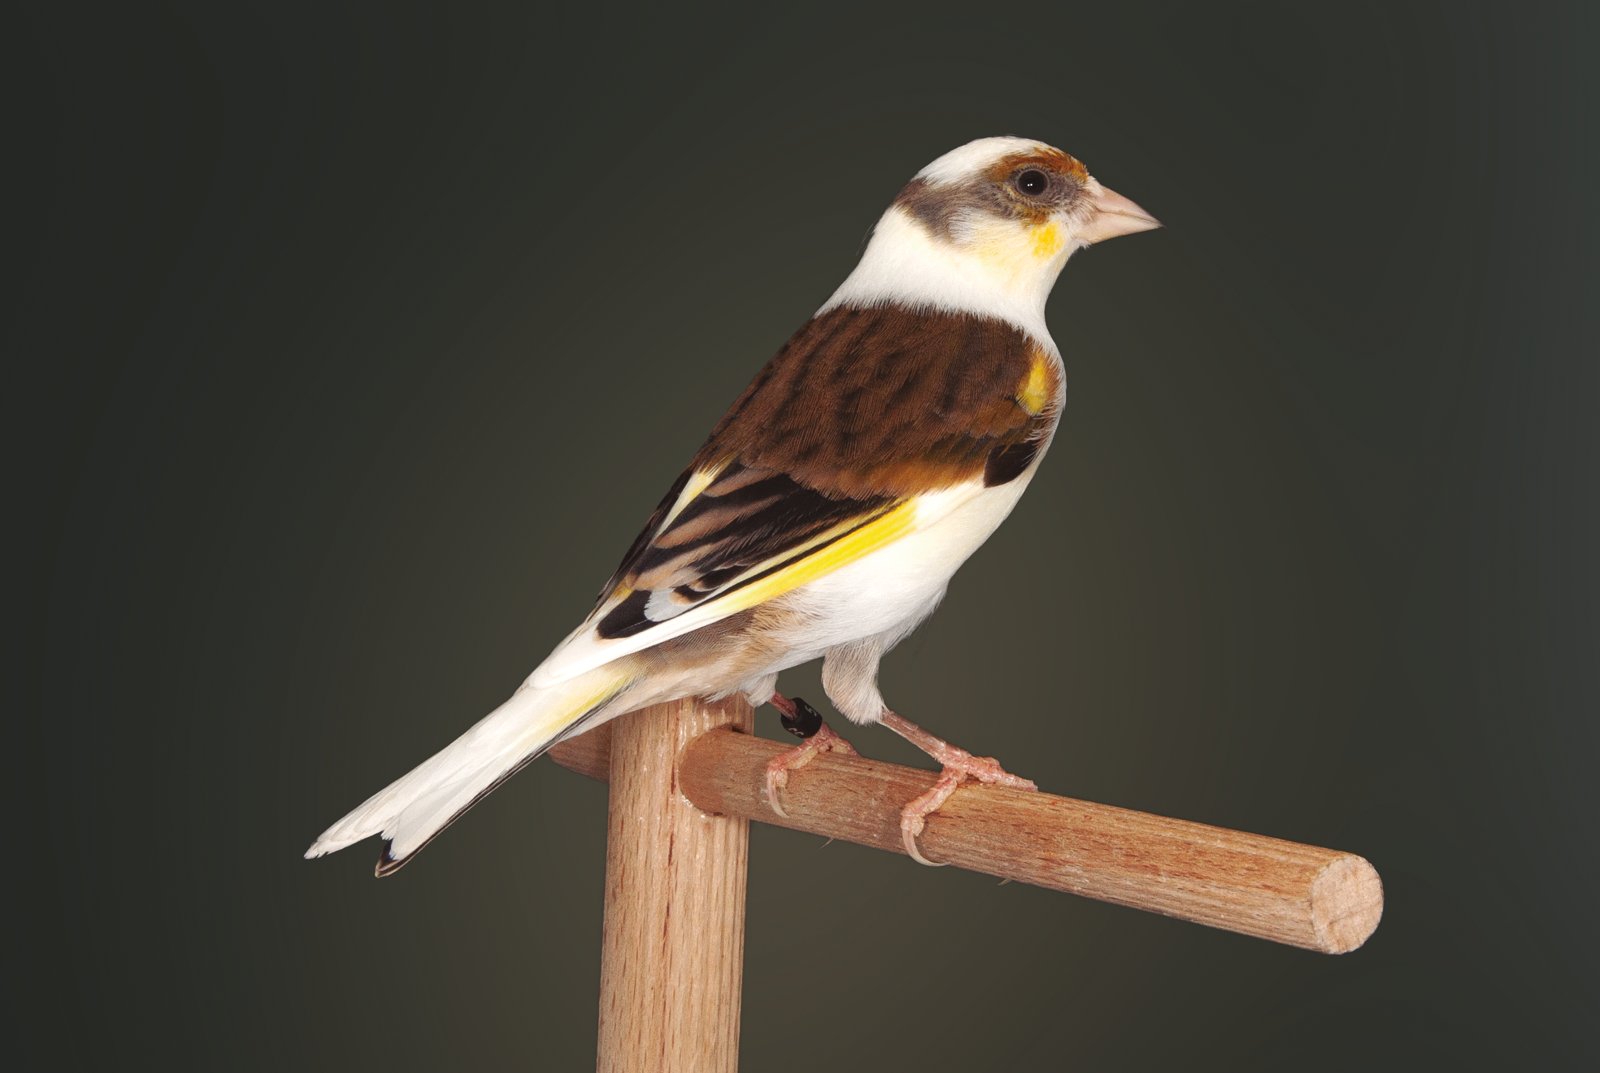
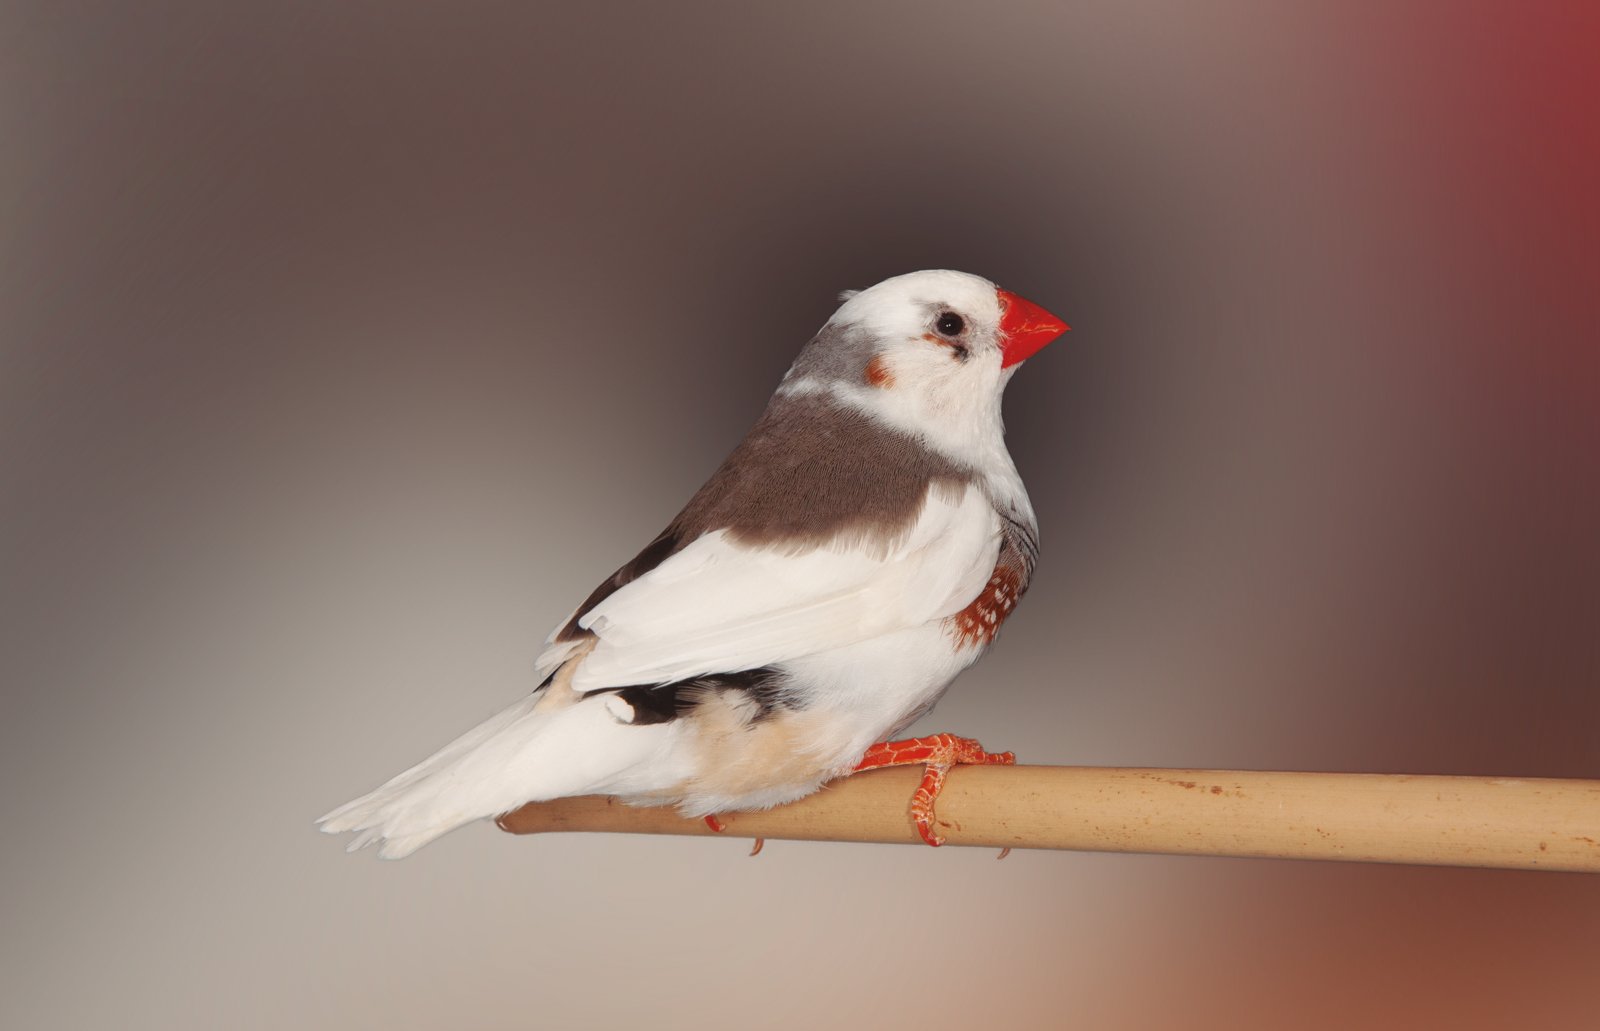
Entre los aficionados a la Ornitología deportiva, hay unos pájaros que siempre llaman mucho la atención; se trata de los ejemplares que presentan plumas blancas o lipocromas en su librea. Tanto mayor es la extensión, mayor es la admiración que causan, especialmente entre los aficionados a las especies de fauna europea como el Jilguero (Carduelis carduelis), el Verderón (Chloris chloris), el Pardillo (Acanthis cannabina), el Verdecillo (Serinus serinus)…. Estos sujetos están afectados de leucismo o amelanismo y se denominan comúnmente pájaros píos.
Existe una laguna de conocimiento en torno a esto. Con este artículo se pretende arrojar algo de luz sobre ello, en concreto sobre el “amelanismo heredable” en especies como el verderón, el jilguero y el canario por poner algunos ejemplos. Hay que hablar de amelanismo heredable, para diferenciarlo de los “desórdenes” en el depósito melánico que pueden ser debidos a multitud de causas, que van desde carencias nutricionales, problemas hormonales, ciertos procesos patológicos, intoxicaciones, medicamentos, factores ambientales, edad,etc… todo esto según ciertos autores y que, de ningún modo será transmitido a la descendencia. En la mayoría de casos de pájaros afectados por este problema que se ven, suelen ser pichones que han acusado cierta carencia nutricional y que con la muda y ayudados, a veces con suplementación, recobran su aspecto típico. Aunque no se puede descartar alguna de las anteriores causas citadas, por la complejidad empírica que representa diagnosticar el origen primario y que además, no se debe obviar que existan algunas patologías que puedan desencadenar ciertos amelanismos y que puedan presentar también un componente genético heredable.
Existe otro término empleado para con estos ejemplares, que es el de; leucismo (del griego leukós, blanco), y aunque su etimología hace referencia sólo al blanco, esta ausencia de melanina se suele extrapolar a especies que, por afectación de dicho fenómeno en zonas de su plumaje, presentarán su lipocromo de base (ejemplo amarillo en verderón, canario, verdecillo, etc.). Debemos diferenciar leucismo de albinismo (del latín albus, blanco), pues mientras el término leucismo se utiliza para hacer referencia en aves a una ausencia parcial de melanina, el término albinismo indicaría una ausencia total de la síntesis y depósito melánico. Así un ejemplar afectado de un leucismo “total”, presentará un plumaje sin melanina, mostrándose el lipocromo de base, pero sus ojos serán oscuros, mientras que en el ejemplar albino, los ojos serán rojos. Alguna vez podríamos encontrarnos frente a un pájaro pío de ojos rojos; ante este hecho no debemos pensar en la presunta existencia de un albino pío como tal , sino que la explicación más plausible sería que nos encontramos ante un ejemplar afectado por alguna mutación que afecta al color aparente del ojo y que al cruzar melánico x amelánico, siendo alguno de los progenitores, o ambos, portador visible o genético de ojos rojos, podrá ser heredado este rasgo por sus descendientes en el porcentaje, y con respecto al tipo de herencia genética de dicha mutación (ligada al sexo o autonómica recesiva). Valga de ejemplo el cruce de un canario satiné melánico x canaria lipocromo, donde las hembras pías que naciesen, si se diera el caso, serán todas satiné y por tanto pías de ojos rojos. Debemos apuntar que esto mismo ocurre con el factor Ino (en referencia al phaeo) e inclusive con el eumo. Siendo ésto extrapolable a otras especies cuyos ejemplares sean poseedores de alguna mutación o caracteres similares que den este fenotipo ojos rojos sin ser albinos (jilguero o verderón satiné, lutino, phaeo... o cualquier otra sin determinar).

Estas mutaciones implican, por lo general y dependiendo de cuál sea ésta y como actúe, una gran reducción/inhibición melánica, de ahí el color rojo del ojo al afectarse la eumelanina negra; pero no su ausencia como sucede en el albino. Otros ejemplos de cruces, a modo anecdótico y para ver cómo se amplían las posibilidades a la hora de la supuesta obtención de un sujeto pío con este rasgo fenotípico (centrándonos en el canario), entre los que podríamos citar:
- Macho lipocromo ojos rojos (satiné)x hembra melánica.
- Macho phaeo x hembra lipocromo ojos rojos (phaeo).
- Macho satiné x hembra lipocromo ojos rojos (satiné).
Resto de cruces entre ellos pero con ejemplares portadores, uso de otras mutaciones, etc.
Otra diferencia, que quizá sea la que con cierta curiosidad más interesa al aficionado, es su diferente herencia genética: autosómica recesiva en los sujetos albinos y “sin determinar” en los afectados de leucismo, y que a continuación será objeto de algunas hipótesis reflejadas en este artículo.
Debemos hacer una mención especial al empleo del término “acianismo”, utilizado en el argot entre criadores y que aparece en algunos escritos y publicaciones de ciertos autores, haciendo referencia a este amelanismo/leucismo citado anteriormente. O sea que, se puede entender que se refiere al mismo fenómeno. Si se consulta en la RAE, la palabra acianismo no está en el diccionario. Intentando analizar el término, se entendería que cian procede del inglés “cyan”, y este del griego kyáneos “de color azul marino” y el término ciano- como elemento compositivo cian (II azul). Intentando buscar o razonar una hipotética etimología, trataríamos de justificarlo separando las letras que conforman, a – cian - ismo, y su significado (al menos así se podría entender) como; la falta de color azul. Referencia de uso que, aunque se respeta, no parece adecuada cuando se pueden referir para designar este efecto fenotípico los términos; leucismo y amelanismo.
Dicho esto, un pájaro pío es aquel en el que no todas sus plumas y partes córneas están pigmentadas de melanina, y que puede dar múltiple variedad y resultados poco previsibles en su descendencia. Así el abanico de fenotipos diferentes que se pueden presentar es muy amplio, pasando desde el ejemplar ancestral o mutado melánico con una sola pluma o uña sin pigmentar, hasta el pájaro casi totalmente carente de melanina siendo visible el lipocromo de base (amarillo, rojo o su ausencia; blanco) con una sola pluma melánica.
Hay que aclarar también que, al no haber encontrado el autor bibliografía o estudios que digan lo contrario, se hablará del carácter pío como si del mismo fenómeno se tratara cuando afecta al verderón, verdecillo, canario, gorrión, pardillo, canario, mirlo o jilguero, etc., etc., por citar algunas especies, con la única salvedad del diferente lipocromo de base, o su ausencia, o de la afectación de ciertas mutaciones surgidas al azar o introducidas a partir de otras gamas de color o especies (ejemplos: canario blanco dominante y blanco recesivo, albino, lutino, rubino, cierta fauna mutada en amarillo, etc.), que pueden variar o hacernos perder el norte en la búsqueda de esta supuesta “herencia genética” de estos sujetos píos. En adelante se utilizará el término leucismo para facilitar, tanto al redactor como al lector, la redacción y comprensión de este artículo. Tampoco se profundizará en los procesos fisiológicos hormonales o enzimáticos en relación con este proceso anormal de la melanización, ya que existe muy buena literatura al respecto. Así que se intentará centrar el tema exclusivamente en la genética y con un lenguaje lo más entendible, evitando en la medida de lo posible los tecnicismos.
El leucismo se define como la falta de melaninas en la librea del ave por un problema en el depósito melánico y que es provocado por una alteración genética. Lo que se observa en la práctica en cierta manera, es una codominancia entre genes que expresan la melanina (“melánicos”) y genes que interfieren en dicha expresión melánica (“amelánicos”, es decir; genes alterados/mutados), pero también podría tratarse de una epistasia e inclusive de una herencia autosómica recesiva homocigótica, aunque esta última es rechazada de plano en la bibliografía consultada.
Vamos a repasar ciertas características de cada una de ellas brevemente y según el autor consultado:
Herencia autosómica incompleta codominante
Para que pueda darse, es imprescindible que los dos parenterales sean dominantes y que dicha dominancia sea compartida por ambos, alternando la dominancia en el fenotipo (en cuanto a la ausencia o presencia de melaninas). En la práctica con ciertas especies (ejemplo; el canario) sabemos que del cruce de un ejemplar melánico x un ejemplar lipocromo produce descendencia pía. Otra condición que tiene esta herencia es que sus genes son dominantes y no tiene recesivos, así que por lo tanto no existen ejemplares portadores. Todas estas “normas”, se tienen contempladas, así que en teoría estos ejemplares estarían sujetos a esta Herencia Incompleta Autosómica Codominante Multialélica o Poligénica.
Epistasia doble dominante
De genes duplicados y multialélico. Para que fuese el caso, los dos genes dominantes de distintos loci, de manera independiente uno de otro, serían capaces de dar lugar, en un ejemplar implicado, el fenotipo pío. De igual forma, cuando en el genotipo no existan dichos genes dominantes, quedando sólo los recesivos homocigotos para los dos pares, el fenotipo será del lipocromo de base.
Herencia autosómica homocigótica recesiva:
Para que se diese el caso, se tienen que unir los dos genes recesivos por un lado, y por otro lado el gen recesivo quedar oculto. Existiría el ejemplar portador, es decir: al cruzar ejemplares clásicos o de fenotipo típico, hijos de ejemplares pío, pero que no muestren señal alguna de leucismo, ni en pluma ni en partes córneas, darían en su descendencia ejemplares píos en cierta proporción. Esta teoría es en principio rechazada de plano por los autores consultados.
Lo que en hipótesis parece evidente, en la práctica se ve que con estos ejemplares, estamos ante un Polimorfismo Genético, es decir; una gran variedad de fenotipos diferentes cuando entran en juego estos genes. Hay que tener en cuenta que es trabajo del criador, a la búsqueda del fenotipo lipocromo (o su ausencia en el blanco), seleccionar los ejemplares que muestren menor expresión melánica y mayores zonas lipocromas, ya que se presupone que se reducirán los “genes melánicos” y aumentarán los “lipocromos”, para que, tras sucesivas generaciones y ardua selección, se pueda conseguir el sujeto lipocromo completo (como se supone que sucedió con el primer canario amarillo, según se registra en la bibliografía).
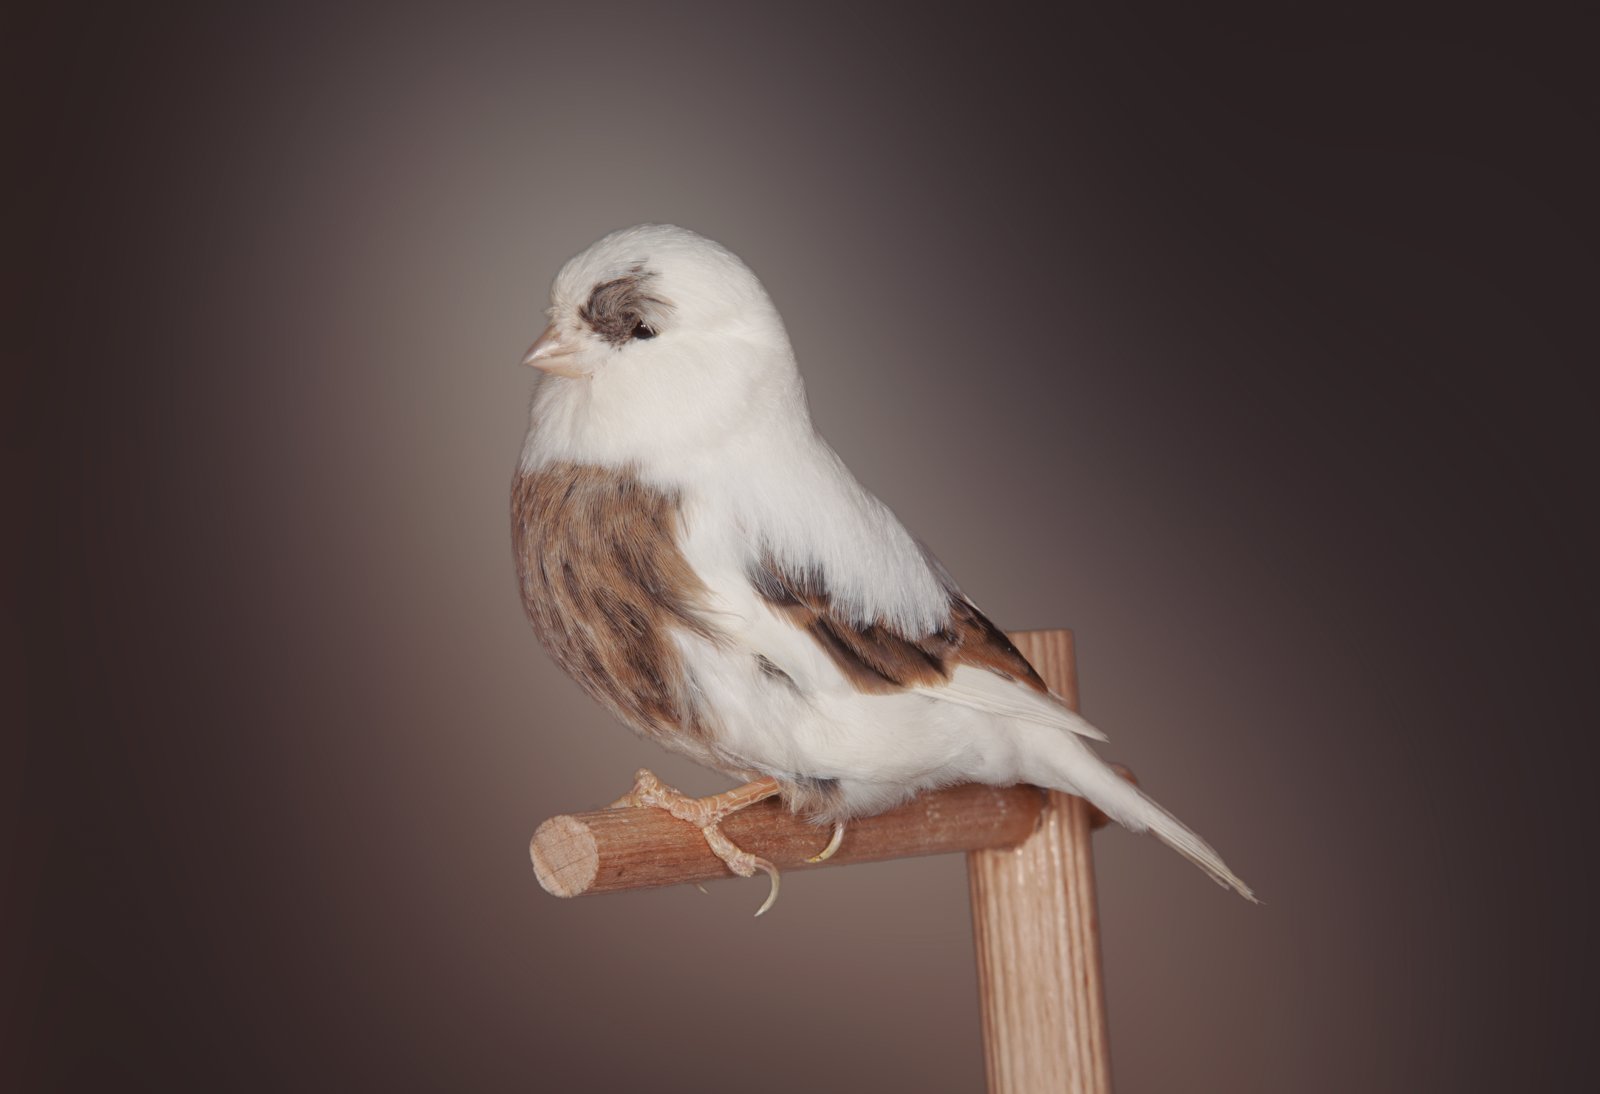
Como dato, se quiere hacer referencia también a la existencia de un estudio sobre el leucismo en el mirlo común, que explica que en las ciudades se presenta un mayor número de ejemplares leucistas con respecto al medio natural, lo que podría sugerir la influencia de factores externos para con esta alteración cromática, siendo el caso del estudio la relación de hábitats inducidos por el hombre con esta mayor presencia de estos ejemplares leucistas encontrados. Como posibles causas se baraja; una mayor concentración de sustancias mutagénicas que pudiesen producir aberraciones cromáticas, dietas más pobres en nutrientes, menor presión depredatoria natural y un probable desequilibrio oxidativo que pudiera producir alteraciones en la melanogénesis. Se refiere también una mayor prevalencia de leucismo en mirlos de mayor edad, pero con independencia del tipo de hábitat, así que, probablemente, exista alguna relación.
Existe también un fenómeno que se produce en los canarios lipocromos y además con bastante frecuencia, y me refiero a la aparición en estos sujetos de manchas melánicas tanto en el plumaje como en partes corneas. Debemos de tener en cuenta que un canario lipocromo no deja de ser un melánico afectado de este amelanismo heredable en su máxima expresión, y que por algún motivo desconocido (quizás un posible rasgo de atavismo), incluso saltándose varias generaciones y hasta en cepas muy seleccionadas, suelen aparecer frecuentemente pájaros manchados. Estas apariciones de “manchas melánicas” no hace distinción ni en cuanto al lipocromo de base (amarillo, rojo o ausencia/blanco), ni a la categoría del ejemplar (intenso, nevado, mosaico), presentándose su aspecto cromático con arreglo a la base melánica que estaba oculta (negro, bruno, ágata o isabela). Y si el ejemplar presentase ojos rojos (albino, lutino o rubino), su base melánica oculta suele corresponder a un ino (misma mutación que el phaeo) o a un satiné. Existe también la creencia entre criadores de canarios rojos lipocromos que estos melanismos se deben a una mayor cercanía genética con el cardenalito de venezuela, creencia que igual en pájaros trabajados con pocas generaciones con este spinus sudamericano podría ser real, pero vemos de igual modo en la práctica, y al igual que lo anteriormente relatado, que en criaderos donde no se emplea el cardenalito y existe una gran selección generacional, siguen apareciendo estos rasgos melánicos, tanto en plumas como en partes córneas, lo que nos lleva a no poder discernir ni hacer distinciones en cuanto a que pudiésemos encontrarnos ante algo diferente a lo expuesto con anterioridad en este párrafo.
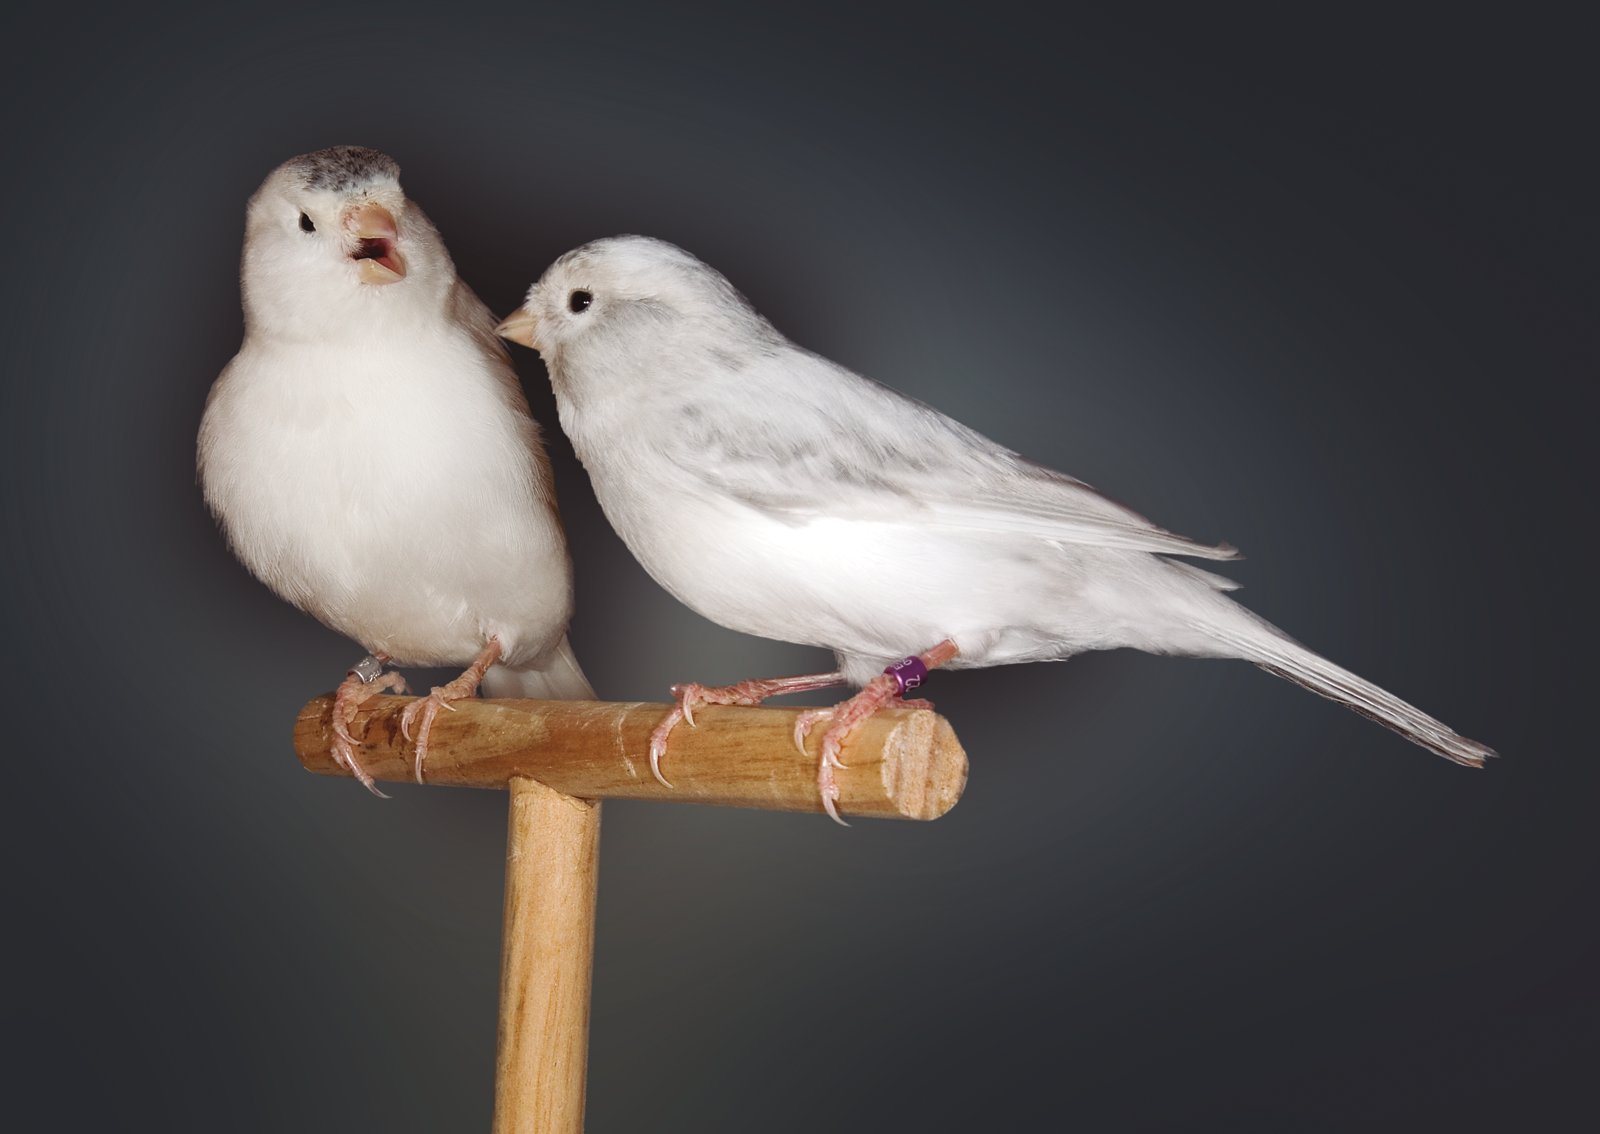
Resumiendo; nos encontramos ante un carácter fenotípico provocado por una “alteración” genética y que las causas que podrían provocarla son en gran medida desconocidas a día de hoy. Que en la práctica se comporta de manera codominante (genes para amelanismo vs genes para melanismo), que podría responder a poligenes acumulativos y que parece no regirse por otro tipo de herencia en concreto. Decir que aunque supuestamente no existen los ejemplares portadores, existen fuentes fiables de criadores que comentan que entre los hijos no píos descendientes de ejemplares píos, al cruzarlos, pudieran nacer de forma aleatoria algunos pájaros píos. Y aunque esto no lo hemos podido corroborar in situ, y de ser cierto, quizá estemos ante un tipo similar de atavismo como el que presuponemos sucede con la aparición de manchas melánicas en cepas seleccionadas de canarios lipocromos, como se ha comentado anteriormente en este artículo. De igual manera, cuando se utilizaban ejemplares de captura, con algún rasgo de leucismo en la cría, las probabilidades de descendencia pía bajan considerablemente con respecto al empleo de ejemplares píos con varias generaciones de cruces entre ellos. Esto podría apuntar hacia una mayor probabilidad de que estos supuestos genes mutados hicieran acto de presencia en el fenotipo de estos ejemplares. Se ha visto también en la práctica, que del cruce de dos jilgueros garganta no existe probabilidad de nacimiento de un jilguero blanco homocigoto como presuponen otros autores aunque, y haciendo mención a la rumorología, parece que hubo una selección de estos ejemplares, y que fruto de este emparejamiento, sí se producían un cierto número de ejemplares con una extensión amelánica muy extensa y blancos de ojos negros. Cabe decir que ciertos ejemplares tienden con las mudas a ampliar las zonas amelánicas en detrimento de las melánicas, algunos ya eran píos pero otros no; suele suceder en ciertas gamas mutadas de canarios melánicos y esta pérdida progresiva de melanina, que puede llegar a dejar el aspecto del pájaro aparentemente blanco, no influye para nada en su calidad visual al menos de forma aparente, salvo claro está, algún caso contado donde este fenómeno sea provocado por alguna patología que afecte simultáneamente a la visión. En estas aves, haciendo mayor hincapié en la fauna, y en las de fenotipo clásico no pío, afectadas por este aumento/extensión amelánica con las mudas, este fenómeno se debe frecuentemente a una “alteración cromática” no transmisible a la descendencia prácticamente en el 100% de los casos (a estos sujetos, se les conoce en el argot como aberración para diferenciarlos de los ejemplares mutados o con características fenotípicas heredables).
Indicar también que, en el jilguero, existe cierta tendencia a presentar leucismo en la zona de la garganta, siendo este tipo de leucismo localizado por causa indeterminada, o al menos, desconocida en estos momentos por el autor al no haber encontrado bibliografía o estudios al respecto. Cuando este leucismo afecta a la máscara, en la práctica y como norma general, lo que se aprecia es, no sólo la desaparición de la melanina que la conforma, sino también una pérdida importante del diseño de la zona afectada y una evidente disminución del lipocromo; llegando al extremo en los sujetos con plumaje amelánico total de ojos negros, donde este rojo del fenotipo “ancestral” pasa a mostrarnos unos tonos naranja, más o menos claros, y su distribución pasa a ser meros trazos o puntos no apareciendo máscara con diseño y bordes como tal. Sin embargo en el sujeto albino, a pesar de no sintetizar melanina, y por tanto no poseerla, la máscara continua apreciable y definida, en cuanto a lipocromo se refiere. Ya que en el caso de la máscara del jilguero estamos ante un caso donde la mayor intensidad y tono de rojo se da en los sujetos de fenotipo ancestral, siguiendo de cerca las mutaciones que impliquen menor reducción de las melaninas y por tanto poseedores de una mayor carga melánica. Esta coloración roja se debe, según los estudios del profesor Riccardo Stradi, a las xantofilas (mismo pigmento afín a las grasas que el canario) y a su concentración e interacción para con la queratina, más la suma del depósito de melanina. Así, como norma general, a más carga melánica más intensidad de rojo.
Para finalizar, y haciendo especial referencia al jilguero, el autor es de la opinión de que se puede extrapolar a otras especies afines, es más que evidente la variabilidad fenotípica de las aves afectadas por este leucismo. Pero no parece que haya indicios que apunten a que puedan existir diferentes mutaciones con diferentes formas de transmisión genética que conformen un mismo fenotipo pío. Tampoco hay indicios para afirmar que en un mismo ejemplar coexistan varias mutaciones que conformen este carácter, es decir el mismo aspecto fenotípico.
Merece hacer mención al fenómeno arlequinado en psitácidas, valga en principio decir, y a modo informativo para los más neófitos en la materia, que éstas aves no poseen pigmentos lipocromos en su librea, así la ingesta de carotenoides no influye en la obtención de un determinado color. El rojo, naranja y amarillo se deben a otro pigmento llamado psitacina, y que nada tiene que ver con los pigmentos lipocromos. Según la bibliografía consultada, se habla de una posible existencia de entre 10 a 20 genes implicados en el fenotipo “manchado” (denominación de un autor), que podrían actuar por si solos o inclusive interactuando entre ellos para conformar un patrón manchado. Para simplificar los agrupa en genes manchados principales, tanto dominantes como recesivos, genes manchados menores dominantes, genes manchados menores recesivos y genes modificadores. Se hace también alusión a la existencia de un gen de mutación clara, descubierto en el Rabadilla Roja y Agapornis Roseicolli por nombrar algunas especies. En otro autor, y en referencia al agapornis, se nombra el arlequín dominante SF y DF (simple y doble factor), al arlequín recesivo y a la mezcla de ambos. Como se enumeran, las variaciones genéticas, en cuanto a tipos de herencia o genes implicados puede ser múltiple. Otro rasgo característico en el arlequín es que también afecta a la cantidad de psitacina, cosa que no ocurre en otras especies tratadas anteriormente en este artículo como son los fringílidos afectados de leucismo, donde normalmente queda afectado el depósito melánico pero no el lipocromo, con la salvedad del caso concreto de la máscara roja del jilguero, aspecto tratado en párrafos anteriores. Referencia también al arlequín progresivo o Mottle; lo característico es que la coloración suele ser normal al primer emplume, y con el tiempo y tras sucesivas mudas el patrón manchado se va extendiendo cada vez más por la librea del ave. Se piensa que por similitud podríamos estar ante la misma afectación despigmentante que se produce en el canario London Fancy o en el Diamante Papagayo arlequín. Incluso que podría tratarse del mismo problema autoinmune, que afecta progresivamente a los melanocitos, como se ha descubierto en ciertos pollos de granja.
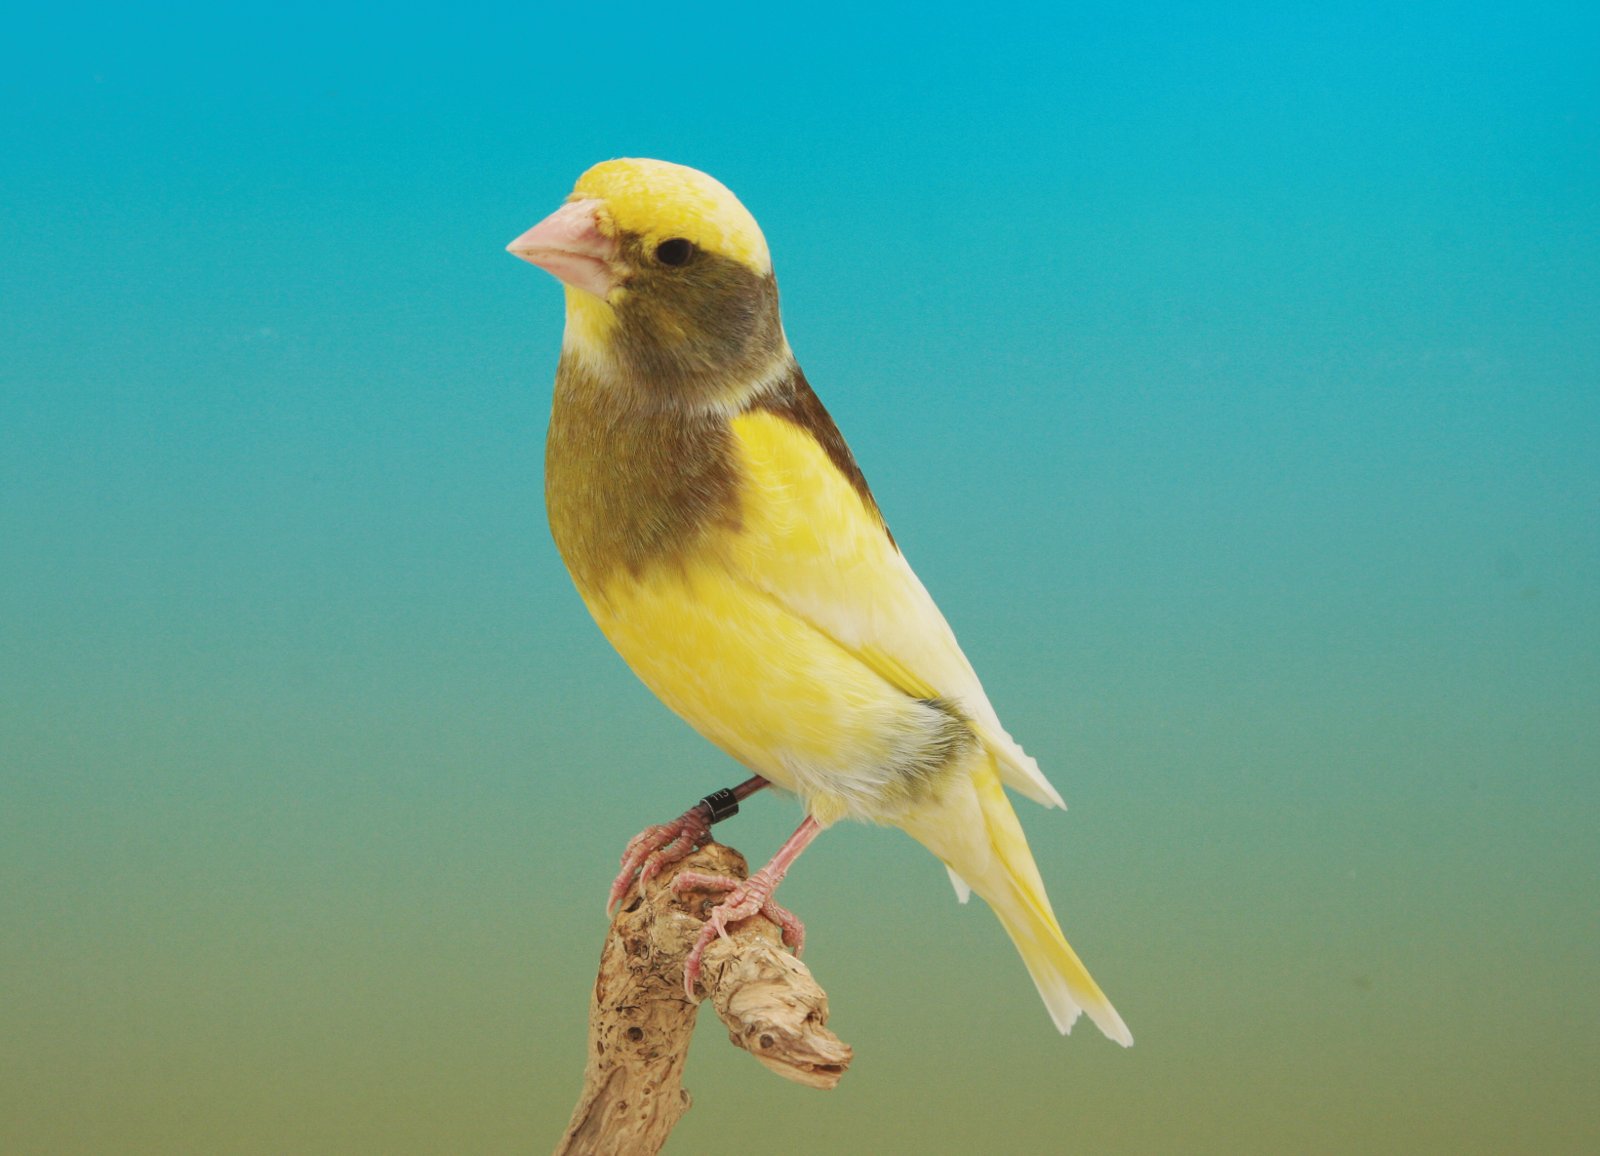
Lo que si parece evidente, es que a pesar de las investigaciones e hipótesis existentes desde antaño hasta la actualidad, queda aun un largo camino por indagar y descubrir de este apasionante tema sobre la coloración de las aves, donde no sólo influyen la variedad de pigmentos y los colores estructurales, el medio, factores externos/internos o la alimentación, sino que también es poseedor de un importante componente genético y que en multitud de ocasiones es aun desconocido.
Quiero dar las gracias a las fuentes en que se ha basado parte de este artículo, y agradecer también el trabajo y el esfuerzo de los autores y aficionados que tanto han aportado a la ornitología actual y moderna.
Hacer mención especial a mi buen amigo D. Iñaki Marcos Miguélez, juez de Fauna Europea, Híbridos y Exóticos, por su inestimable colaboración en la consecución de este artículo...sin él, probablemente, estos párrafos nunca habrían sido divulgados. ¡GRACIAS!
Bibliografía -Cabrera Amat, Guillermo. “Cien preguntas cien respuestas”. Croma Press, 2007.
-Cabrera Amat, Guillermo. Varios artículos publicados.
-Cuevas Martínez, Rafael. “El canario amarillo”. Hispano Europea, 2005.
-Cuevas Martínez, Rafael y Gómez Merino, Enrique. “Jilgueros y especies afines”. Hispano Europea, 2007.
-Revista de biología aviar. “Factores asociados al leucismo en el mirlo común Turdus merula”.
Lucía izquierdo, Robert L. Thomson, Jose i aguirre , Alazne Díez-Fernández , Bruno Faivre,
Jordi Figuerola, Juan Diego Ibáñez-Álamo -“A Guide to Colour Mutations and Genetics in Parrots” Dr. Terry Martin.
-Agapornis. Sr. Dirk Van Den Abeele. -Nicola Saino, Vittorio Bertacche, Raffaella Ferrari, Roberta Martinelli, Anders Pape Møller, Riccardo Stradi. Proceedings of the Royal Society of London… 2002. ”Carotenoid concentration in barn swallow eggs is influenced by laying order, maternal infection and paternal ornamentation”.
-Riccardo Stradi, Giuseppe Celentano, Myde Boles, F Mercato. 1997. “Carotenoids in bird plumage: The Pattern in a series of red-pigmented Carduelinae”.
Texto: Juan Jesús Montilla Pinos. Créditos fotográficos conservados en el artículo.