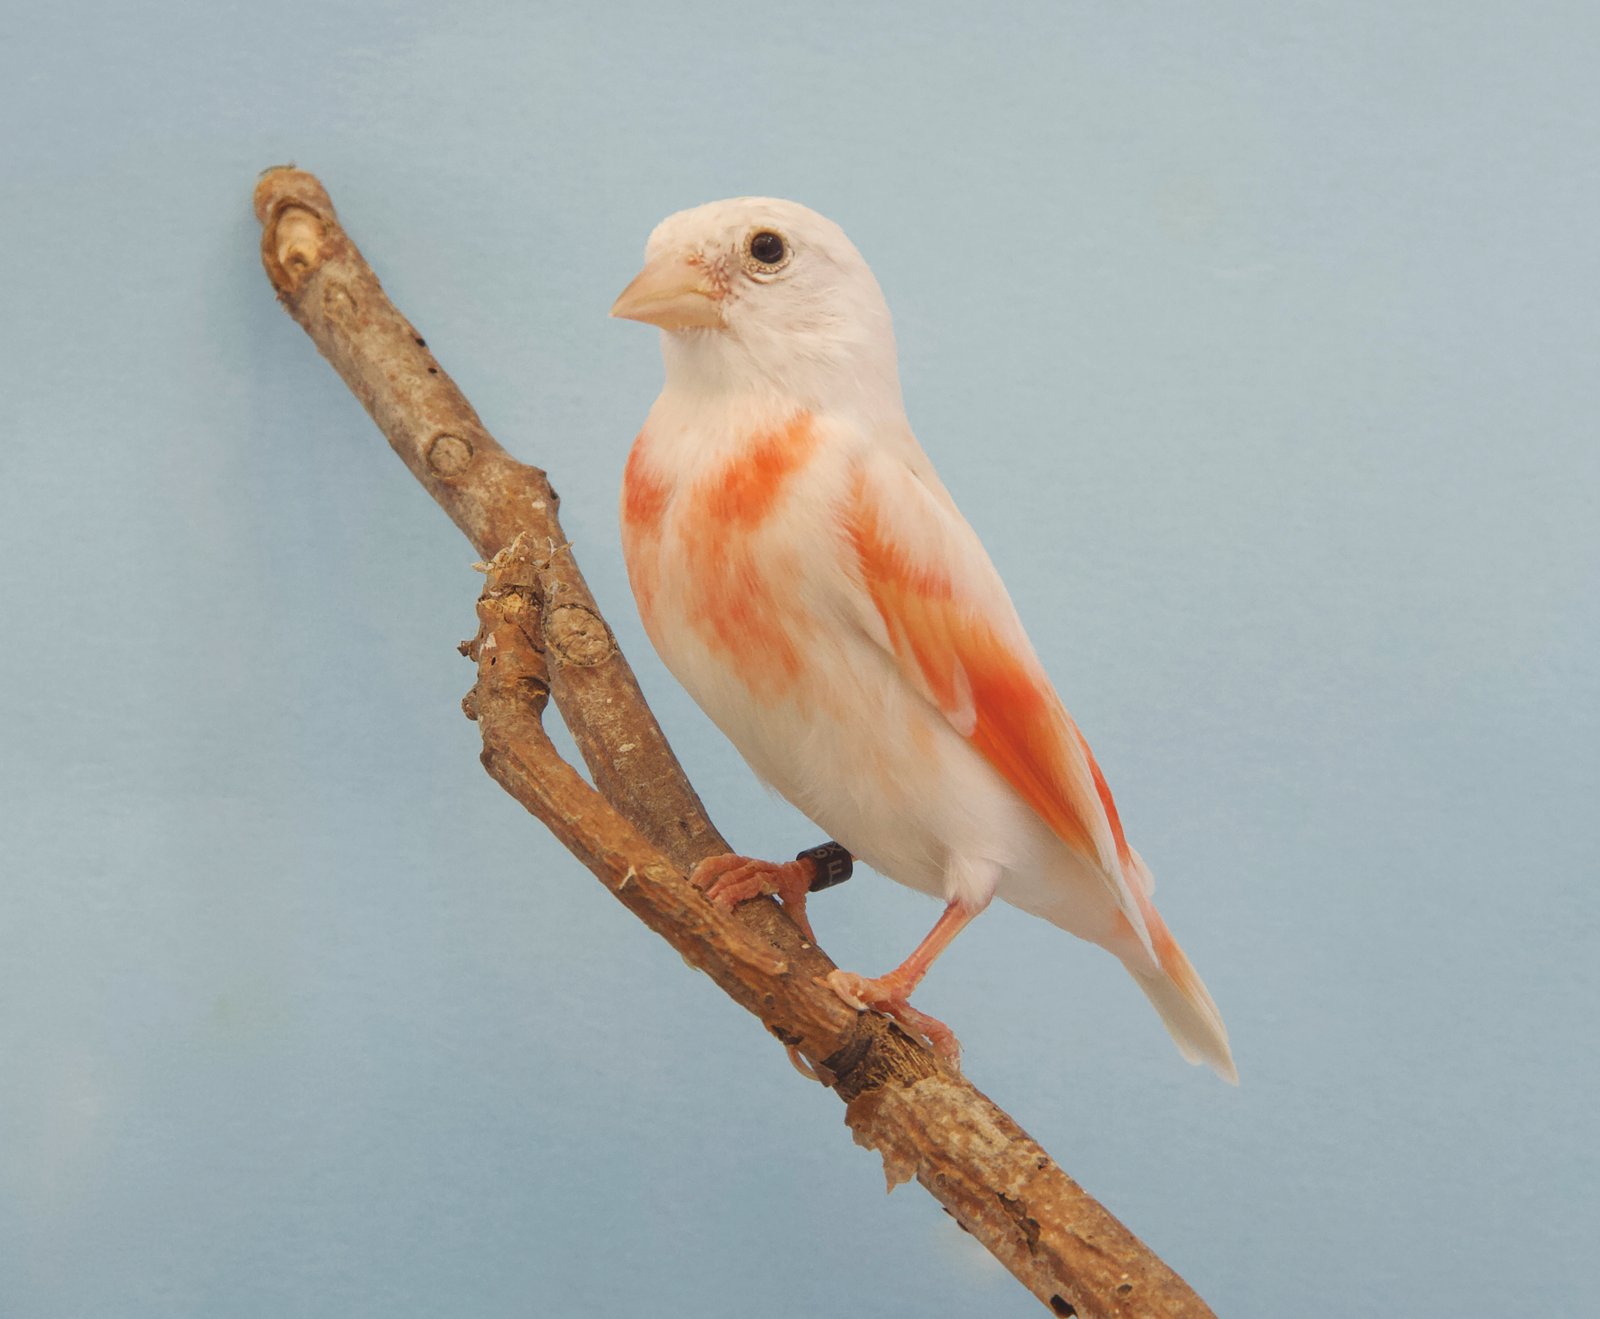
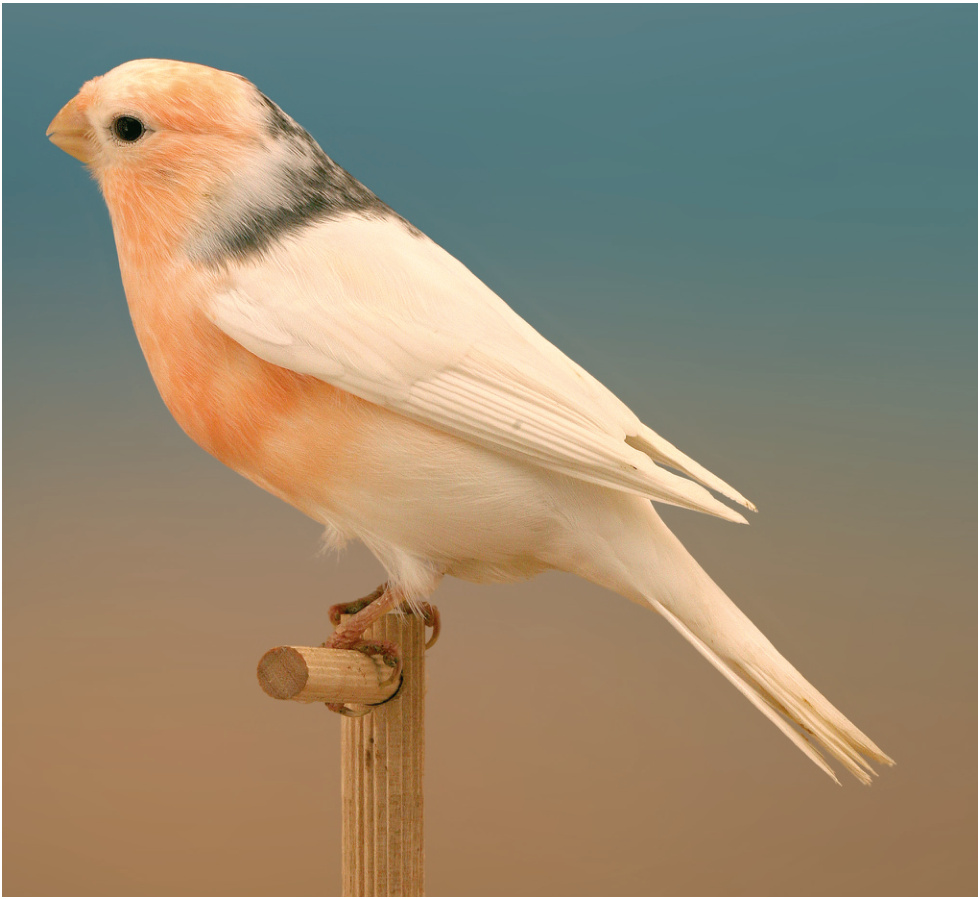
En este artículo me enfrento de nuevo al tema de las manchas sobre la librea de los pájaros, esta vez tomando como protagonista al Jilguero, que aclaro no es el primero ni el único fringílido europeo, entre los habituales de nuestros criaderos, en evidenciar un manto sobre el que resaltan porciones más o menos vastas en las que la melanización es muy intensa. Además del Jilguero, podemos mencionar al Camachuelo y, sobre todo, al Verderón, que despierta nuestra admiración por sus muy vistosas combinaciones amarillas y verdes, en algunos casos en verdad notables por su simetría. Está confirmado por los resultados obtenidos durante muchos años en la cría de las dos especies citadas, el Camachuelo y el Verderón, que reiterando durante varias generaciones los acoplamientos entre ejemplares manchados, la tendencia es que nazca, salvo rarísimas excepciones, descendencia exclusivamente manchada. Por el contrario, acoplando Jilgueros de garganta blanca (en Italia “favati”) o sólo ligeramente jaspeados, puede ocurrir, según parece con una cierta frecuencia, que junto a descendencia más o menos manchada, nazca un porcentaje próximo al 25% de pequeños completamente aciánicos, llamados también lipocrómicos o, impropiamente, blancos. ¿Cómo es posible explicar una diferencia tan grande en condiciones de pertenencia aparentemente iguales?
Diferentes mecanismos genéticos Como repito prácticamente cada vez que hablo de mutaciones, mi cambio personal en la búsqueda de la interpretación de estos fenómenos se produjo cuando, hace cerca de treinta años, era aún casi un niño, me di cuenta de que, por muy dispares que fuesen las especies que examinásemos, los mecanismos (las secuencias de los genes) para producir los pigmentos resultaban ser siempre prácticamente los mismos, de la misma forma que son siempre los mismos los eventuales “desajustes” en su funcionamiento normal (las mutaciones). Que las mutaciones en las diferentes especies tienen la misma distribución (los mismos loci) a lo largo de los cromosomas queda probado por el hecho de que acoplando, por ejemplo, un Jilguero Ágata con una Canaria Ágata, se obtienen hijos, tanto machos como hembras, también mutados por el mismo factor que el de los progenitores. Como además sabemos, la mutación en cuestión, el ágata, está presente en muchas de las especies de las que normalmente se ven en los criaderos, pero también en las más diferentes y distantes del Jilguero o del Canario, como pudieran ser, por ejemplo, los Diamantes australianos. Lo mismo podemos decir, obviamente, de las otras mutaciones: bruno, opal, pastel, phaeo, etc., todas variantes que se aprecian en la mayor parte de los pájaros presentes en nuestros aviarios. Esta realidad, el hecho de que las mutaciones y sus correspondientes efectos sobre el fenotipo resultan comparables entre ellas con independencia del pájaro de que se trate, nos permite comprender mejor el fenómeno que de vez en cuando nuestro fascinante pasatiempo somete a nuestra atención. En el caso que nos ocupa, son diferentes las especies que a día de hoy han manifestado fenotipos con más o menos las mismas manchas despigmentadas. Además de los ya mencionados Jilguero, Verderón y Camachuelo, es imposible no citar al fringílido doméstico por antonomasia, el Canario, que debe su popularidad sin duda a este fenómeno. También entre los estríldidos los hay que deben su inicial difusión en los criaderos a la aparición de manchas despigmentadas y me estoy refiriendo principalmente al Isabelita del Japón, al Padda o al Diamante mandarín. Tres especies en las que además de la variante aciánica parcial (manchas), se conoce también la variante aciánica total (Blanco). Para no crear equívocos, aclaramos inmediatamente que en este caso la denominación Blanco nace del hecho de que en dichos pájaros, ya a nivel ancestral, no hay presente ningún lipocromo en su plumaje. Con estos exóticos se ha trabajado desde tiempo inmemorial y aún hoy se considera imprescindible acoplar ejemplares Blancos con ejemplares manchados. Yo lo he hecho siempre con la presunción de que la condición de “manchado” equivalía a la de “portador de blanco”. Sin embargo, parece que, por el contrario, esta práctica parte de un error de fondo: en realidad, en la selección de la variedad Blanco (Aciánico) no es absolutamente necesario utilizar ejemplares manchados. La función de portador la puede desarrollar perfectamente un ejemplar completamente melanizado. Ello equivale a decir que “manchado” no es sinónimo de “portador”, o mejor aún, como veremos, no lo es necesariamente. De la relación existente entre acianismo parcial y total he escrito varios artículos, que han tenido como protagonistas al Isabelita del Japón, al Padda y, recientemente, al diamante de Kittliz. En estos ejemplares ha resultado evidente que “manchas” y “acianismo total” son dos fenómenos independientes, que sin embargo parecerían tener la peculiaridad de actuar sobre el mismo par genético. Esta es la primera vez que me encuentro con este tipo de análisis teniendo como protagonista a un fringílido.
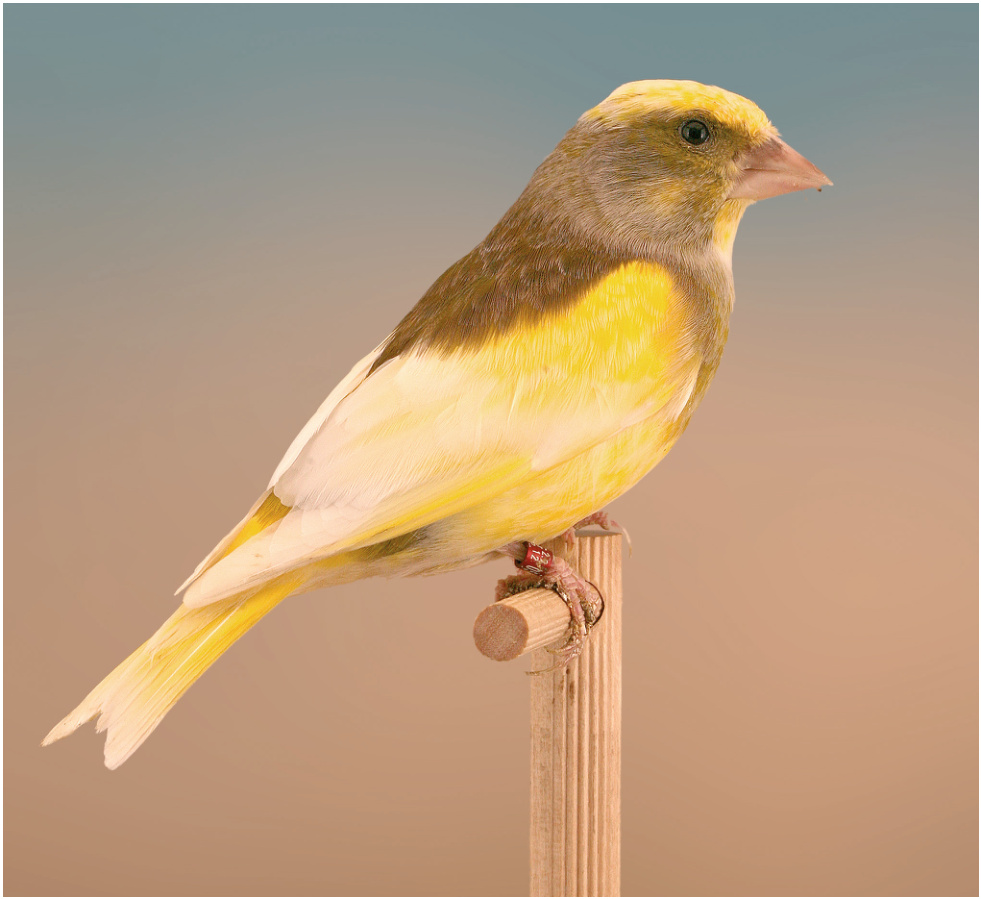
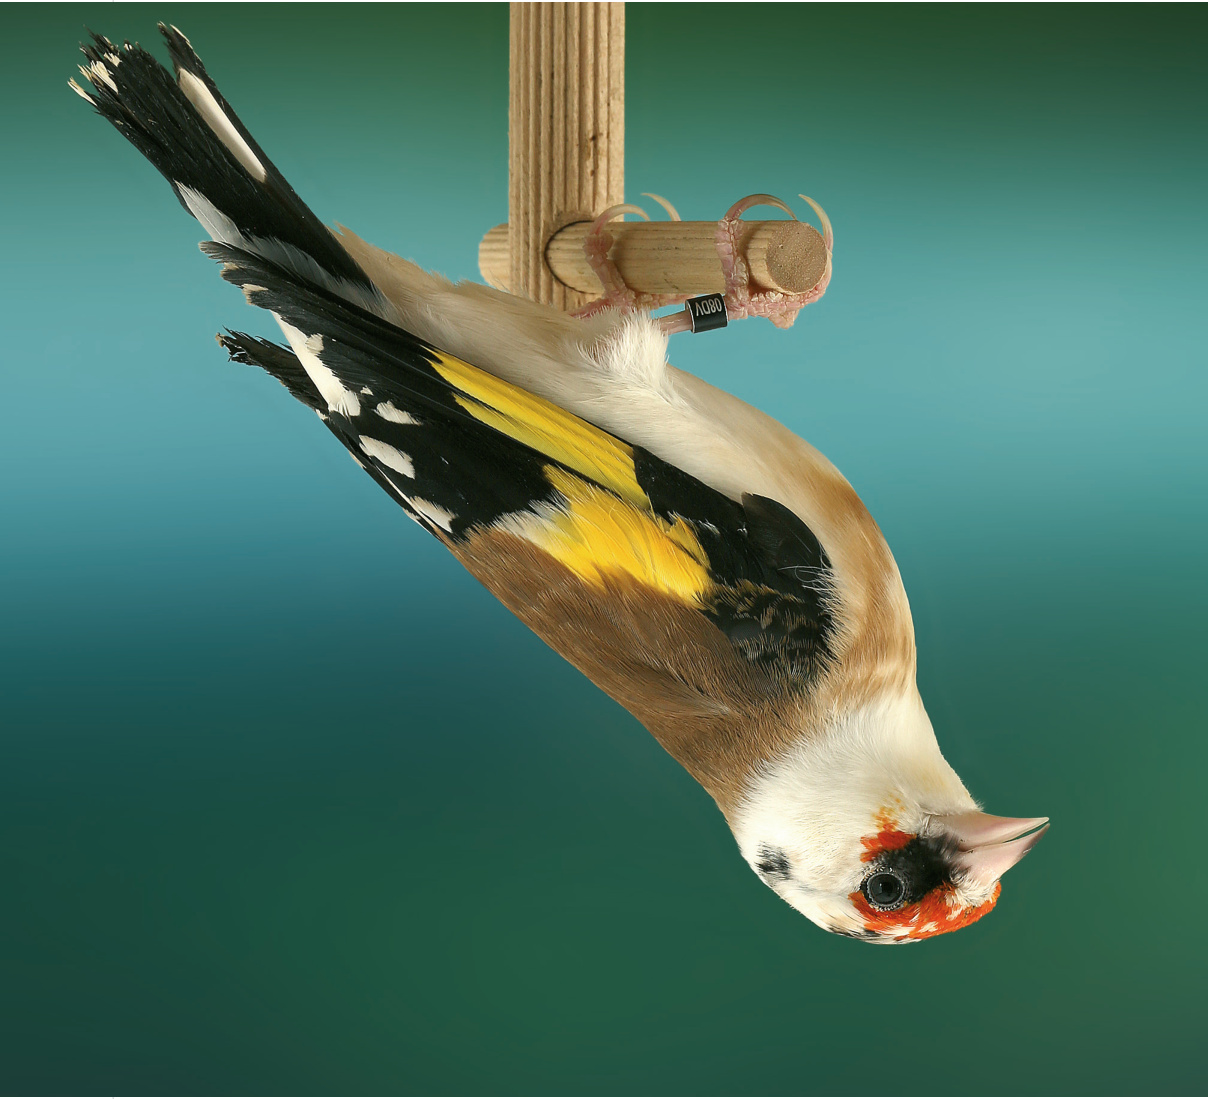
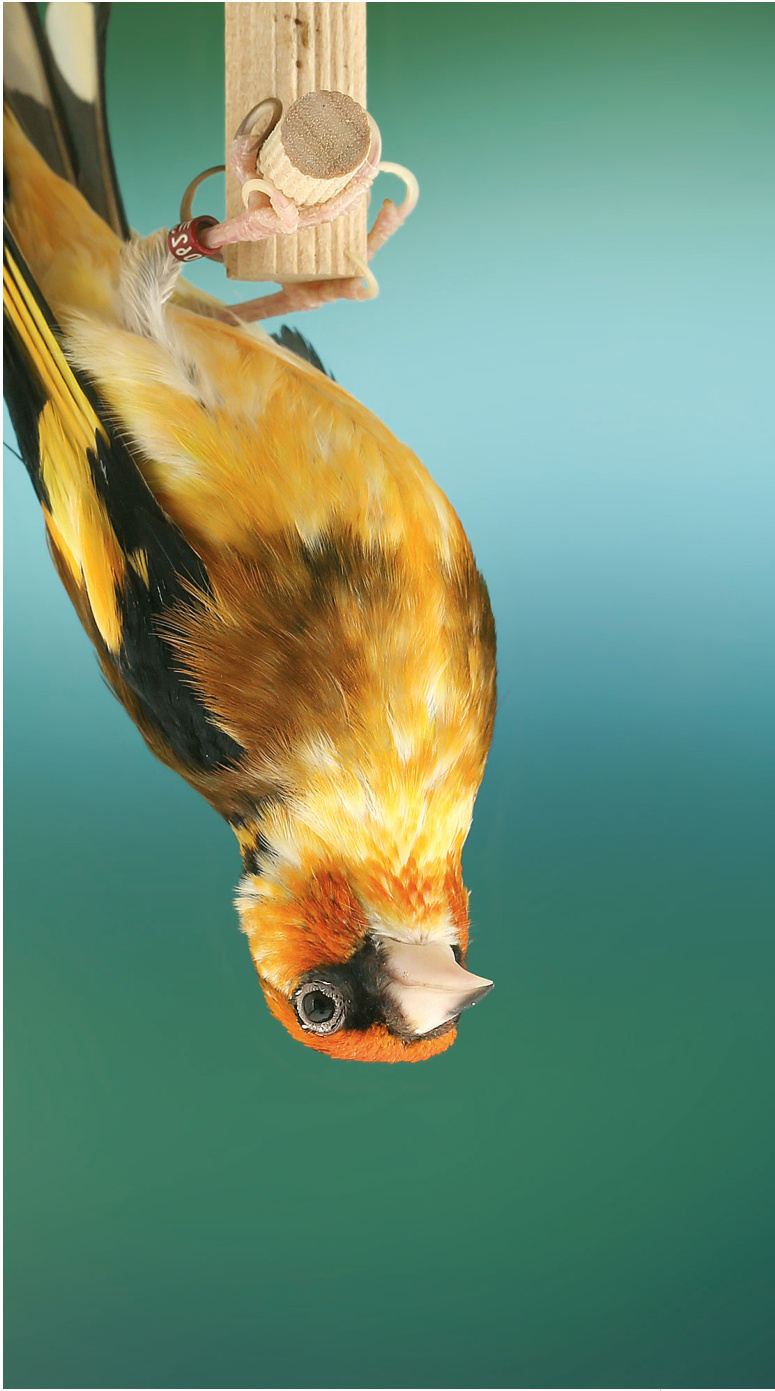
Acianismo y selección En los estríldidos antes mencionados se da una mutación recesiva autosómica, por consiguiente una mutación clásica de tipo mendeliano, capaz de anular la melanina sobre todo el cuerpo, con la única excepción de los ojos. Por comodidad en la exposición vamos a formular este factor mutado como “ac” (aciánico”), por lo que con “ac+” se indicará el correspondiente no mutado Podemos llevar esto ahora al caso del Jilguero y, desde esta óptica, según mi opinión, deberían acoplarse sin más los ejemplares totalmente Aciánicos (ac/ac) con Jilgueros Ancestrales (ac+/ac+). Por Ancestrales se entienden, en este caso, ejemplares normales, en los que no se da en absoluto manifestación alguna esquizocroica (manchas aciánicas). Al tratarse de una mutación autosómica, la dirección de los acoplamientos no tiene ninguna importancia. El primer resultado sería el nacimiento de ejemplares todos ellos oscuros (ac+/ac). El acoplamiento recíproco entre estos portadores, según las leyes de Mendel, llevaría al nacimiento de hijos 25% Aciánicos (ac/ac), 50% portadores (ac+)/ac) y 25% Ancestrales (ac+/ac+). Es evidente que conociendo esta transmisión genética y estar en posesión de ejemplares con acianismo completo, resulte absolutamente superfluo recurrir a ejemplares “externos” con manchas más o menos extendidas. La ventaja es evidente: 1. Quedamos desvinculados de la necesidad de tener que utilizar los raros “garganta blanca”, que al existir en un número limitado, no podemos afirmar que estén en posesión de los adecuados cánones estéticos capaces de aportar las mejoras prefijadas y, sobre todo, no es cierto, como veremos, que resulten ser verdaderamente portadores de “acianismo”. 2. Por el contrario, es posible, repito, crear nuevos (seguros) portadores, uniendo aciánicos totales con Jilgueros ancestrales de calidad, bien estructurados, ricos en lipocromo y con un plumaje impecable. 3. No subsiste la necesidad de insistir en reiterados acoplamientos entre consanguíneos. Desde este punto de vista es, de hecho, relativamente sencillo establecer varias líneas selectivas. En definitiva, la seguridad del tipo de mecanismo genético es un punto de partida indispensable en la racionalización de ciclos que introduzcan mejoras de forma más rápida y eficaz. Para cerrar esta parte es bueno insistir: cuando nos encontramos frente a la mutación “aciánico” es como si lo hiciésemos con la mutación opal o phaeo; el mecanismo es siempre el mismo y estamos hablando de una sencilla transmisión autosómica recesiva. Hay analistas que dicen que el nacimeinto de Jilgueros Aciánicos se favorece con la utilización de Jilgueros garganta blanca de elevada “penetrancia”. Yo diría que si bien se encuadra perfectamente con esta opinión la potencialidad genética de tales ejemplares, lo que llaman “penetrancia, es decir la predisposición de los mismos a generar hijos lipocrómicos, viene dada en realidad por la presencia en estado heterocigoto de la mutación recesiva autosómica “ac” (aciánico). Pero como decía al principio, la condición de manchado no es sinónimo de portador y, por consiguiente, en el caso de que la mutación “ac”estuviese ausente, el ejemplar no podría mostrarse más que como un simple Manchado, y como tal se comportará replicando, cuando lo consiga, sólo un cierto número de manchas blancas, de diferente extensión, en el manto de sus descendientes. Hemos introducido así en el análisis que estamos desarrollando algo que podríamos definir como “factor para las manchas”, que en los procesos selectivos domésticos, además de producir fenómenos de esquizocroismo parcial, lo encontramos a menudo combinado (más adelante comprenderemos el porqué) con el anteriormente descrito factor “aciánico”. Aquí, el grado de complejidad es mayor con respecto a la clásica transmisión de tipo mendeliano antes vista. Tomemos como ejemplo el Verderón. Como hemos dicho, son ya muchos los años que se viene trabajando con este carduélido con acoplamientos entre ejemplares carentes de melaninas o con estas fuertemente reducidas, descoloridos (esquizocroicos). Pero a pesar de que progresivamente nos acercamos a ejemplares con zonas lipocrómicas cada vez más extensas, todavía no se ha llegado a la obtención sistemática y matemáticamente predecible de ejemplares completamente lipocrómicos.
Genes transponibles como factores de inestabilidad Aunque hoy en día no son admitidos a concurso, hay aficionados que con mucha paciencia se han centrado en la producción de ejemplares de fauna o exóticos con un 50% de manchas aproximadamente, y a ser posible repartidas de forma simétrica. Un trabajo que implica, sobre todo, un alta dosis de suerte, porque lo único seguro en este tipo de selección ha sido siempre el alto componente de imprevisibilidad de los resultados. A pesar de ello, también en este caso he usado el término “selección” porque, en efecto, hay una direccionalidad de los acontecimientos que puede ser de algún modo gestionada. De hecho, eligiendo los reproductores en base a una mayor o menor extensión de las despigmentaciones es posible, aunque dentro de los amplios márgenes de la casualidad que hemos indicado, dirigir en un sentido u otro la extensión de las zonas no coloreadas. Sobre este mecanismo de transmisión se han vertido ríos de tinta, en cuanto, como he dicho, no hay modo de prever con certeza los posibles resultados. Por el momento, la única teoría que tiene un sentido lógico es aquella que relaciona la presencia de tales imprevisibles manchas a casuales variaciones del patrimonio genético durante la multiplicación celular (mitosis) en fase embrional. Esta sólida teoría introduce en ornitología uno de los más importantes descubrimientos en el campo de la biología molecular: la existencia de elementos génicos transponibles (transposones), pequeños fragmentos móviles de ADN que aportan inestabilidad en el interior del genoma. Esto, alterando el concepto de inamovilidad de los loci génicos, nos lleva a considerar la posibilidad de que durante las primeras fases del desarrollo embrional pueda producirse un evento de transposición capaz de alterar (en nuestro caso, bloquear) la expresión de un gen codificante. Con la continuación de las réplicas, los descendientes de la célula que ha sufrido tal evento mostrarán un nuevo fenotipo (plumas despigmentadas), mientras que los descendientes de las células no afectadas continuarán mostrando el fenotipo original (plumas melanizadas). Desde la óptica de esta teoría, la mínima posibilidad de efectuar una especie de selección dependerá de la cantidad de estos elementos transponibles (por consiguiente, con el grado de inestabilidad) presentes en el genoma: cuanto más numerosos sean eso elementos, más precoces son previsiblemente las transposiciones y, en consecuencia, más amplias resultarán las zonas aciánicas.
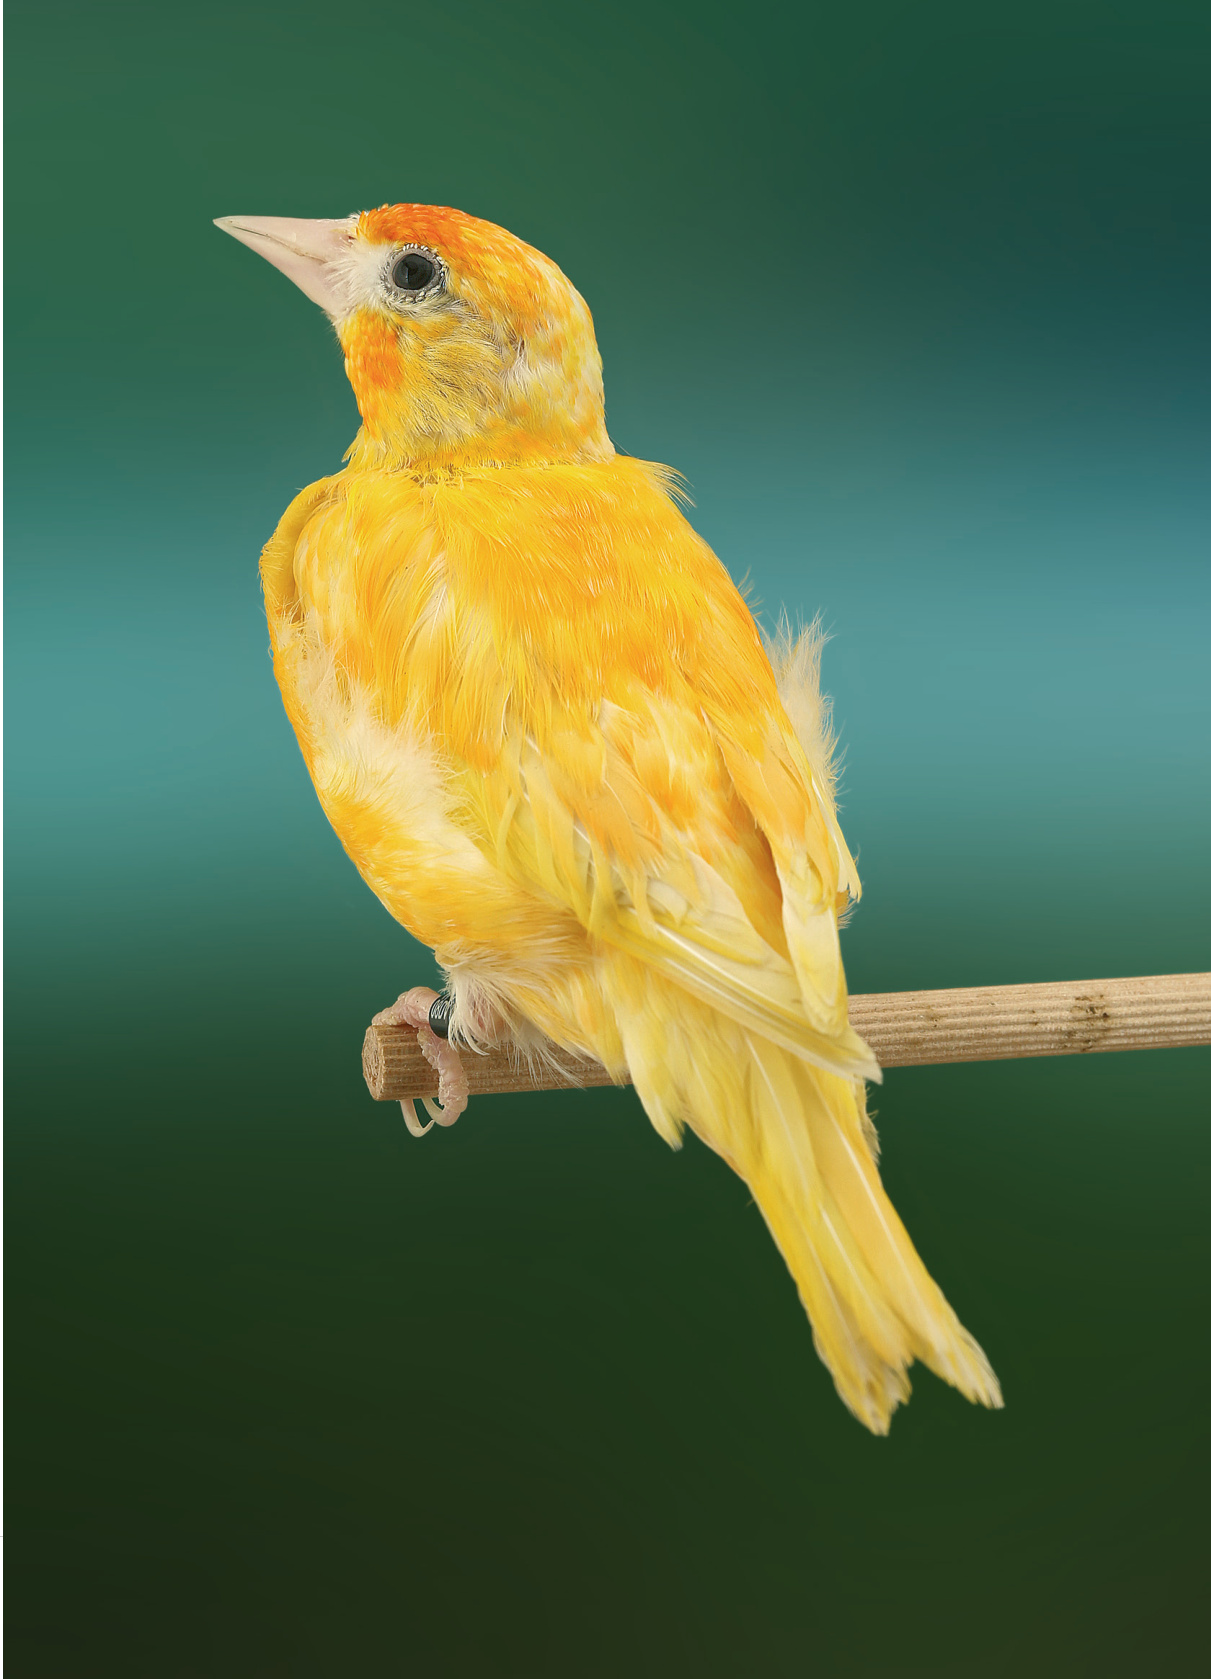
El transposón, como marcador genético Retomando las fórmulaciones antes expuestas, pasemos a analizar un embrión que posea la pareja de alelos ac+/ ac, es decir que sea un casual portador de mutación autosómica recesiva “aciánico”. Durante su desarrollo, en ausencia de transposones, este patrimonio genético se repetirá tal cual en todas las células del cuerpo, incluidas las epiteliales. Finalmente lo que nacerá será un ejemplar completamente melanizado, portador de aciánico. Si este ejemplar, aparentemente normal, se encontrase fortuitamente en nuestro criadero, seguramente no nos daríamos cuenta nunca de su peculiar característica genética. Es, de hecho, extremadamente improbable, a menos que se produzca un gran golpe de suerte, que pueda producirse su acoplamiento con un compañero que sea también portador de la misma mutación. En presencia de elementos transponibles, la cosa cambia: durante la multiplicación de las células epiteliales en el embrión en formación, puede ocurrir que un transposón interfiera con uno de los locus “ac” de una de las tantas células que se están formando, variando el patrimonio de la pereja génica, por ejemplo de ac+/ac a 0/ac. En la práctica, el gen activo ac+, alejado de posición natural, pierda su función. Desde ese momento, como ya hemos dicho antes, las sucesivas multiplicaciones (mitosis) producirán células hijas también desactivadas, que formarán un sector epitelial incapaz de producir pigmento. En este caso, con respecto al ejemplar de nuestra hipótesis anterior, hay un detalle que nos proporciona una indicación acerca de su naturaleza de portador: en el caso de que se tratase de un Jilguero, el hecho fisiológico más probable es que éste presentase plumas blancas bajo el pico (la conocida como garganta blanca, fava en italiano) o también, como ocurre a menudo, que sencillamente presente una o varias uñas despigmentadas. Sin embargo, dicho esto debemos añadir inmediatamente (incorporando desafortunadamente nuevas dosis de complejidad) que no hay ninguna seguridad de que un Jilguero garganta blanca (o en general un pájaro manchado) sea en todo caso un portador de aciánico. La práctica del criadero, como hemos visto por ejemplo con el Verderón o el Camchuelo, nos sugiere, de hecho, que pueden formarse manchas despigmentadas también en condiciones de homocigosis ac+/ac+, por consiguiente sin la presencia de la mutación “ac”. Si de hecho en el genoma de los reproductores, incluso en uno sólo de los dos, están presentes muchos transposones, es muy probable que en el transcurso de la mitosis, es decir durante la formación del tejido epitelial en el embrión, en un determinado estadio del desarrollo en una célula en formación, ambos alelos ancestrales ac+ puedan resultar desactivados a causa de su desplazamiento de sus respectivos sitios funcionales (0/0), lo que dará lugar a manchas de origen exclusivamente mitótico, incapaz, por consiguiente de darnos una seguridad matemática de su transmisión a la futura descendencia. En definitiva podemos afirmar que la presencia de eventuales manchas en un ejemplar del que no conocemos su origen puede tomarse ciertamente como una posible indicación de un acianismo (total) latente, aunque esta eventualidad hay que verificarla en la práctica del criadero. Es lo que ya se ha hecho y así, gracias a la acción de los transposones jhan sido individualizados probables portadores de la mutación “aciánico”, que se han confirmado como seguros portadores cuando al ser acoplados entre ellos han demostrado poder reproducir un 25% de hijos Aciánicos” (ac/ ac). Es evidente que desde este punto en adelante el camino se convierte en bajada: alcanzada tal certeza, se entra de hecho en el cauce de una secuencia selectiva normal que, desvinculada de la inseguridad de los resultados, sencillamente parece ya dirigida hacia una mejora constante. A este propósito, me queda añadir una última observación: hemos dicho que para una mejor selección, los ejemplares Aciánicos, debían acoplarse a su vez con Ancestrales cualitativamente capaces de aportar beneficios a la cepa base. Sin embargo, atención: siendo estos Aciánicos hijos de progenitores Manchados, también en su genoma se encontrarán en circulación un cierto número de elementos transponibles. Esto, incluso en el ya comentado acoplamiento con Ancestrales (no manchados), tendrá como consecuencia el nacimiento de prole con aún trazas de manchas, aunque sean mínimas, localizadas preferentemente en las zonas clave, bajo el pico y/o a nivel de las uñas. Siguiendo con la selección, reiterando ciclos de acoplamientos no consanguíneos entre Aciánicos y ejemplares Normales (no manchados) estructural y cromáticamente evolucionados, es probable que después de algunas generaciones, paralalemante al mejoramiento somático, las peqqueñas y antiestéticas manchas esquizocroicas teindan a desaparecer del todo. Nos encontraremos así con una cepa bien estabilizada en la que tanto los Normales como Aciánicos que se hayan generado serán exclusivamente ejemplares potencialmente válidos desde el punto de vista de los concursos.
Conclusiones Para concluir por el momento con el tema “acianismo¬manchas”, quisiera añadir algunas consideraciones a propósito de la fisiología de las coloraciones del Jilguero Lipocrómico. En esta ocasión he utilizado voluntariamente la denominación Lipocrómico, que desde siempre ha sido considerada por los aficionados como sinónimo de Aciánico, por cuanto es la que mejor define a un ejemplar en el que, aparte de los ojos, sólo los lipocromos colorean el manto. De estos pigmentos liposolubles (lipocromos) se conocen varios, todos, sin embargo, con fórmulas químicas muy parecidas entre ellos. Los típicos del Jilguero son la xantofila, que como es sabido son pigmentos de color amarillo derivados de los carotenoides, normalmente ingeridos con la alimentación. Lo que interesa saber es que también el color de la máscara, que en los ejemplares Ancestrales aparece de un color rojo intenso, está originado por los mismos lipocromos amarillos presentes en el resto del plumaje. Este fenómeno, además de a la alta concentración de pigmento en esa zona específica, parecería deberse sobre todo a las modificaciones estructurales que sufren estas cadenas orgánicas en su empaquetado en el interior de la queratina. Distorsiones que modifican las propiedades ópticas. Recuerdo, como inciso, que las plumas de la máscara del Jilguero tienen bafbas modificadas en sus ápices: las bárbulas están ausentes en esa zona, por cuanto están “fundidas” junto al cálamo de la barba, para formar una típica estructura en forma de de pequeña lámina. Esta es la única porción de estas plumas particulares donde está presente el lipocromo. Pero lo realmente sorprendente es que, en los ejemplares que han perdido las melaninas a causa de la mutación “aciánico”, el lipocromo que debería formar el diseño de la máscara no se deposita. Está fuera de nuestro alcance dar una explicación a esta imprevisible realidad. Pero lo que es cierto es que los espesamientos de queratina en forma de lámina anteriormente descrito, que en los Jilgueros melánicos, incluso en los más diluidos tipo de los Albinos o de los Lutinos, permanecen inmutables en cuanto a su estructura y color,en las despigmentaciones debidas a manchas parciales o bien a fenómenos de acianismo total, desaparecen por completo, dejando en su lugar plumas normales completamente descoloridas, con barbas dotadas de sus bárbulas convencionales hasta su ápice. Evidentemente, existe un insondable ligamen pleiotrópico entre melaninas del fondo, láminas queratínicas y presencia de carotenoides. Sea cual sea la razón de todo esto, permanece la evidencia de que los Jilgueros Lipocrómicos pierden una característica importante: no tienen máscara.
Texto: Sergio Lucarini. Créditos fotográficos conservados en el artículo.