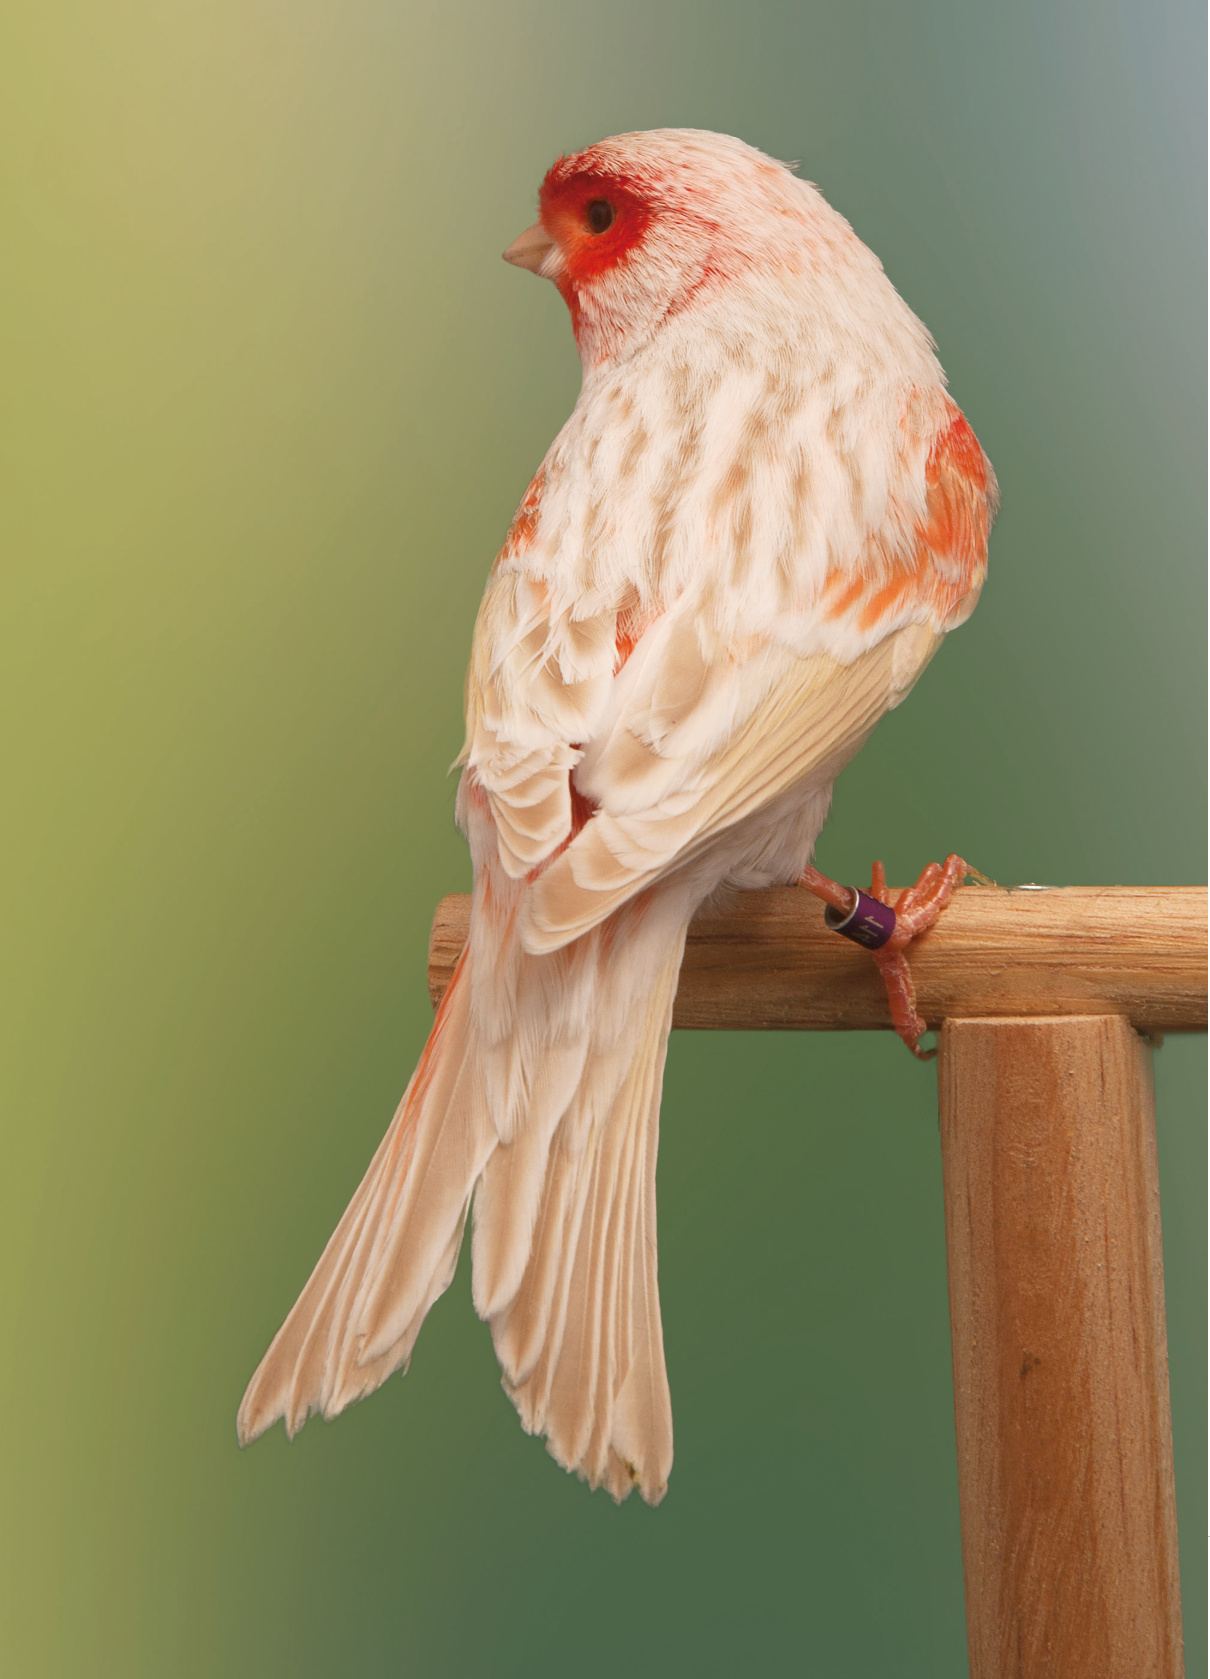
El iris es la estructura más afectada en la coloración del ojo. Esta estructura puede estar pigmentada tanto por su cara anterior como posterior, y puede contener melanocitos, especialmente allí donde el tejido conectivo se dispone alrededor de los vasos sanguíneos. Los albinos carecen tanto de carotenoides como de eumelanina, por lo que tienen un iris rojo brillante. El iris tiene una pigmentación que varía de intensidad, ya que están involucradas dos poblaciones de células pigmentarias que tienen un origen diferente y ambas son capaces de sintetizar eumelanina. Hay además otras estructuras: los cromatóforos, que almacenan los carotenoides. Es sabido que, en combinación con el rojo capilar, dan lugar al ojo “bayo”, entendiendo por tal un ojo rojizo, un ojo que no es ni rojo ni amarillo. También hay una cierta acumulación de carotenoides en el tejido adiposo. Junto a estos elementos mencionados, se hace necesario considerar el rojo de los capilares por los que circula la sangre. Al respecto hay que precisar que son los machos los que por lo general presentan los ojos más rojos, dado que tienen un patrimonio mayor en glóbulos rojos que las hembras. Con referencia a la coloración del iris es necesario considerar también una posible disposición radial del pigmento que converge hacia la pupila, debida a un aumento del número de capilares, determinando una mayor intensidad en la coloración del iris. Por último, no debemos obviar eventuales fenómenos de telangiectasia idiopática o fenómenos de vasodilatación de los capilares del iris. Los hematíes (glóbulos rojos) observados uno por uno, se presentan de un color amarillo pajizo, por lo que el color rojo de la sangre es debido a su elevado número y está también en relación con la sección del vaso por el que circula la sangre. Ahora bien, el iris puede presentarse no coloreado de rojo si los capilares son muy pequeños. De lo expuesto se evidencia la base poligénica del color del ojo. De hecho, se considera que en la definición del color de los ojos intervienen diferentes genes: • uno que actúa sobre el número de los capilares sanguíneos • uno capaz de influir sobre el depósito de los carotenoides; • uno que interviene en la formación de la eumelanina. Hay autores que hablan de un cuarto gen, que determina o regula el depósito de gránulos opacos que impiden la visibilidad del estrato de eumelanina o bien determina el depósito de melanocitos (eumelanina) sólo sobre la cara posterior del iris, porque se produce una reducción de la melanización del ojo. Tras esta necesaria premisa considero que el papel principal reside en el gen que interviene en la formación de eumelanina. Para no alargarme en exceso, omito las estructuras, la bioquímica, etc., del mecanismo de producción de la melanina. En 1940 fueron identificados tres importantes pigmentos diferentes, considerados variedades de la melanina: • Eumelanina, del griego eu = bueno, se trata de la verdadera melanina. Se presenta negra o marrón oscura. • Feomelanina, o melanina bruna, del griego faicòs. Es aquella leonada, amarilla, marrón clara, caoba. • Otras melaninas, es decir todas las otras melaninas. Están presentes en las plantas, en los hongos y en las bacterias.
Un hecho muy importante es que si las estructuras microscópicas de la eumelanina están muy próximas, éstas determinan el negro. Es decir que los gránulos de eumelanina son muy compactos en el interior de las vacuolas del melanosoma. Por el contrario, si están distanciados entre ellos, la coloración es menos intensa, con tendencia al gris, según una gama de difuminados dependiendo de su densidad. Es decir la eumelanina no se presenta bajo la forma de gránulos compactos, sino de filamentos o de gránulos no masificados. Así, si es verdad que la mutación Eumo provoca una reducción cuantitativa de la eumelanina se puede obtener - reducción del número de melanosomas; - reducción del volumen de melanosomas; - disposición no masiva (filamentosa y/o glomérulos) en el interior de los melanosomas. Personalmente, como no tengo confirmación científica sobre los dos primeros métodos de reducción ni estando en posición de asegurar que estos dos primeros métodos comportan una coloración (eumelanina) con tendencia al gris, me quedo con la tercera hipótesis, la cual me permite explicar porqué a un diseño más claro le corresponde un ojo rojo más evidente y viceversa. Por lo expuesto considero, a título exclusivamente personal, que sea improbable obtener un diseño más oscuro y un ojo rojo muy evidente actuando sólo sobre los genes de la eumelanina (sería tanto como decir que sería necesaria una mutación de la mutación), por lo que pienso que la selección debe enfocarse sobre los otros genes (poligenia) que pueden llevar a obtener el ojo rojo, dejando inalterada la tonalidad del diseño.
En líneas generales, es posible referirse a una correlación entre la tonalidad del ojo y de las melaninas, a menos que no se verifique un mecanismo tal que llegue a modular una o las dos de las siguientes actividades: • actividad migratoria de los melanoblastos indiferenciados; • comportamiento altruista-egoísta de los melanocitos. Lógicamente no me detengo sobre aquellas anomalías que pueden verificarse eventualmente.
Por lo que se refiere a la actividad migratoria de los melanoblastos indiferenciados, que se produce en los primerísimos estadios del desarrollo embrional (en el pollo parece que ocurre alrededor de la hora 90 de incubación), los melanocitos migran a través de los vasos sanguíneos y nervios desde el lugar donde se forman (cresta neural) hacia diversas zonas del organismo, por lo que una eventual modificación de este proceso puede determinar que no lleguen a algunas zonas, en las que consiguientemente tendremos ausencia de pigmento. Verosímilmente puede ocurrir que los melanoblastos migren normalmente hacia las diferentes zonas del organismo, pero manifiesten un comportamiento altruista y no egoísta, como normalmente ocurre. Por comportamiento egoísta debemos entender: (fisiológico) el melanocito inicia la melanogénesis, acumula y amasa la melanina formando vacuolas más o menos densificadas y compactas, haciendo que los orgánulos celulares, comprendido el núcleo, queden aplastados y oscurecidos, microscópicamente hablando (no son visibles), por lo que también sus funciones y/o actividad resultan comprometidas y, en definitiva se tienen sólo vacuolas de melanina.
Por el contrario, muy interesante resulta el comportamiento altruista de los melanocitos. Los melanocitos inician su actividad, se obtiene una cierta producción de pigmento, después de lo cual la melanogénesis se detiene y los melanocitos permanecen en un estado silente (inactivos), por lo tanto no se forman los melanosomas y las otras estructuras celulares no quedan aplastadas y su actividad no queda comprometida (altruismo).
Concluyendo, tenemos o podemos tener zonas del organismo (ojo incluido) sin melanocitos o bien que estén normalmente presentes, pero inactivos, en consecuencia, zonas carentes de melanina o con presencia reducida de la misma. Llegados a este punto, la pregunta surge espontáneamente: ¿qué tipos de canario presentan el raquis claro y por qué? Un buen tema de reflexión que dejo a los aficionados interesados.
Para completar mis consideraciones, aporto algunos aspectos relacionados con el tema.
Fenotipo - Genotipo de los canarios de ojos rojos (OO.RR.) Algunas evaluaciones clínicas
Los OO.RR. Es una anomalía congénita hereditaria, consistente en la ausencia o deficiencia de pigmentación melánica en los ojos, en la piel y en los anejos cutáneos. Por tanto, los OO.RR. es una condición génica debida a los diferentes posibles defectos de los distintos genes, que dan al organismo las indicaciones necesarias para la producción de melanina en la piel y anejos y en el ojo y otras zonas del organismo.
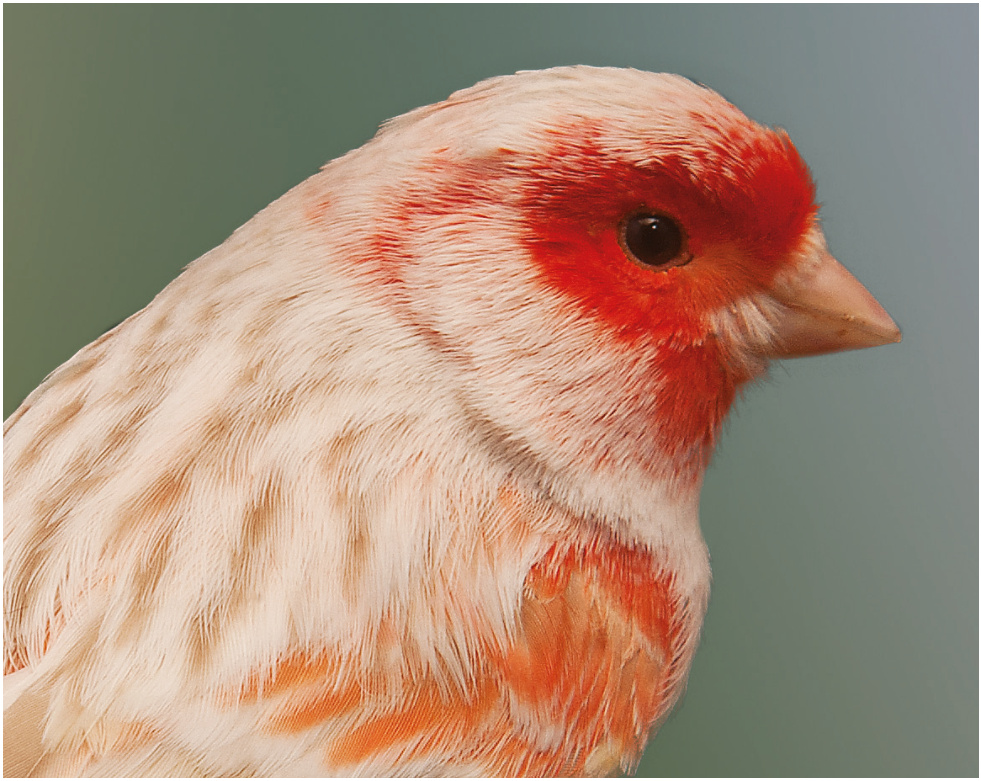
La herencia La mayor parte de las condiciones genéticas de los OO.RR. en los canarios son autosómicas recesivas (por ejemplo, canarios afectados por el 4º factor de reducción - Phaeo), mientras que el Satiné es la única condición genética de los OO.RR. en los canarios recesiva y ligada al X (X-linked) (5º factor de reducción - Satiné).
OO.RR. autosómico recesivo Todos los canarios afectados por el factor phaeo presentan los ojos rojos. En estos canarios, uno de los genes defectuosos que determina la característica OO.RR. está situado sobre un autosoma, o mejor, en pareja doble, sobre una pareja de autosomas (autosómico) y ambos autosomas deben contener el gen defectuoso para que pueda manifestarse la condición de mutado (mutación autosómica recesiva). En el caso en el que una de las dos parejas del gen en cuestión fuese defectuosa y la otra normal, la anomalía OO.RR. no se manifestaría y el ejemplar, macho o hembra, resultaría ser un portador sano.
OO.RR. recesivo ligado al X (X-linked) Los canarios afectados por el factor Satiné presentan los ojos rojos. El gen implicado esta localizado en el cromosoma X (gen ligado al X) y para que la condición se verifique es necesario que haya dos pares defectuosos del gen (recesivo) en el macho, mientras que basta un sólo par en la hembra. La hembra tiene un solo X, por lo que un solo par del gen defectuoso sobre el único X disponible será suficiente para que la condición se verifique en el fenotipo. El macho, por el contrario, al tener dos X necesita dos pares defectuosos del gen para manifestar fenotípicamente la condición genotípica. El OO.RR. recesivo ligado al X afecta a las hembras que heredan del padre el X y por consiguiente el par de cromosomas anómalos. El padre es un portador sano porque tiene una pareja anómala del gen sobre un X y otra normal sobre el otro X. Esto explica las diferentes posibilidades con las que el OO.RR se manifiesta en los dos sexos. El OO.RR. es una condición genética anómala de la síntesis de la melanina caracterizada por la ausencia o reducción congénita del pigmento melánico sobre la piel y anejos cutáneos y sobre todo en los ojos. En lo que refiere a la afectación de los distintos órganos y tejidos, se suele diferenciar esta anomalía genética (OO.RR.) en completa e incompleta. • Completa y/o total. Ejemplares con ausencia total del pigmento melánico tanto a nivel cutáneo como ocular. • Incompleta y/o parcial. Ejemplares con ausencia total del pigmento melánico a nivel ocular y con alguna pigmentación, o hipopigmentación, a nivel cutáneo. Por tanto, se delinean dos tipologías de canarios con OO.RR. diferentes por fenotipo y por modelo hereditario. El aspecto fenotípico pigmentario presenta una amplia heterogeneidad relacionada con la heterogeneidad genética y con la heterogeneidad alélica implicada de vez en cuando. Mientras que las variaciones oculares, fenotipo oftálmico, objeto de estudio, a tomar en consideración para definir clínicamente la anomalía genética OO.RR. son, en los machos portadores heterocigotos obligados, recesivo Xlinked, las siguientes anomalías:
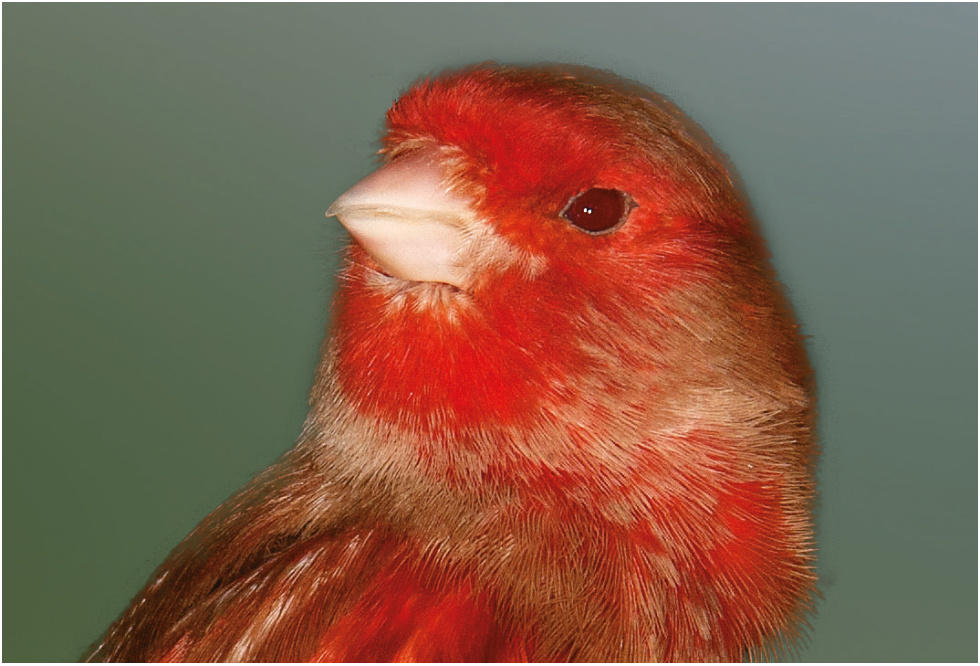
1. Hipopigmentación del iris Una hipopigmentación estromal y del epitelio pigmentado del iris, determina una transparencia variable, desde un estado de completa transparencia por la que el ojo aparece rojo a simple vista o bajo ciertas condiciones de luz (el reflejo proveniente de la retina atraviesa el iris poco o nada pigmentado) y áreas punteadas de transparencia. Por tanto, una completa transiluminación del iris se debe a la ausencia de melanina, fenómeno observable mediante el microscopio de lámpara de hendidura (a confirmar clínicamente en el canario, aunque ya se ha confirmado en el ser humano y en ratas y ratones), en el 80-90% de los casos de machos portadores de OO.RR (X-linked).
2. Hipopigmentación de la retina Bajo examen oftalmológico, la retina se presenta roja/rojiza. Su transparencia es debida a una reducción/ausencia de melanina en el epitelio pigmentado de la retina, lo que hace visibles los vasos sanguíneos de la coroides subyacentes. La retina de los machos portadores de OO.RR. (X-linked) presenta en el 80/90% de los casos ( a confirmar clínicamente en el canario aunque ya se ha confirmado en el ser humano y en ratas y ratones) los signos del portador o una despigmentación irregular del fondo ocular , asumiendo un aspecto en estrías despigmentadas hacia la periferia, el llamado “mosaicismo de la retina”.
3. Hipoplasia foveal El desarrollo anormal de la fovea parece estar relacionado con una reducción/ausencia de la melanina durante el desarrollo del ojo (a confirmar clínicamente en el canario, aunque ya se ha confirmado en el ser humano y en ratas y ratones). Mientras en los hetrocigotos (portadores) OO.RR. autosómico recesivos, los cuales son asintomáticos, no son clínicamente observables las mencionadas anomalías del sistema óptico.
Opinión · Sobre las melaninas del ojo
Texto: Giovanni Canalli · Fotos: Alcedo
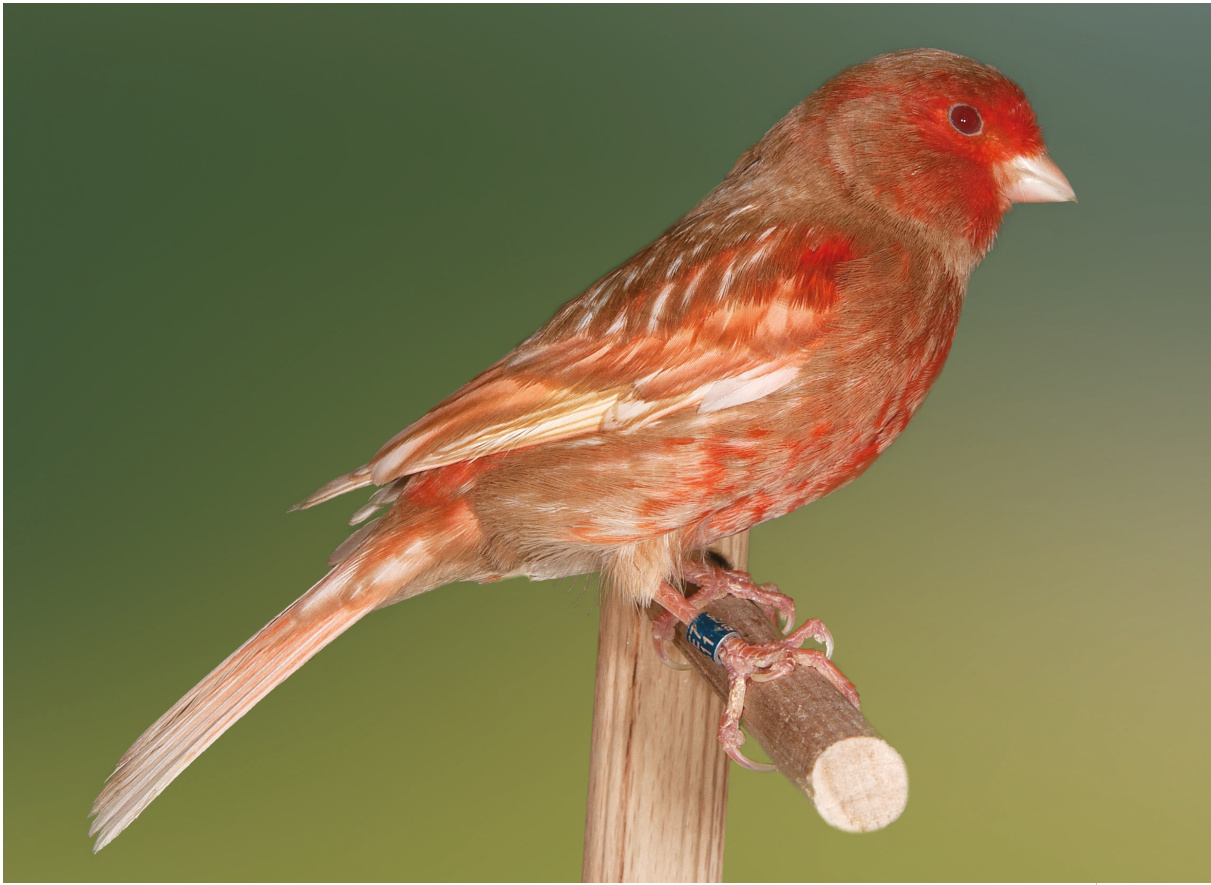
He leído con mucho interés el artículo Las melaninas del ojo, de Gennaro Sebastianelli. Hace ya tiempo que llevaba pensando en escribir un artículo sobre el tema, aunque al no ser yo biólogo, me hubiese tenido que limitar a una exposición ligada a los aspectos visuales, dado que no me considero capaz de hacer análisis al microscopio o de dar disertaciones bioquímicas profundas. En el artículo en cuestión he apreciado varios aspectos, en el límite de mis conocimientos. Tendría curiosidad por saber algo más sobre carotenoides del ojo. Sabía ya de su existencia, pero se poco sobre su color o sobre su relación con el plumaje, que no debería producirse pero que no puedo excluir. Por lo que se, el rojo del ojo debería ser imputable en cualquier caso sólo a la sangre en transparencia y agradecería que alguien me lo confirmase. Por lo demás, el autor ha hablado sólo del “ojo bayo”. Un punto sobre el que sí puedo hacer una objeción es el que se refiere a la base poligénica del color del ojo. Ciertamente hay herencia poligénica, pero creo que es más amplia que la propuesta de sólo tres genes. Un sólo gen para la formación de la melanina es poco ya que hay al menos cinco mutaciones diferentes que actúan también sobre el ojo (bruno, phaeo, satiné, topacio y eumo) siendo alélicas sólo la phaeo y la topacio. Según mi opinión pues es lógico pensar que los genes involucrados son al menos cuatro. Habiendo apreciado mucho esta investigación, quería someter al autor otros aspectos sobre la coloración del ojo que no han sido tratados, tanto para tener una opinión como para eventualmente sugerir futuras investigaciones. Un primer aspecto se refiere a las diferencias de color del ojo entre pollo y adulto. En las mutaciones que inciden sobre el ojo, los pollitos presentan una evidente mayor intensidad del rojo que en los adultos. Por ejemplo, el phaeo negro en los primeros momentos de su vida tiene un ojo rojizo bastante oscuro, que a los pocos días aparece negro como en el adulto. Al tratarse de una regla general, más o menos evidente, supongo que está relacionada con una menor cantidad de eumelanina en el ojo de los pollos, respecto a la de los adultos. Considero menos probable una mayor expresividad de los genes mutantes en las primeras fases de su desarrollo. Señalo, sin embargo, un contraste que consiste en que en los pollos del tipo negro, la epidermis es muy negra. Se diría que ojo y epidermis, en las primeras fases de desarrollo, presentan situaciones opuestas, por lo que se refiere a las melaninas. Concluyo mi razonamiento recordando cómo en especies dimórficas, los inmaduros se parecen a menudo a las hembras, las cuales tienen más feomelanina y menos eumelanina que los machos, regla general que yo he señalado en numerosas ocasiones y que está relacionada con las hormonas. No se si puede tener algo que ver con los temas expuestos. Otro aspecto al que presto atención desde hace algún tiempo es que, lógicamente, nuestra especie tiene límites visuales, que no nos permiten apreciar ciertas diferencias de color. Sabemos que no podemos ver por debajo del rojo (infrarrojo) o por encima del violeta (ultravioleta). Mi opinión es que la mutación ágata tiene en su acción un efecto también sobre las melaninas del ojo, aunque nosotros no seamos capaces de apreciarlo, por lo menos no a simple vista. Esta consideración la he hecho al ver cómo la mutación ágata, interactuando con mutaciones que afectan a las melaninas del ojo, incrementan el rojo mismo, incluso de modo muy considerable. Además, el ágata es una mutación alélica al satiné, que afecta al ojo, aunque no es una prueba, si que es un indicio. La interacción entre la mutación ágata y la bruno, como ya sabemos, produce la mutación isabela. Ahora bien, el ojo del bruno es rojo oscuro de pollo y pasa a ser aparentemente negro pocos días después. El isabela tiene los ojos rosa de pollo para convertirse después en oscuros, casi negros, pero con una condiciones de luz óptimas, con una observación atentísima y experimentada, aparecen brunastros. Otro ejemplo más significativo es la interactuación del ágata con el phaeo. El phaeo negro presenta la situación ya descrita, el ágata phaeo, como obviamente el isabela phaeo, por el contrario, tiene los ojos rojos como en el adulto. Otras consideraciones nos llevan a ver cómo, por regla general, el rojo del ojo es más evidente cuando se practican acoplamientos con portadores. Los phaeo, los satiné y probablemente también los topacio presentan ojos más rojos si son hijos de portadores. Incluso la expresión melánica del plumaje de los negro phaeo se ve afectada. De hecho, el acoplamiento mixto previene el efecto “melanina central”. Considero que también el topacio presenta mejor el raquis claro si provienen de acoplamientos mixtos. No son acertadas las razones de la mayor tipicidad que se produce con acoplamientos mixtos, conocida también en otros casos como en los opal. He intentado alguna hipótesis muy dudosas, haciendo paralelismo con los enzimas respiratorios, pensando en un mecanismo parecido y parcial, anulado por el acoplamiento mixto. La consecuencia sería una exaltación de la tipicidad del carácter recesivo, si es sensible al hipotético fenómeno mencionado. La focalización hacia los acoplamientos en pureza es muy fuerte por varias razones, como el deseo de tener toda la prole del tipo deseado o la dificultad de prever los resultados de los acoplamientos. Sin embargo, están plenamente justificados los criadores de phaeo, dada la discriminación que muchos progenitores hacen en los nidos mixtos hacia los phaeo, que quedan relegados y en los que sólo se embucha a los portadores. Este es otro aspecto digno de ser profundizado, incluso considerando que los satiné no sufren semejante discriminación. Sabemos de la discriminación que sufren los albinos en la naturaleza y que al menos en parte puede darse en ambientes domésticos. En todo caso, si nos preguntamos por la característica que da lugar a la discriminación, supongo que será la despigmentación del ojo, al menos en el caso de los phaeo. No pienso que sea imputable al color del plumaje. De hecho hay reducciones incluso mayores que no dan problemas. En los lipocrómicos, las melaninas están completamente inhibidas, excepto las del ojo, y sin embargo no se ven en absoluto discriminados en los nidos mixtos con melánicos. Además, los pollos sólo tienen plumón los primeros días. Parece que la naturaleza considera demasiado invalidante a la mutación phaeo y no a la satiné, que también incide sobre el ojo. Conocido es que el rojo del ojo del satiné parece a la vista humana mayor que el del phaeo negro pero inferior, por el contrario, al de los phaeo diluidos (¿quizás los pájaros ven algo diferente o particular?). Además, en el satiné, con o sin diseño (éste último denominado lutino en otras especies), el ojo se mantiene rojo incluso en el adulto, a diferencia del phaeo negro, al menos en apariencia. El phaeo mantiene el ojo rojo en el bruno, según mi opinión, en menor medida que en los diluidos. Tanto el phaeo bruno como los phaeo diluidos (ágata e isabela) son fruto de la interacción con otras mutaciones no discriminadas. La discriminación en el ámbito de los pollos negro phaeo, según mi experiencia, no es inferior a la de otros tipos, y semejante a la de los brunos phaeo. O será un caso extraño, pero en mi criadero no he notado nunca discriminación hacia los phaeo diluidos, aunque es cierto que no he criado mucho estos canarios, pero tampoco poco. Está luego la cuestión del eumo, que induce a diferentes interpretaciones. Algunos criadores dicen que funciona como los tipos de ojos rojos mencionados, otros dicen lo contrario y finalmente otros dicen que el ojo rojo, cuando tiene poca eumelanina menos rojo, cuando tiene más eumelanina, más rojo. Espero no haberlo entendido mal pero esta última parece ser la tesis compartida por el autor del artículo precedente. Sin embargo quizás le interese que yo considero tipos iguales y no con interacciones diferentes. Queda pendiente como una cuestión por definir, según mi opinión. Incluso sobre la existencia de discriminación o no en el nido, he conocido opiniones diferentes y dudas. No he comprendido muy bien el sentido de la pregunta sobre el raquis claro y las razones del porqué. Yo ya he citado el topacio, pero sólo hasta un cierto punto, en los negros se nota poco, en las interacciones sí. Hay incluso eumos así. En particular, me gustaría recordar que en los phaeo negro el efecto melanina central se refiere principalmente al raquis, especialmente de las timoneras, que se hace oscuro y sólo en los más defectuosos se extiende más allá, en menor o mayor grado. El fenómeno melanina central se aprecia muy raramente en los brunos phaeo, en los que no se extiende más allá del raquis de las timoneras. En resumidas cuentas, según mi parecer, no subsiste un automatismo perfecto entre ojo rojo y raquis clara, pero quizás no era ese el sentido de la pregunta. Espero que mi intervención, por cuanto tiene de diletante, se aprecie y pueda tener algún resultado útil.
Texto: Gennaro Sebastianelli. Créditos fotográficos conservados en el artículo.