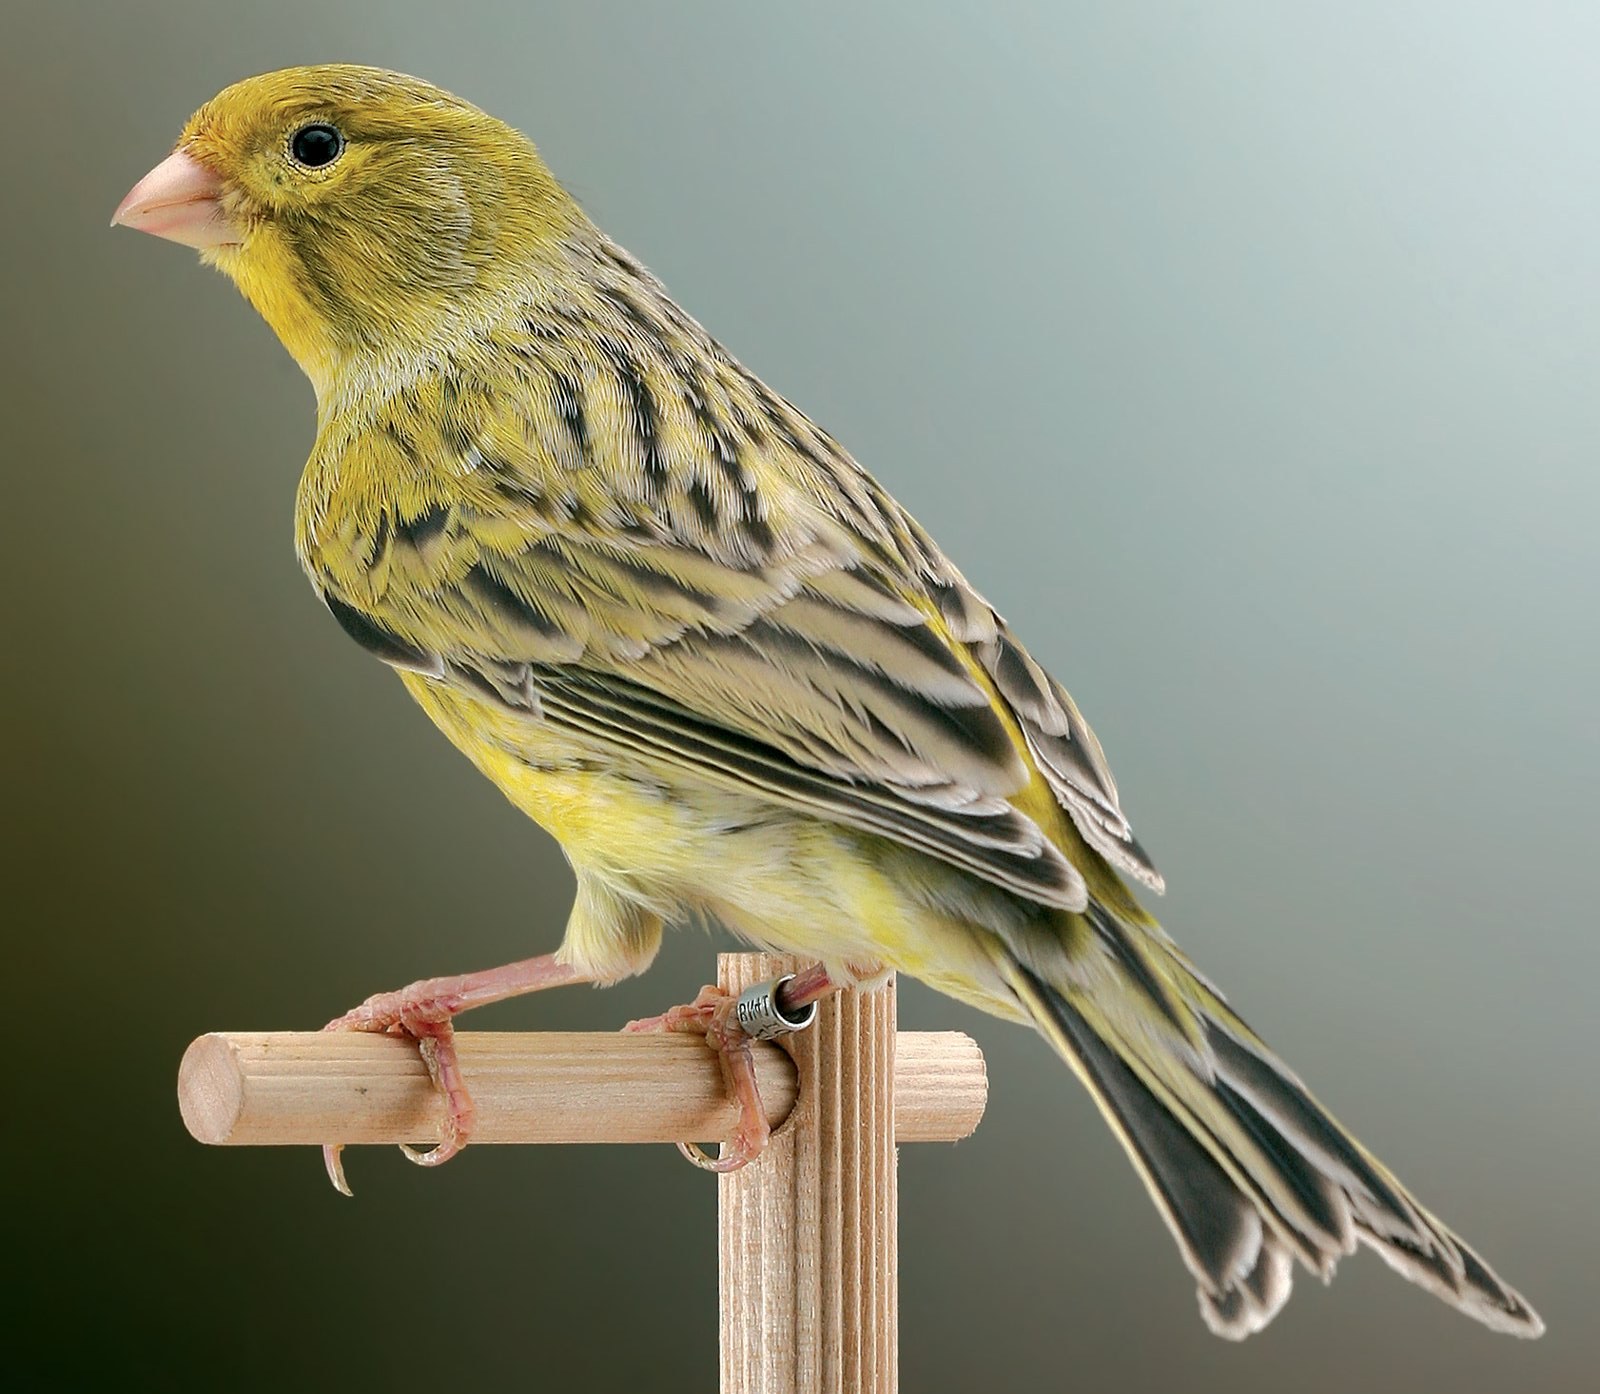
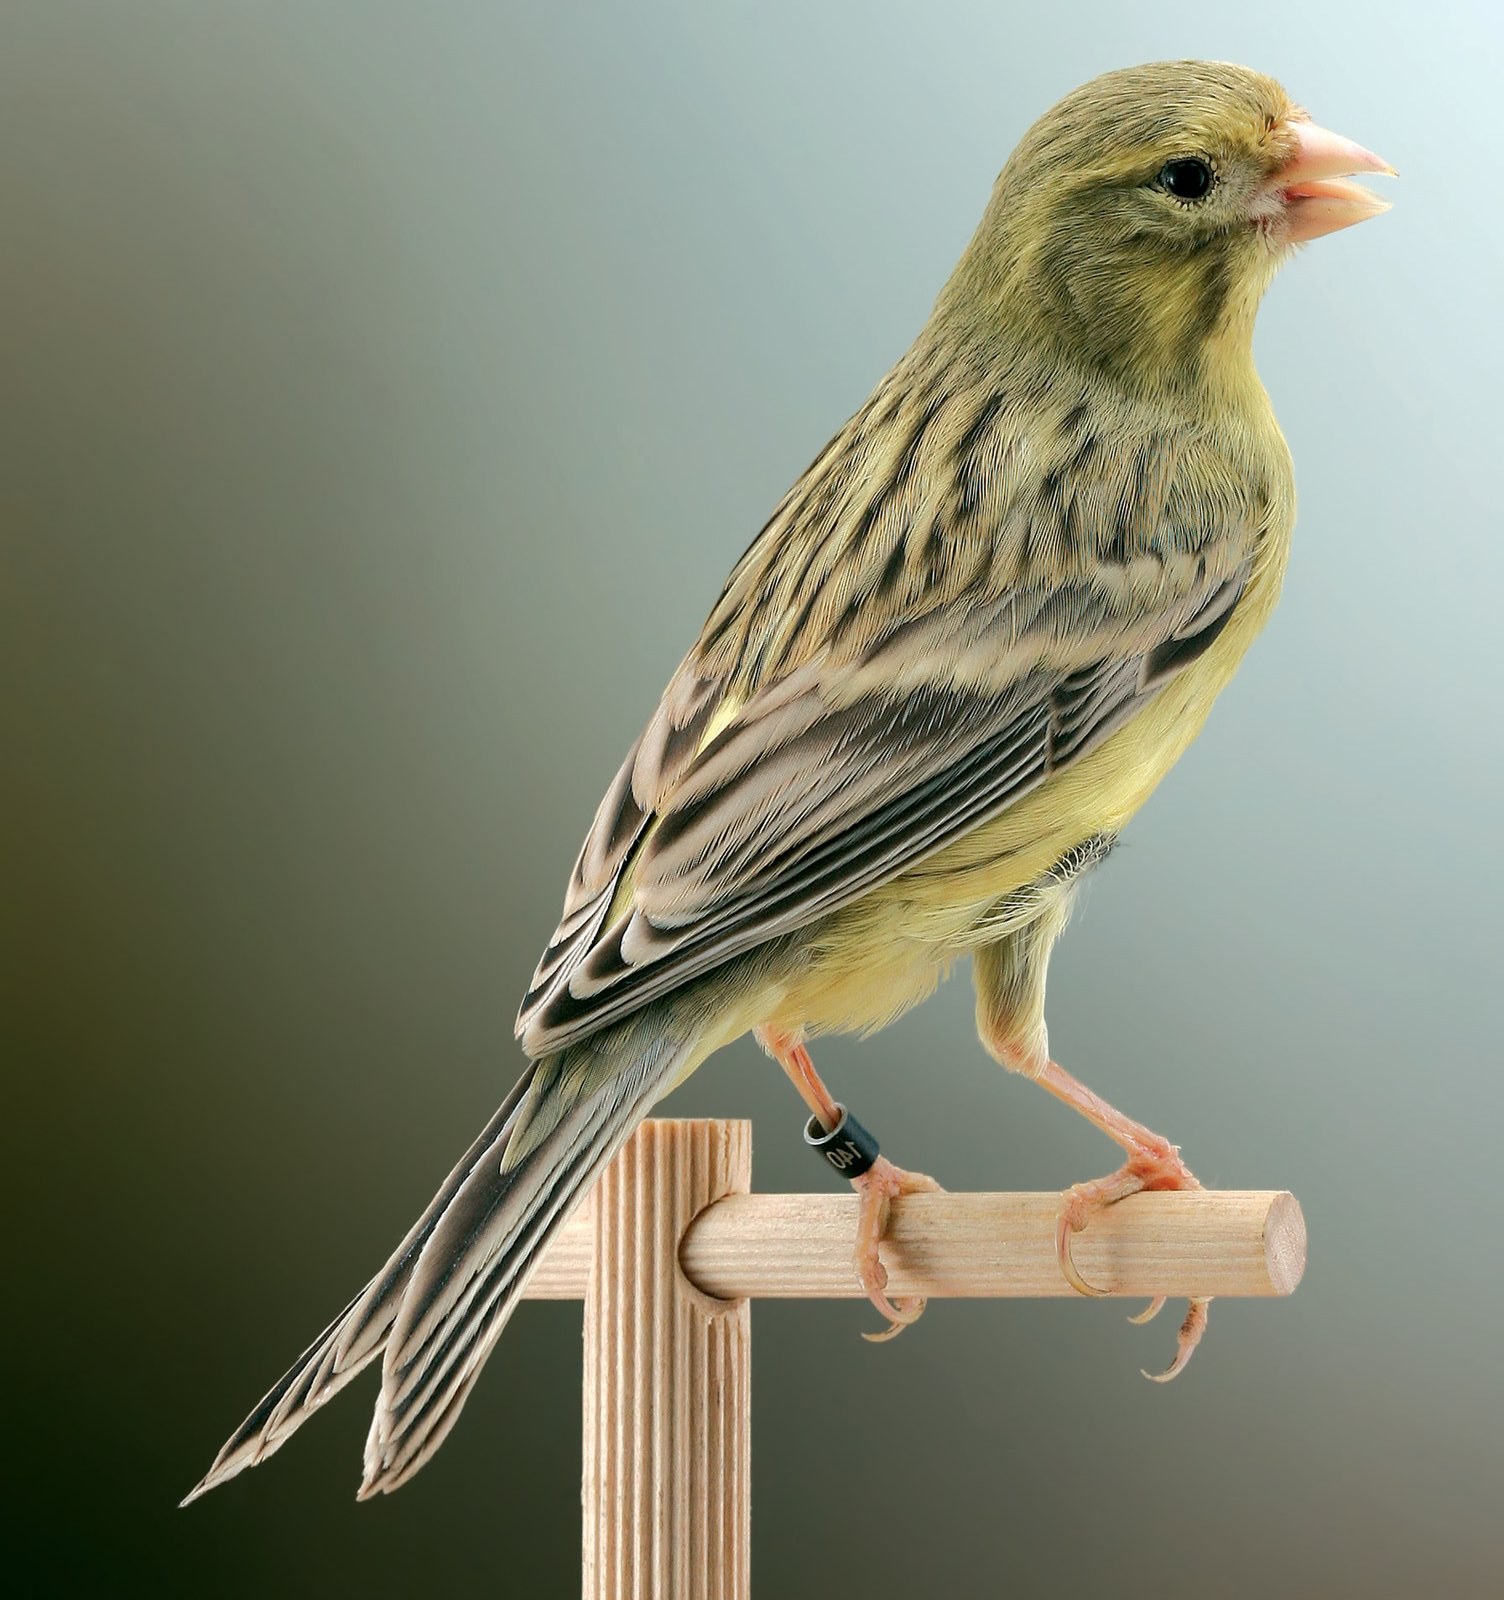
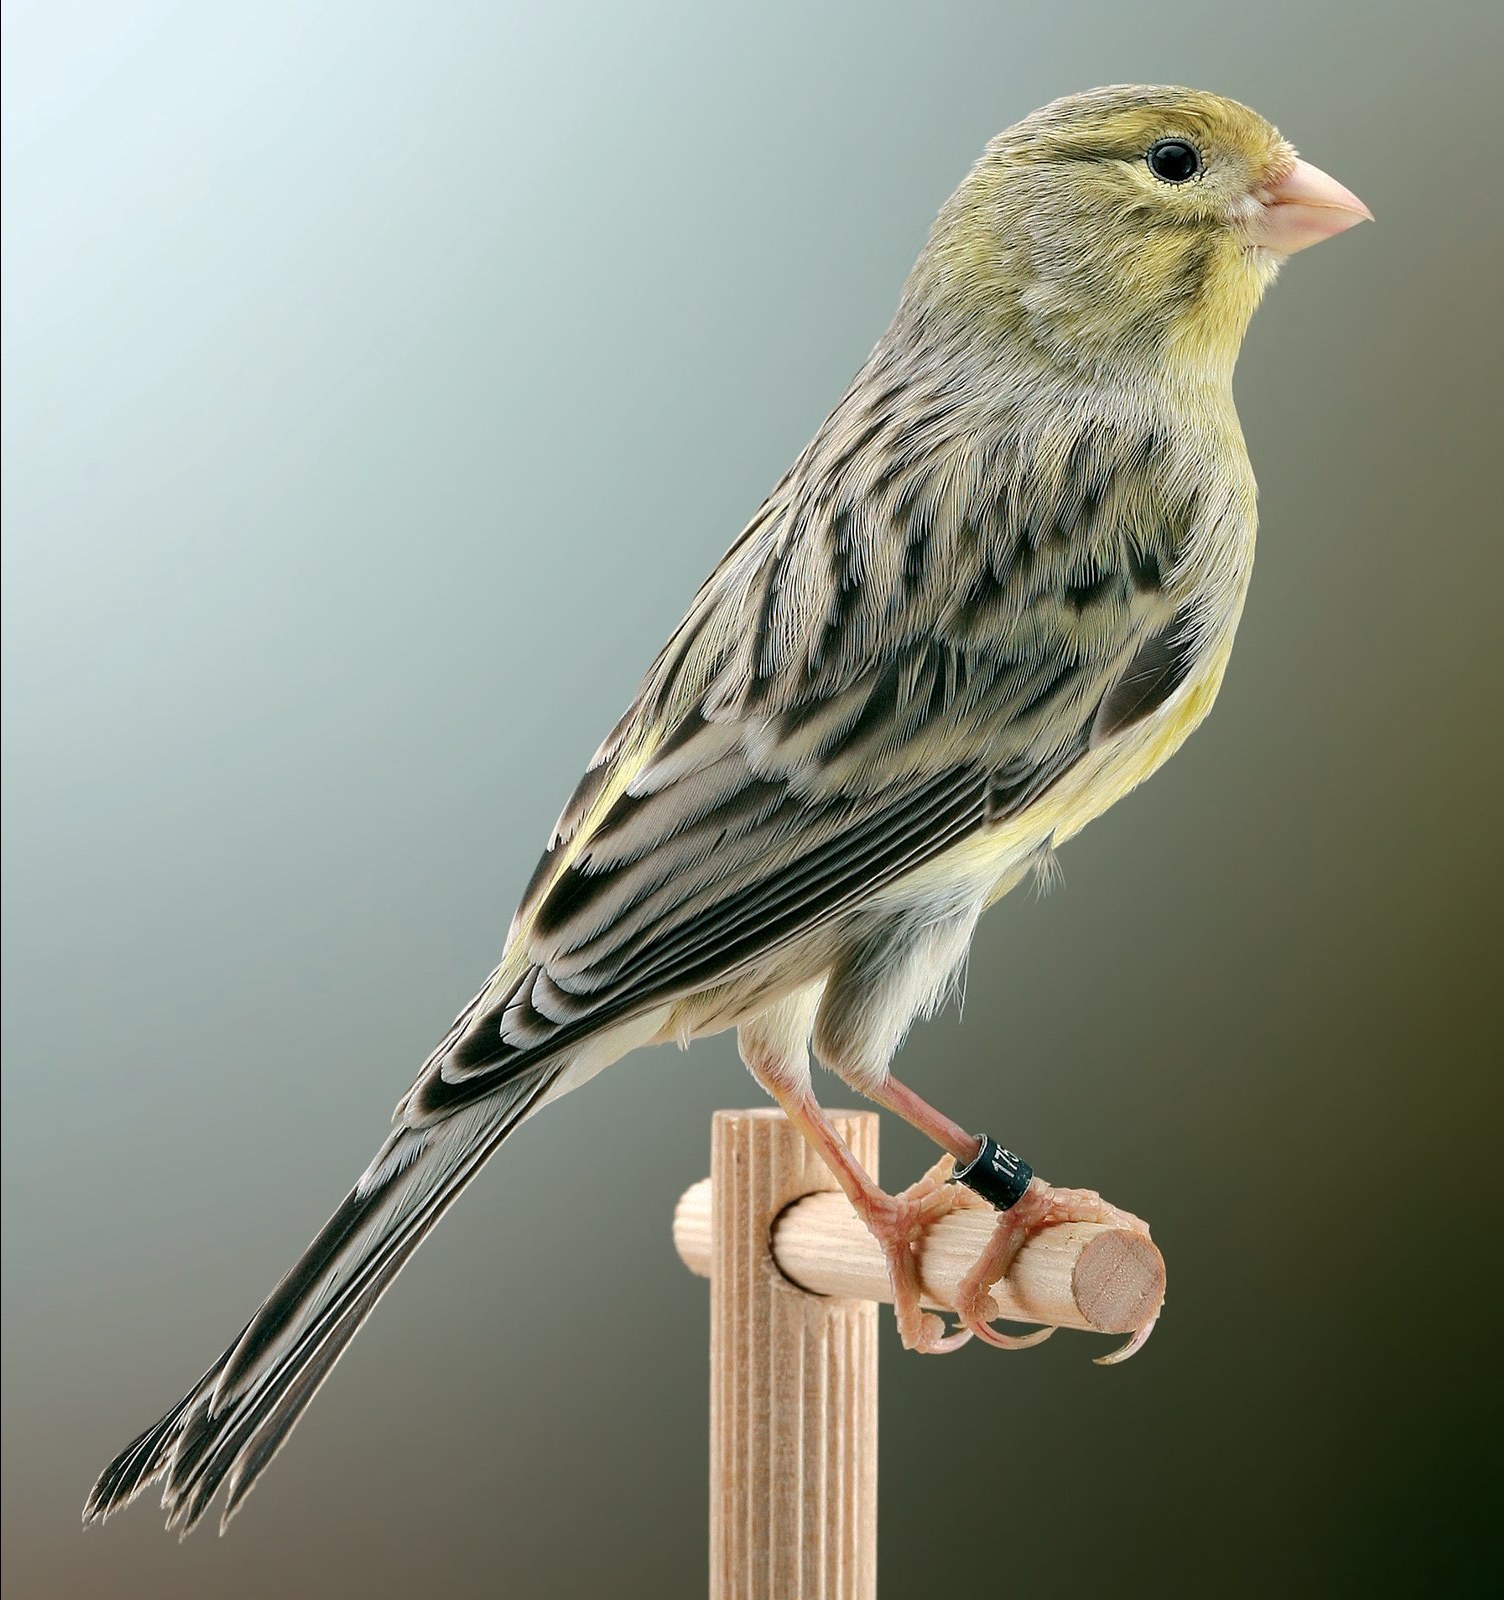
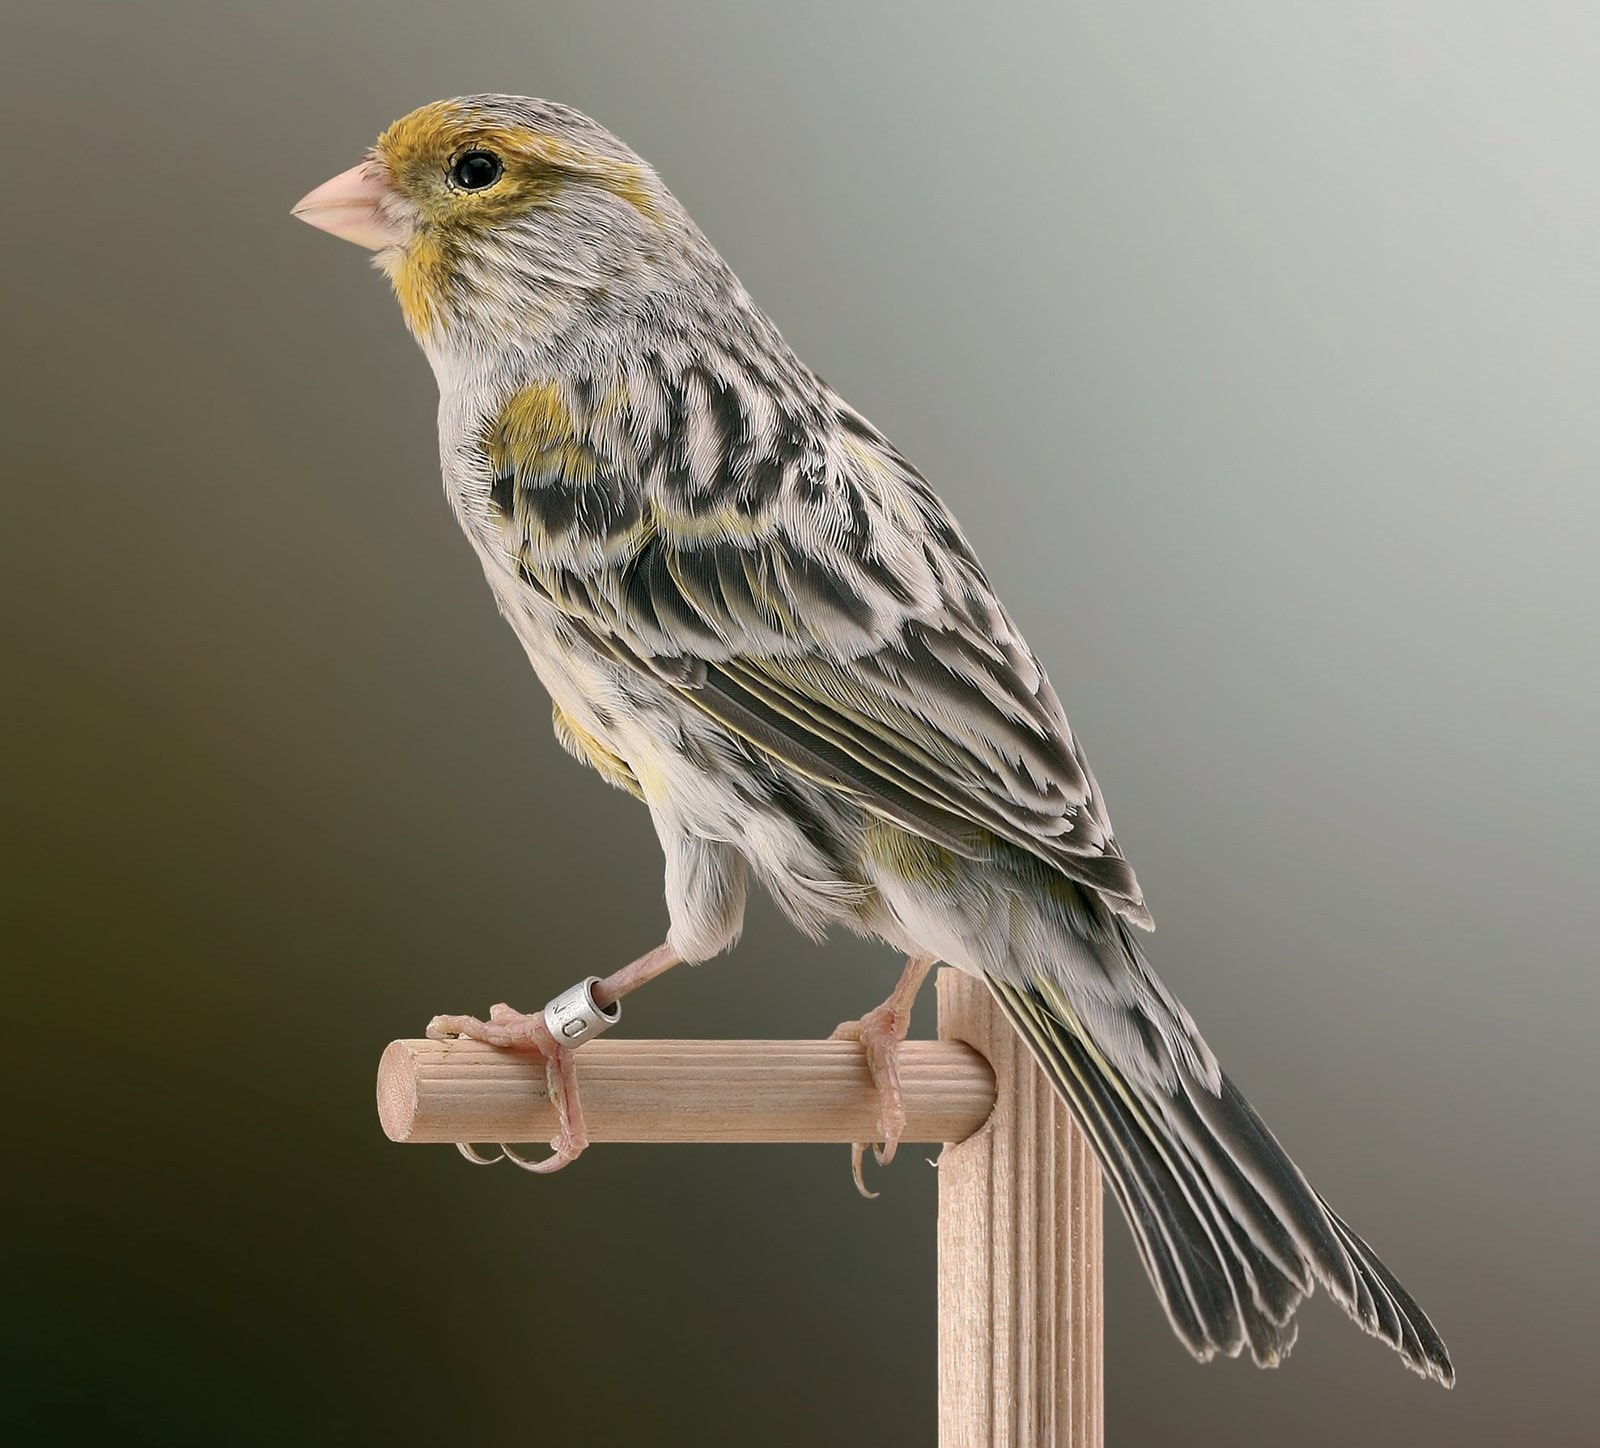
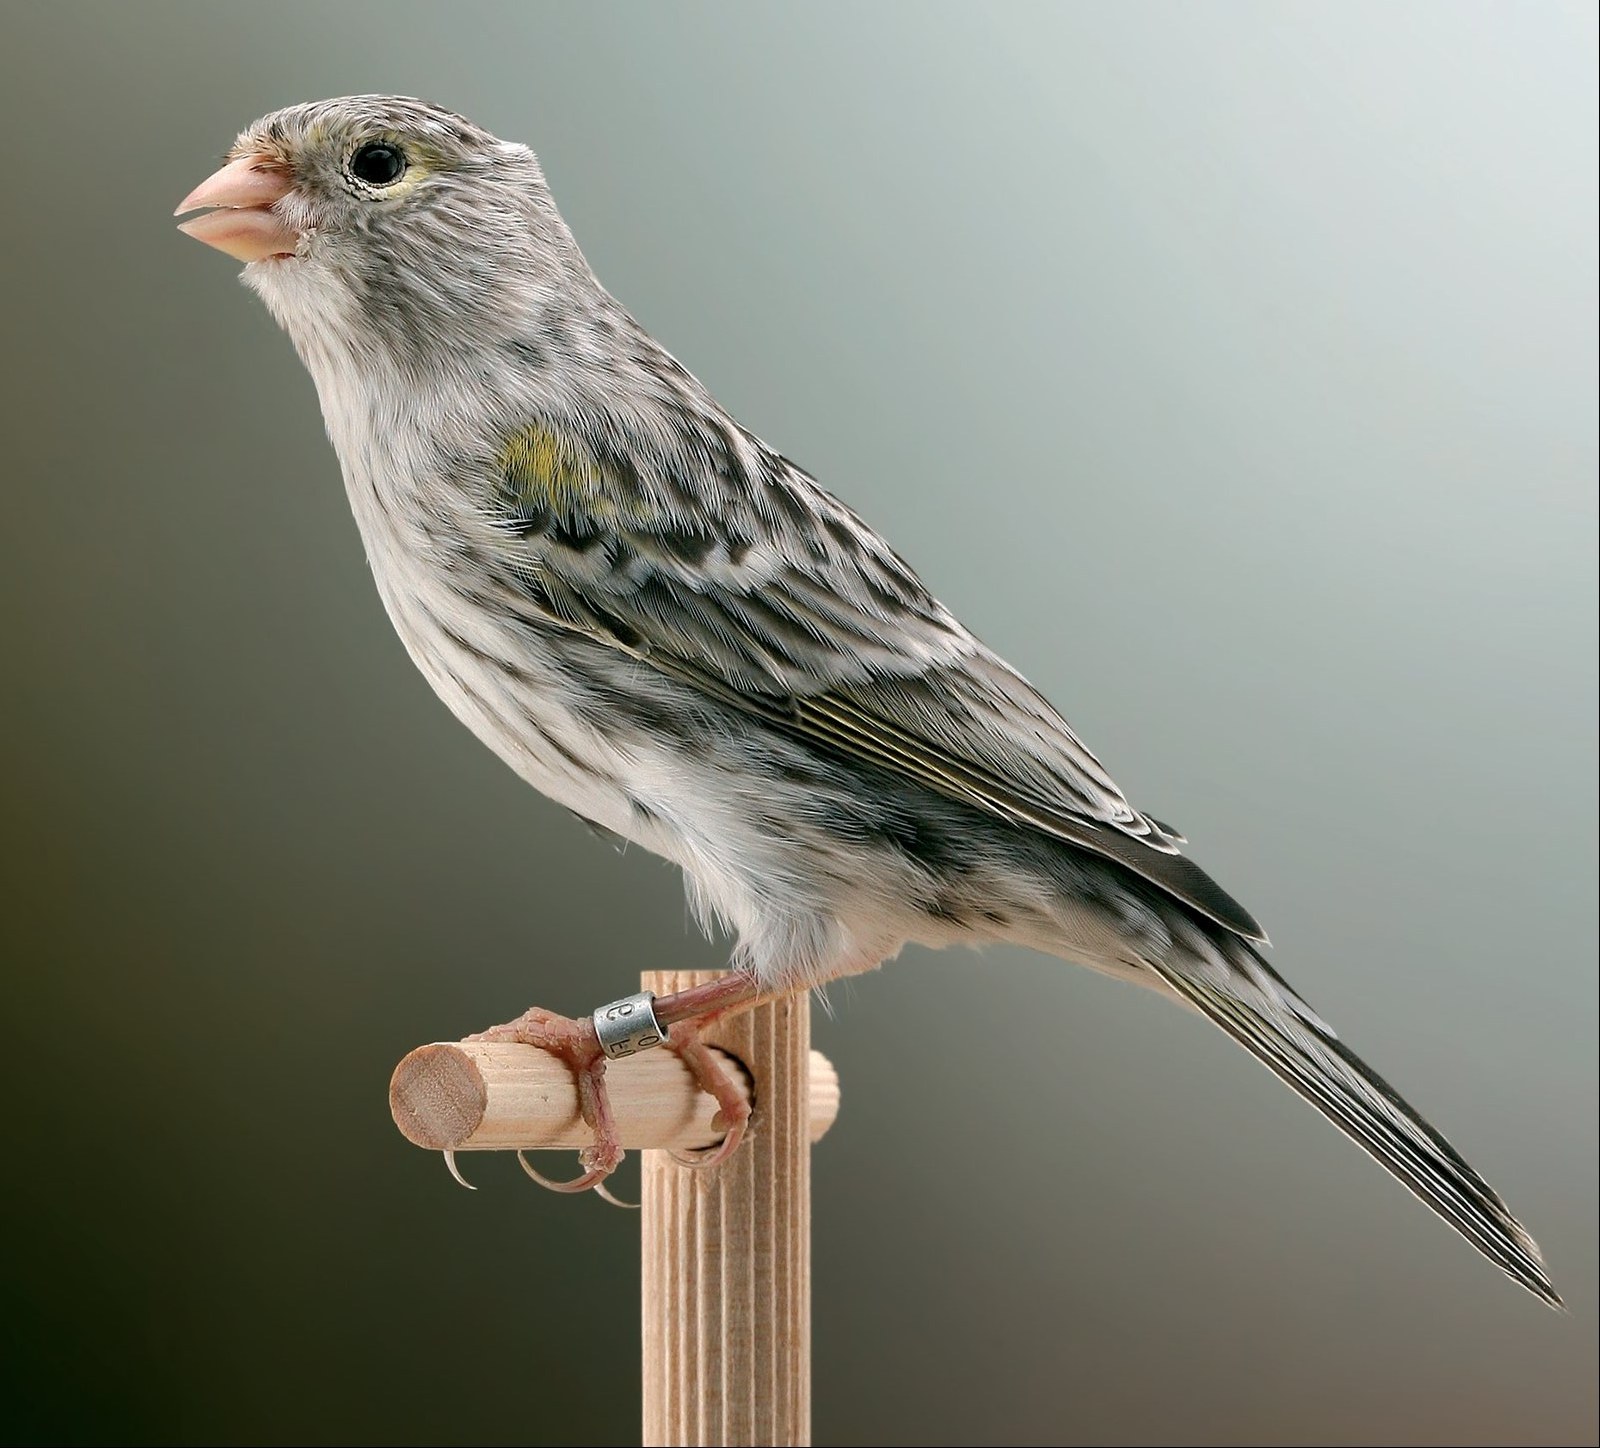
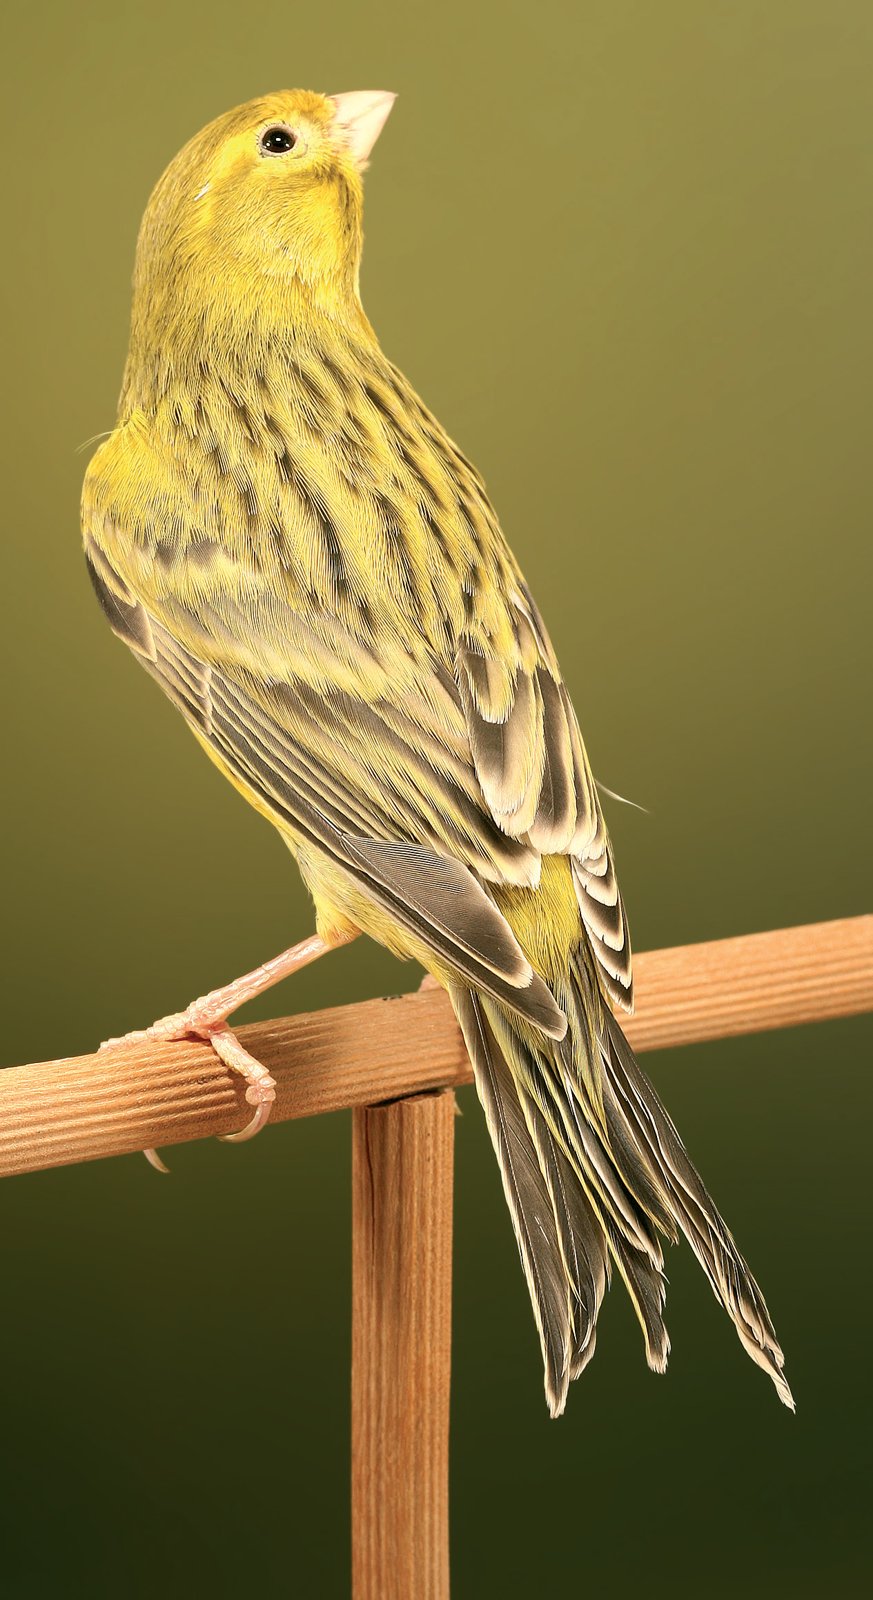
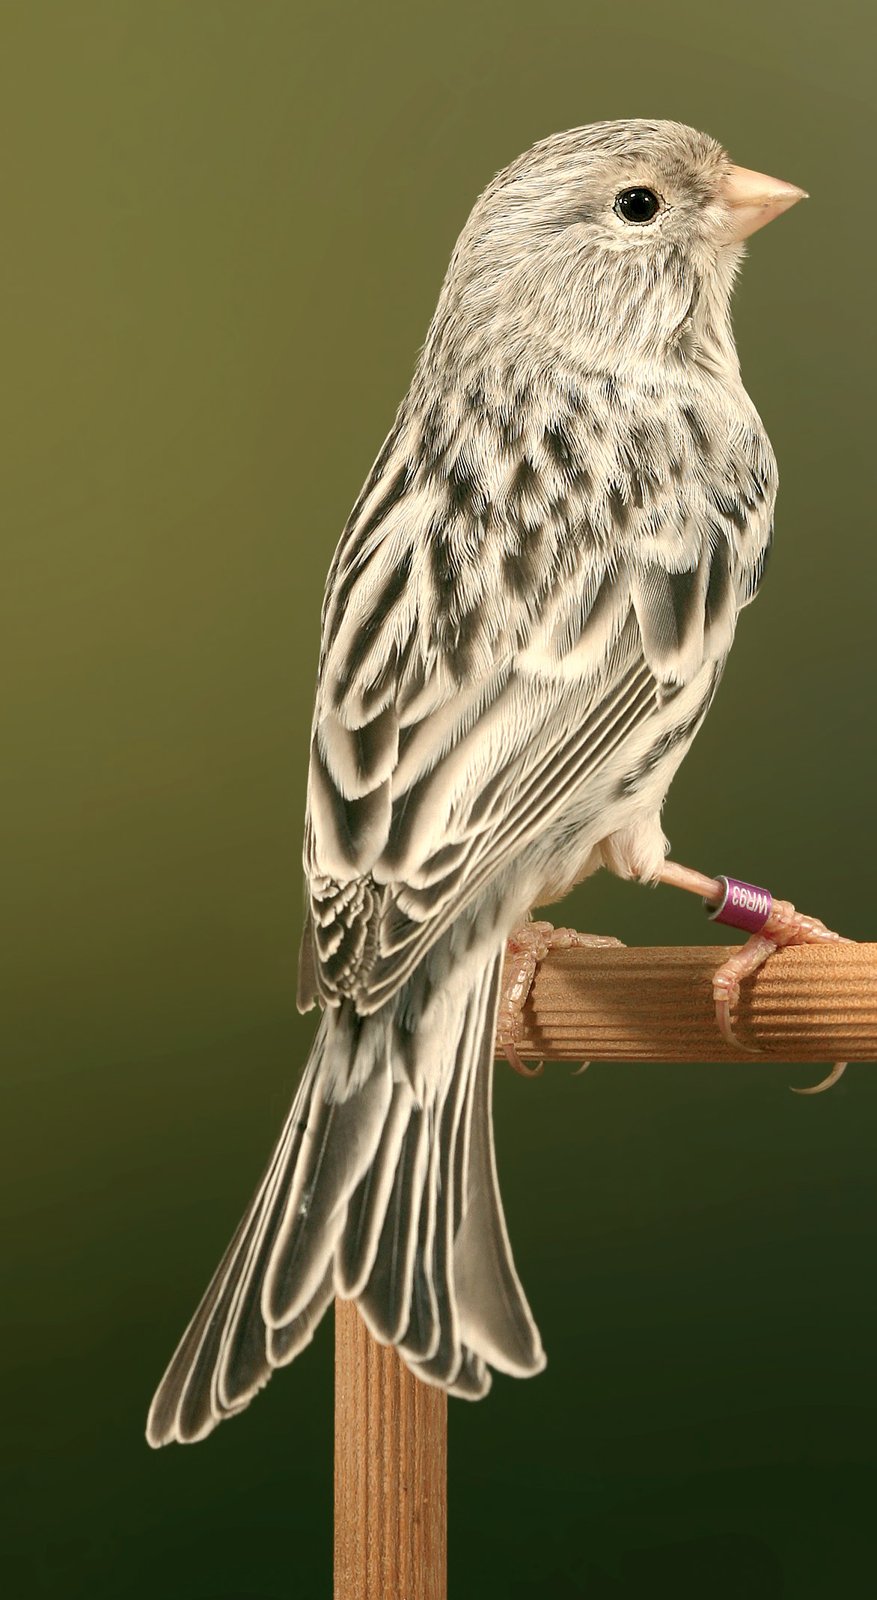
El Ágata se conoce también como Negro reducido, lo que nos indica ya las cualidades extrínsecas, que deben evidenciar las melaninas sobre las que actúa el primer factor de reducción. Esencialmente, el diseño del Ágata se caracteriza por la reducción cuantitativa, que no cualitativa, de la eumelanina negra y la fuerte reducción de la feomelanina. Sin embargo, al considerar la tipicidad del tipo Ágata muchos se dejan desviar hacia un aspecto que no es el principal o el único en este tipo, es decir hacia la máxima oxidación del diseño, sin tomar en consideración o bien considerándolos marginales, los otros factores, en cualquier caso importantes, que se indican en los criterios de enjuiciamiento: - máxima reducción de la feomelanina; - amplio reborde gris perla en rémiges y timoneras; - fondo muy claro y luminoso, que denota una óptima reducción feomelánica; - bigotes bien evidentes, caracterizados por pigmento negro; - zona superciliar carente de pigmento melánico (especialmente en los intensos), índice del grado de reducción de la feomelanina; - estrías sobre la cabeza, sobre el dorso y sobre los flancos, sutiles, interrumpidas y simétricas; - partes córneas color carne.
Según el estándar O.M.J./C.O.M., en los Ágata mosaico el fondo debe tener una tonalidad gris claro, que denota una óptima reducción del bruno (referencia evidente a la feomelanina). Se precisa además que en la zona encima del pico y el superciliar deja verse el lipocromo por efecto de la dilución. Este es uno de los factores más importantes y útiles para calificar un ejemplar como óptimo, aunque muy a menudo no se tiene en consideración.
Las melaninas: nuevos escenarios
Cuando visité por primera vez un concurso ornitológico, quedé impresionado por la vasta gama de colores que los Canarios eran capaces de expresar. Mi primer contacto con la Canaricultura de color quedó marcado por mi deseo de conocer la forma en que era posible obtener tanta combinación de colores. No tenía ningún conocimiento de las leyes de la genética que regulaban la transmisión de los caracteres y, por consiguiente, de los colores. La contribución a la genética aportada por el biólogo y monje agustino Gregor Mendel era un lejano y vago recuerdo, que se remontaba a los estudios de biología allá en mis años de juventud. En mi ignorancia, pensaba que podría obtener cualquier tipo de color mezclando los tintes como se hace en una paleta de pintor, hasta conseguir la tonalidad deseada. Pero pronto me di cuenta de que mi fantasía chocaría con límites objetivos. Aunque la gama de colores de las plumas del Canario sea bastante amplia, no podía modularlos a mi gusto. Soñaba con obtener un canario rojo con estrías azules, los colores de mi ciudad natal, pero hubiese tenido que contentarme con algo similar, como un Negro Opal Rojo.
Para comprender cómo moverme en el dédalo de las leyes genéticas relativas a los colores y comprender cómo conseguir los mejores, empecé a leer libros. Con respecto a las melaninas, aprendí nociones que considero fundamentales para poder comprender la dinámica subyacente a determinadas manifestaciones visibles sobre la librea de los Canarios de color, debidas a mutaciones o a factores que dependen de ellas. Considero importante sintetizar estos aspectos porque son muy útiles para captar el sentido de mis hipótesis sobre las melaninas.
En el campo de la ornitología está reconocida la existencia de dos formas distintas de melaninas: las eumelaninas y las feomelaninas, dos variantes que tienen un mismo origen pigmentario, que se diferencian por un diverso nivel de desarrollo.
Más en detalle, las melaninas se forman a través de procesos químicos de oxidación del aminoácido fenilalanina, que se transforma hasta obtener gránulos primarios , así definidos porque constituyen el primer nivel de pigmentación sobre la piel, de tonalidad muy suave, similar al amarillo. Estos gránulos tiene forma esférica u ovoide y son infinitamente pequeños. El conjunto de estos minúsculos cuerpos permite la manifestación de las feomelaninas. Los gránulos adoptan un color amarillento cuando su diámetro es mínimo, bruno, cuando las medidas de su diámetro aumentan.
Una posterior concentración de los gránulos da origen a gránulos en forma de bastoncitos. Estas formaciones dan lugar a las melaninas, tanto brunas como negras. La diferencia radica en el tamaño de los gránulos y en su concentración. En esencia, el color bruno o negro de las melaninas y su expresión más o menos “oxidada” depende del mayor o menor tamaño de los gránulos que la componen y de su forma.
Nota : Por oxidación se suele indicar el grado de oscurecimiento de las melaninas. Se dice “máxima oxidación” o “fuerte oxidación” para indicar una expresión de las melaninas muy oscura. Se habla de “escasa oxidación” o “falta de oxidación” para poner de manifiesto falta de melaninas o bien que éstas están poco marcadas. Más general es el empleo de “grado de oxidación”.
Una vez comprendidos estos conceptos, era importante para mí comprender cómo es posible obtener melaninas en su máxima expresión, es decir cómo es posible obtener ejemplares más oxidados, dado que los ejemplares típicos se entiende que deben presentar esta característica.
Las reacciones químicas a través de las cuales se producen las melaninas están controladas por enzimas específicos, cuya síntesis en la célula está a su vez determinada por el ADN.
En cuanto a la oxidación, decir que depende de factores genéticos, independientes de la dieta, aunque sobra precisar que un ejemplar en buen estado de salud podrá expresar mejor su propio potencial que un Canario enfermo, por problemas relacionados a la asimilación del alimento y a su síntesis.
Después de haber comprendido el origen de las melaninas y el hecho de que su expresión depende del patrimonio genético, debía conocer en que modo se disponen las melaninas sobre la piel y contribuyen a formar el diseño. Después de leer toda la información disponible, llegué a la conclusión de que la eumelanina ocupa la parte central de la pluma, mientras que la feomelanina está presente en la zona periférica de la misma. La posición ocupada por la eumelanina sobre la piel se define técnicamente como “ zona de convergencia ”. El diseño está compuesto por estrías, marcaciones y barras y las melaninas están presentes en las barbas, a diferencia de los lipocromos, que lo están en las bárbulas.
Pero pronto un nuevo hecho aportó confusión a mis rudimentarios conocimientos ornitológicos. Recuerdo todavía las discusiones que siguieron a la difusión de la mutación Ónice, que en aquellos años hacía su aparición. Observando los Negros, por primera vez los gránulos de color negro habían hecho su aparición en zonas de la piel en las que debería haber estado presente, por convención, sólo feomelanina.
Se formaron al respecto dos líneas de pensamiento: quienes se inclinaban por un desbordamiento de la eumelanina más allá de las zonas de convergencia y quienes defendían la hipótesis de una conversión de la feomelanina en eumelanina debido a una acción oxidativa diferente.
En aquellos tiempos no tenía las ideas muy claras porque hacía poco que me había introducido en el mundo de la ornitología y mis conocimientos y experiencias no me permitían alinearme con ninguna de las dos posiciones. Tuve la suerte, sin embargo, de contar con el juez, y mi maestro, Renzo Esuperanzi, quien al preguntarle su opinión me puso la comparación del Diamante mandarín mejilla bruna,cuya pigmentación se debe exclusivamente a la feomelanina. Me comentó que por efecto de una mutación, la mejilla se convertía en negra, y Sergio Lucarini, otro conocido juez, descubrió que la feomelanina de los flancos se convertía en eumelanina negra.
Finalmente llegué a la conclusión que sería lícito pensar que gracias a la influencia de la mutación Ónice, allí donde el estadio de oxidación en condiciones normales se detiene a nivel de exteriorización de la feomelanina, se producen posteriores procesos oxidativos, que determinan la formación de gránulos más densos y de forma diferente, hasta el punto de producir pigmento negro.
¿Es oro todo lo que reluce?
Mis siguientes reflexiones se encaminaron a buscar la razón de la coloración verde de la parte visible sobre el fondo, la parte en la que sale el lipocromo, a diferencia de las partes cubiertas por melanina, en los Negros y los Ágatas, es decir la coloración entre una estría y la otra. Empecé a observar cualquier manifestación que contraviniese el dogma clásico de colocación de las melaninas -“eumelanina en el centro de la pluma y feomelanina en la periferia de la misma”-, y me centré en la hipótesis de que las melaninas estuviesen presentes en toda la pluma y no sólo en la parte central de la misma. Esta hipótesis se basaba en el resultado de la observación de Ágata y Ágata Opal de factor amarillo, intensos y nevados, desde una perspectiva diferente.
Una primera expresión que puede apoyar mi hipótesis serían los rebordes, es decir la parte exterior de rémiges y timoneras, donde, si hay, se manifiesta la feomelanina, de tonalidad gris perla , que caracteriza a los mejores Ágata. En la formación de este color no puede intervenir la feomelanina. Según mi opinión, el gris perla es el resultado de la ausencia total de feomelanina, de la reducida presencia de eumelanina negra con niveles de oxidación reducidos y de la rarefacción o bien la falta total de lipocromo.
Otro aspecto que podría apoyar mi hipótesis sería el color verde del fondo de los Ágatas y también de los Negros. Partiendo del presupuesto de que el amarillo del lipocromo y el bruno de la feomelanina son colores cálidos y que el verde es un color frío, y que la composición del verde, color secundario, viene dada por la superposición del amarillo y del azul, teniendo en cuenta que el azul, entendido como color físico, no está presente en los Ágata, también en este caso es lógico deducir que el verde del Ágata (en caso de que esté privado de feomelanina),venga dado por la interacción del amarillo del lipocromo con un color frío, producido verosímilmente por eumelanina negra, aunque reducida respecto a la que está presente en las estrías.
Otro punto que reforzaría mi idea sería la confrontación entre la librea del macho y de la hembra Ágata. Es sabido que las hembras, en igualdad de condiciones, tienen más feomelanina que los machos y que, al contrario, expresan una menor oxidación de las melaninas. Observando mi cepa de Ágatas y las de otros criadores, incluso los de cierto nivel, he observado que las hembras presentan un lipocromo de fondo más amarillo que el de los machos. En esencia, no he observado en una misma cepa machos que manifestasen la misma expresión de amarillo que las hembras. Debo concluir, por tanto, que la mayor oxidación de las melaninas de los machos, presentes en la zona de interestrías, impide al lipocromo amarillo manifestarse con mayor pureza, tal como es posible ver en las hembras, aunque en estas últimas sea siempre visible un apenas perceptible velo de feomelanina.
El tercer elemento relevante en lo que se refiere a mi hipótesis viene dado por el macho Ágata Opal. Algunos de ellos presentan en su vértice una capucha y no un diseño bien diferenciado, compuesta seguramente por pigmento eumelánico. Hago notar que como las hembras no presentan nunca esta característica, eso bastaría para confirmar la tesis de que se trataría sólo de eumelanina negra. He podido observar con claridad a través de un microscópico, básico pero eficaz, algunas plumas del vértice de la cabeza de Ágatas Opal machos, allí donde se presentaba la formación de la capucha melánica. Pues bien, esas plumas aparecen saturadas de melanina incluso en su periferia, allí donde según la regla comúnmente aceptada en canaricultura de color, debería expresarse la feomelanina.
Continuando con mis observaciones, he estudiado también a machos Ágata portadores de Opal. Sobre algunos de ellos he observado un diseño muy oxidado, acompañado de un color de fondo verde oscuro, de tonalidad decididamente fría, no cálida.
Mirando atentamente estos machos, desde diferentes ángulos, se puede notar que presentan diseño sobre la cabeza, pero que éste se enmascara con el verde del fondo y no destaca de forma que pueda ser apreciado de inmediato. Lo expuesto demostraría que una mayor oxidación, además de incrementar la dotación del diseño, incide sobre el color de fondo, haciéndolo más oscuro. Por consiguiente, la melanina negra está presente, también sobre el resto de la misma pluma, aunque en menor concentración que en las partes centrales de la pluma.
Soy consciente de que mis hipótesis provocarán más de una controversia, pero no tengo ninguna pretensión y espero réplicas a mis suposiciones. Estoy abierto a críticas y comentarios, aunque también estoy seguro de que habrá quienes lleguen a razonamientos similares a los míos.
Para concluir decir que en una de mis recientes conversaciones con Cosimo Alfonzetti salió a relucir que según estudios universitarios sobre plumas de algunos pájaros, se ha confirmado lo que acabo de decir: las melaninas, como la feomelanina, están extendidas un poco por toda la pluma, independientemente de lo que se pueda comprobar a simple vista. Evidentemente, el paralelismo con los Canarios de color no es aceptable a priori, pero a partir de aquí podemos suponer cualquier cosa.
Aspectos conexos con la mutación Ágata .... y aledaños
El Ágata es una mutación recesiva y ligada al sexo, alélica a la mutación Satiné.
Ambas mutaciones dependen pues de genes ligados al sexo y que, por consiguiente, están alojados en el único par de cromosomas sexuales. En las aves, la hembra se caracteriza por tener un solo cromosoma sexual, al contrario del macho, que posee dos. Por esta razón, podremos tener machos Ágata cuando en ambos cromosomas, en el mismo locus , esté presente el gen “Ágata” o bien podremos tener un macho “Ágata/Satiné” cuando en un cromosoma está presente el gen de la mutación Ágata y en el correspondiente locus del cromosoma homólogo esté presente la mutación Satiné. En este caso, muchos suelen llamar a estos ejemplares Ágata portadores de Satiné.
Considero que esta denominación no es correcta porque ambos factores se expresan sobre el plumaje, aunque pueda haber una dominancia parcial de uno sobre el otro. En esencia, se trata de una concurrencia de acciones sobre el fenotipo, determinadas por los genes presentes en los dos cromosomas homólogos.
El razonamiento es diferente en el caso de la hembra, la cual, al tener un solo cromosoma sexual, podrá ser o una Ágata o una Satiné, porque la presencia de un gen en el cromosoma excluye la presencia del otro y uno sólo de ellos determinará la mutación.
En canaricultura de color tenemos otros ejemplos de mutaciones alélicas, tales como el Phaeo y el Topacio, el Ónice y el Opal y, con referencia a la categoría, el Intenso, el Nevado y el Mosaico.
Con respecto a las otras mutaciones alélicas que afectan a las melaninas, destacar que las mismas son todas recesivas autosómicas y que para manifestarse sobre la librea deben estar presentes en los dos cromosomas del par que determinan la mutación.
¿Qué ocurre si en los dos cromosomas están presentes una y otra mutación alélica? Ambas influirán sobre el plumaje. Tendremos, por ejemplo un Negro Phaeo y Topacio o bien un Ágata Ónice y Opal.
Y ¿qué ocurre fenotípicamente si en los dos cromosomas está presente uno sólo de estos factores, es decir uno de los dos locus homólogos está vacío y el otro está ocupado por el gen mutado? No sucede nada, contrariamente a lo que afirman algunos, porque con sólo esa información genética no se producirá influencia alguna sobre el fenotipo. En esencia, si el ejemplar es un Ágata portador de Phaeo, veremos un Ágata y nada más. La diferente expresión del tipo es sólo fruto del patrimonio genético y no está influenciado por la presencia de un factor latente (“portado”). No entiendo porqué algunos afirman la existencia de interacciones sobre el fenotipo también en el caso de mutaciones recesivas presentes en un solo cromosoma.
Aspectos conexos con los acoplamientos
El acoplamiento en pureza es el que proporciona mejores resultados, si tenemos la precaución de seleccionar respetando lo exigido por el estándar.
El recurso al Isabela es factible con la condición de que se den los mismos requisitos de oxidación y limpieza del fondo. De hecho, el Isabela no surte el efecto de “limpiar” el Ágata, haciendo que resalte el lipocromo.
No es en absoluto aconsejable recurrir al Negro por su excesiva oxidación, que contrasta con los efectos de dilución deseados y por el inevitable alargamiento del diseño que se produciría.
Finalmente, no es lógico producir Ágatas o Satinés (son sólo los machos obviamente) con el fin de obtener ejemplares de fondo terso, es decir carente de feomelanina. En este último caso, se vería también perjudicada la expresión de la eumelanina negra.
Texto: Diego Crovace. Fotos: Alcedo.