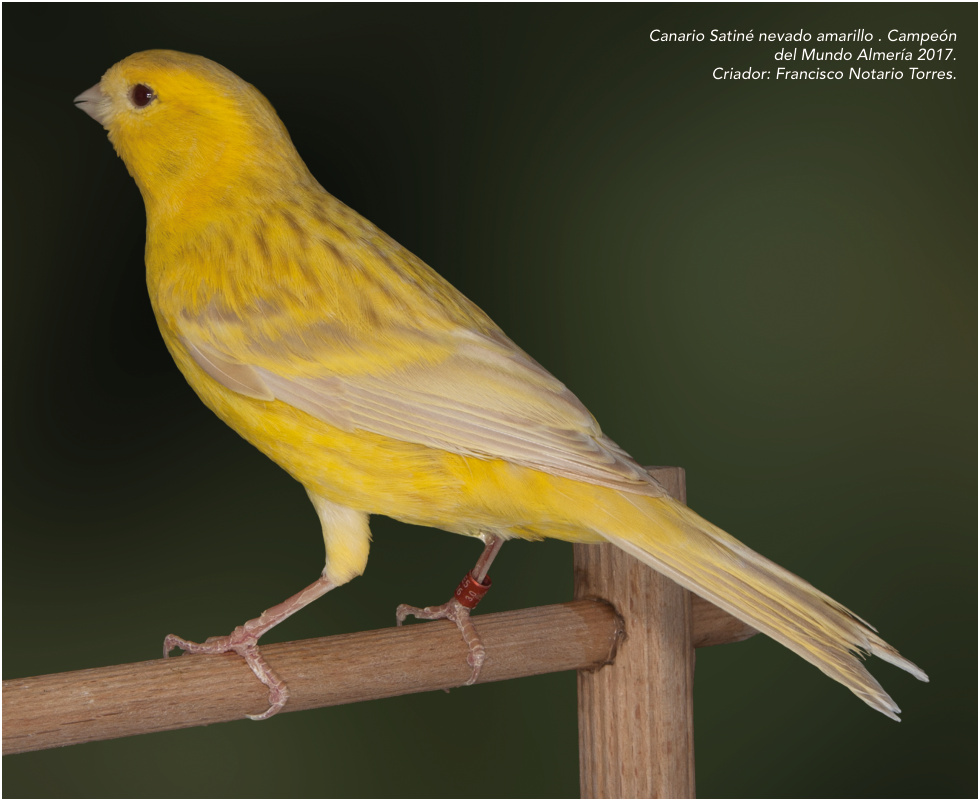
A veces hay que tomar distancia y abrir la perspectiva para una distinta y más completa percepción de las cosas, sometiendo las ideas a la comparación con hechos que se repiten de manera obstinada en otras realidades tangibles. Voy a proponer en estas líneas el concepto de alelomorfismo del mutante Satiné del canario y su desvinculación de la dogmática unión con el primer factor de reducción (Ágata en la serie negra e Isabela en la serie bruna) para su expresión fenotípica.
Motivación de este artículo Debido a la aparición en el canario de color de un fenotipo satiné con fuerte oxidación de la eumelanina bruna, con barras melánicas anchas y largas, obtenido por selección por un grupo de criadores italianos que comenzaron a trabajar en 2006 para plasmar la acción super reductora del Satiné en los canarios Brunos, se abrió un interesante debate sobre la verdadera naturaleza genética del Satiné. Se puso en tela de juicio los fundamentos clásicos en canaricultura sobre la indisoluble unión del Satiné con respecto al primer factor de reducción, tanto en la serie negra como en la serie bruna (Ágata e Isabel) y se publicaba en las revistas Nuestros Pájaros (nº 21 y 27) y Ornitología Práctica (nº 65 y 71) diversos puntos de vista al respecto de los Sres. Rodríguez Nadales, García Rozas, Crovace y Rodríguez Benavente Unos abogaban por la ruptura de la vieja ley empírica que afirmaba la imposibilidad de entrecruzamiento (crosssing over) entre fragmentos del ADN de pares de cromosomas homólogos, ya que debido a la corta distancia en la unidad de medida (Centimorgan) entre dos genes del mismo par en las supuestas posiciones distintas (loci) del alelo Satiné y de los alelos de oxidación y reducción, el proceso de arrastre de las cromátidas y el intercambio de porciones de dicho ADN habido durante dicho proceso era inviable, por no romperse el quiasma, a juzgar por la experiencia habida hasta ese momento. No se producía, según dicha experiencia, un entrecruzamiento que llevara al alelo satiné al mismo lugar (locus) que ocupaba el alelo de oxidación melánica (Negro-bruno o Bruno, según la serie melánica en la que se diera), realizándose sólo dicho entrecruzamiento con el alelo de la reducción de la melanina (Ágata e Isabel, según la correspondiente serie melánica), por estar íntimamente ligados dichos alelos con el Satiné o compartir éste con ellos dicho locus. Otros autores (Rodríguez Benavente, José Manuel Ornitología Práctica ,nº 71y García Rozas, J. Manuel, Nuestros Pájaros nº 27) intuían que el Bruno Satiné pudiera ser un alelomorfo intermedio y novedoso entre el Ágata y el Satiné, esta vez en la serie melánica Bruna. No se descartaba que hubiesen aparecido alelos similares con anterioridad, incluso éste mismo, pero en la serie melánica Negra-bruna, que acabaran siendo desechados por pasar inadvertidos o no ajustarse al estándar de selección de los alelos que determinan el fenotipo Ágata y Satiné. García Rozas demostró incluso mediante una serie de cruzamientos experimentales, que el Satiné podría ser otro factor a tener en cuenta, y que los resultados de sus experiencias refutaban la ligazón del Satiné con el factor de reducción y su obligada existencia en crossing over. Otra posibilidad era que el llamado fenotipo Bruno Satiné fuera una expresión exacerbada, por selección, de la oxidación melánica de base bruna (polimerización incompleta de la tirosinasa) sobre la que actúa el Satiné, y no obrando éste su acción fuertemente reductora de la eumelanina negra mutada en cuanto a su polimerización cuantitativa, ya sea por oposición de dicha oxidación extrema o por pérdida de penetrancia de su fuerza reductora. Aún se baraja una denominada 4ª teoría por parte de otros criadores y jueces expertos que acompaña a esta serie de artículos.
Cuando Jesús Esquiva Torrecillas me envió un artículo de su autoría sobre el Satiné, me planteé lo que antes nunca hice. Si bien estoy convencido (como otros muchos criadores y técnicos expertos en exóticos y fauna europea) de la existencia de las series alélicas de transmisión autosómica y heterosómica tanto en los estríldidos (Diamante mandarín, Isabela del Japón, Padda, Diamante babero, Diamante de cola larga, Pico de plata, Pico de plomo, etc), como en fringílidos (Jilguero, Verderón común, etc), nunca me había planteado, quizás por no ser canaricultor, la existencia de dichas series alélicas para el alelo Satiné del canario, a pesar de la sintenia o complementación alélica demostrada mediante la hibridación entre dichos fringílidos y el canario para el mencionado mutante. Paradójicamente, sí he estado al corriente de la codominancia de los factores Opal y Ónix, y Faeo y Topacio, esta vez en dichas series alélicas de tipo autosómico, por haber tenido conocimiento cercano de pruebas de correspondencia de dicho factores mediante hibridación del Carpodaco mejicano con el Canario. Puesto manos a la obra, al buscar en revistas, libros e internet sobre el tema para recopilar datos y citar publicaciones al respecto, hallo en la web de un criadero de canarios (Aviario LHMAN), un artículo de Rafael Cuevas Martínez en el que describe casi al milímetro mi opinión respecto al Satiné. Contacto con el autor para que me indique la fecha de publicación del mismo (La mutación Satiné, revista Pájaros año 2000) en el que ya apunta su convencimiento de la existencia de una serie alélica basado en las investigaciones y publicaciones de Pomadère, Filleul y Kop. Me alegró haber llegado, aunque 17 años más tarde, a la misma conclusión que el Sr. Cuevas y los autores que cita, y así se lo hice saber.
Introducción a los conceptos Por alelomorfía o serie alelomórfica podemos definir el conjunto de formas alélicas o variantes en la expresión de un gen situadas en el mismo lugar (locus) de un cromosoma. Dichas formas de ese gen o alelos determinan las proteínas implicadas en la expresión de los caracteres somáticos, siendo dichas formas de expresión distintas según sea la proteína que actúe y que venga determinada por la variante de cada gen que rige sobre ella. Las distintas formas de expresión de un gen (alelos) están íntimamente relacionadas por “mapear” (esto es por actuar en determinada región del cromosoma) en la misma posición. Se establecen unas relaciones de dominancia y recesividad lineal entre dichas variantes génicas o alelos, dominando en el caso de la serie de reducción melánica en el plumaje del canario el alelo que determina el fenotipo ancestral al resto de formas alélicas de dicha serie, en un orden establecido por la mayor o menor capacidad de expresión o inhibición de los distintos pigmentos melánicos del plumaje (eumelanina negra, eumelanina marrón y faeomelanina). Se representa como sigue: Negro-Bruno > Ágata > Satiné.
Las series alélicas y los alelomorfos que las integran se dan tanto en los autosomas (cromosomas de transmisión autosómica o libre) como en los heterosomas (cromosomas de transmisión heterosómica o ligada al sexo). El caso que nos ocupa presenta un tipo de herencia heterosómica o ligada al sexo, y recesiva respecto a la totalidad de alelos integrantes de su serie alélica, llamados alelomorfos. Éstos son la forma génica o alelo que rige sobre la proteína que permite la expresión máxima de los pigmentos oxidados (Negro-bruno en jerga canaricultora), la expresión parcialmente reducida de dichos pigmentos (Ágata), y la expresión fuertemente reducida de dichos pigmentos (Sátine).
El Satiné desde fuera de la canaricultura Una vez demostrada la existencia de series alélicas tanto en los fringílidos europeos como en los estríldidos, y la sintenia o correspondencia alélica entre el canario y las especies de su familia, sólo queda extrapolarla a su natural y segura presencia en el genoma del canario, basándome en dos hechos que creo incontrovertibles:
1º El crossing over o entrecruzamiento sólo opera para llevar el Satiné de la serie de polimerización melánica completa (lo que llamamos melanina negra-bruna) a la serie de polimerización melánica incompleta (lo que llamamos melanina bruna) y ambas expresiones de melanina oxidada dominan al alelo Satiné, impidiendo su expresión a menos que éste se presente en homocigosis. Esta homocigosis determina que tengamos canarios Satiné oxidados (los de la serie bruna) y válidos para concurso por la expresión en su fenotipo de la eumelanina bruna, y los Satiné diluidos (los de la serie negra) no estandarizados para concurso y selección en esta especie, los cuales carecen de eumelanina negra visible, asemejándose a ejemplares lipocrómicos.
2º Debido a que en las series alélicas no se expresa ningún alelo recesivo de dicha serie si está en heterocigosis, esto hace imposible que puedan existir ni el Negro-bruno Satiné, ni el Bruno Satiné, ni el Ágata Satiné ni tan siquiera el Isabel Satiné, porque dichos teóricos fenotipos son inexpresables por inexistentes, ya que sería como afirmar una cosa y la contraria (por ejemplo, un Negroágata o un Bruno-isabel). En el argot o jerga de los criadores de exóticos nadie afirma poseer o define a un Diamante mandarín Ino (Satiné) como Mandarín Isabela Satiné, o lo que sería más correcto dentro de la incorrección que sirve como ejemplo, un Mandarín Bruno Dorso claro Ino, en correspondencia al supuesto Isabel Satiné del canario (Oxidación melánica con polimerización incompleta + Reducción + Superreducción), o sea, una quimera conceptual. A lo sumo, especificarán los cultivadores del popular exótico australiano, que su Mandarín Ino (Satiné) pertenece a la serie de polimerización melánica completa (Gris, por denominar ellos así al Negro-bruno) o a la serie de oxidación con polimerización melánica incompleta (Bruna), para diferenciar si es de base Negra-bruna (Satiné diluido por el efecto de éste sobre las eumelaninas negras), o de base Bruna (Satiné) oxidado por el efecto del Satiné sobre la eumelanina bruna.
En otros estríldidos, como la Isabela del Japón, el Pico de plata, el Diamante babero y el Diamante de cola larga, al Satiné se le denomina Crema-ino, y ocupa, como ocurre con el Satiné del canario, la última posición en cuanto a dominancia y recesividad en la serie alélica de la que en algunos casos como el de la Isabela del Japón, el Diamante babero y el Diamante de cola larga es el único representante conocido de dicha serie, o como ocurre en el Pico de plata, el Pico de plomo y en el Diamante Mandarín, donde existen otros alelos interpuestos en su serie entre el Satiné y el Negro-bruno o ancestral que le dominan: - Ágata en el Pico de plata y en el Pico de Plomo. - Dorso claro, Eumax-Seifert, Masqué inglés o de ojos negros y Masqué continental o de ojos rojos, en el caso del Diamante Mandarín.
También se conocen formas alélicas que han antecedido a la aún pendiente aparición del Satiné en otras especies de estríldidos: - Ágata en el Padda y en el Diamante Modesto (aunque en este último hay quien lo define como similar al Masqué) y que mediante el test de complementación o sintenia por hibridación se han demostrado alélicos del Satiné de otros estríldidos.
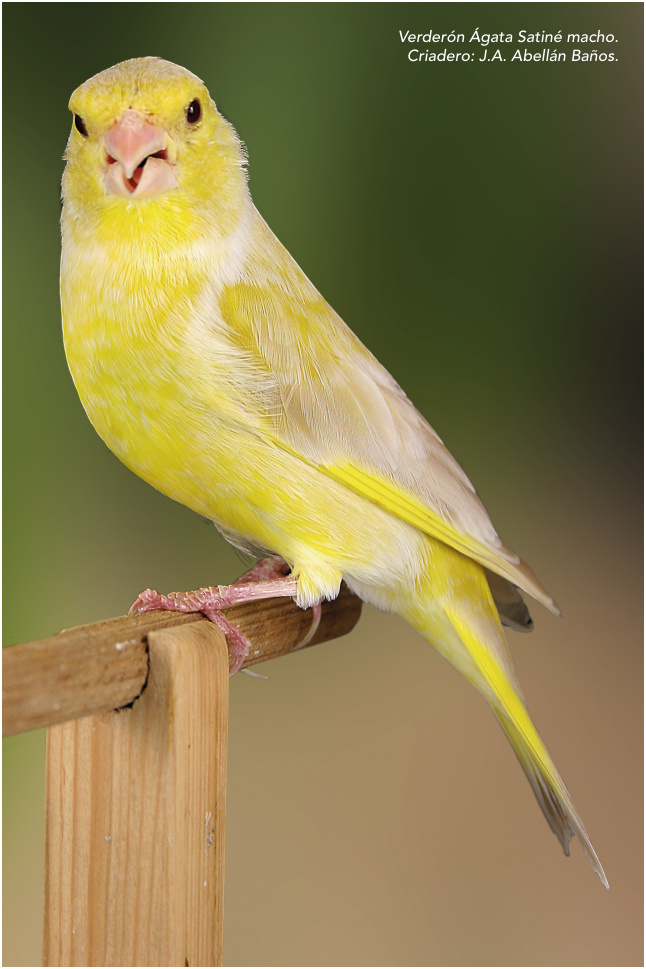
En el caso de los criadores de Fauna europea ocurre el mismo caso en cuanto a la denominación. Al jilguero y al verderón Satiné diluido (de base melánica oxidada con polimerización completa) le denominan Lutino, sin más, y nunca veremos escrito u oiremos “Ágata Ino”, pues dicho término es una negación sobre sí mismo. Al Jilguero o al Verderón Satiné de base melánica oxidada con polimerización incompleta, es decir, Bruna, tampoco le denominan Isabela Satiné, si no que emplean el término Satiné sin ningún tipo de añadidura. También han aparecido, como en los estríldidos, formas alélicas intermedias entre el Ágata y el Satiné que dominan a este último:
- Aminet (ex Ágata-eumo) del Jilguero - Ámbar del Verderón (ex Topacio).
Algunos resultados parecen cuestionar que el mutante del verderón denominado “Mascherato” en italiano (ex pastel belga) sea integrante de la misma serie alélica del Satiné, -bajo mi punto de vista quizás debido a que ambas denominaciones se refieran a genotipos de dos mutaciones distintas pero con un fenotipo casi indistinguible, y que el antiguamente denominado Pastel belga sea un tipo de pastel ligado al sexo, ya sea sólo o en combinación con el Ágata, que nada tenga que ver con la serie alélica que incluye al Ágata y al Satiné. Referente a la aparente indisolubilidad del “matrimonio” entre el Satiné y el factor de reducción melánica representado por el Ágata y el Isabel (según sea en la serie melánica en que se exprese), he de hacer notar que al producirse la dominancia sobre el Satiné de toda esa pléyade de alelomorfos intermedios situados entre el Ágata o Isabel y el Satiné, quedaría desautorizada la teoría que lo liga eternamente a la reducción representada por los genes con los que se supone no compartía locus pero que, por extrañas fuerzas de la naturaleza, siempre lo acompañaban en su imposible expresión conjunta como afirmé más arriba. Así mismo, la citada supuesta expresión forzosa y conjunta con la reducción del Satiné, no parece haber impedido que apareciera dicho Satiné sin la anterior aparición del Ágata, pues como se afirma desde antaño, el Satiné diluido (base de melanina oxidada, barrida por su acción), llamado Lutino en el Verderón, apareció antes que el Ágata en domesticidad y supuestamente apareció el Ágata en cautiverio tras un “afortunado” entrecruzamiento o crossing over. Lo mismo se ha demostrado empíricamente (por la experiencia) en especies en que el Satiné ha antecedido al Ágata en su aparición y conocimiento para los aficionados, así como a otros alelos intermedios entre éste y aquel, como ya he mencionado ha ocurrido en la Isabela del Japón, el Pico de Plata, el Diamante babero y el Diamante de cola larga. En último lugar ha aparecido en la serie alélica del Diamante Mandarín, precediéndole al menos tres alelos intermedios hasta llegar al Dorso claro, que ejerce el status fenotípico de Ágata, y que nos quedaremos sin saber si se complementa con el Ágata del canario debido a las barreras etológicas y genéticas existentes para una más que improbable hibridación. Abundando en la idea de que no existe esa ligazón con el primer factor de reducción en su necesaria expresión, podemos encontrar ejemplos de apariciones de formas alélicas intermedias anterior y posteriormente, todas ellas recesivas ante el fenotipo ancestral y el primer factor de reducción (Ágata) y dominantes sobre el Satiné, que ocupa el último puesto de la serie. Si para expresarse el Satiné hubiera necesitado de su unión con el primer factor de reducción (Ágata), esto se contradice con el hecho de poder obtener ejemplares Satiné a partir de emparejamientos de ejemplares de dicho fenotipo con ejemplares que expresan el fenotipo de otros alelos más reducidos que el Ágata: -Jilguero Aminet / Satiné x jilguera Satiné.
-Verderón Ámbar/ Satiné x verderona Satiné.
-Diamante Mandarín Masqué de tipo continental u ojos rojos / Ino x Diamante Mandarín Ino.
Conclusiones • Nada parece impedir que se den (de hecho se dan y existen) las series alélicas heterosómicas en el canario, tal y como se han dado no sólo en los estríldidos, si no en sus más cercanos parientes fringílidos europeos (Jilguero, Verderón…). • En toda serie alélica (de tipo heterosómico) se establecen relaciones de dominancia y recesividad entre los alelos integrantes de dicha serie y en ningún caso se produce una expresión fenotípica conjunta de dos de dichos alelos, siendo imposible esta doble expresión No existen machos Satinés portadores de Ágata y sí Agatas portadores de Satiné, ya que uno de los alelos necesariamente dominará al otro y la forma alélica dominada, esto es recesiva, quedará oculta en el genotipo, pudiéndose sólo intuir por el “efecto portador” que se produce en los machos heterocigóticos, como ocurre en los canarios, jilgueros y verderones machos Ágatas portadores de Satiné. • No se puede determinar un orden cronológico fijo en la aparición de formas alélicas integrantes de las series alélicas, ni deducir su aparición por entrecruzamiento (crossing over), pues en algunas especies el Satiné aparece antes que el Ágata, o aparecen antes una serie de alelos intermedios entre el Ágata y el Satiné. Además, es imposible verificar la frecuencia de aparición tanto en domesticidad como en el medio natural, pues en el primero de los casos puede pasar desapercibido determinado alelomorfo por la no supervivencia de los ejemplares con dicho genotipo y su correspondiente fenotipo, o por no saber identificarlos, y en el medio natural es aún más difícil controlar y encontrar dichas apariciones, con el añadido de la selección natural que impone el medio de la mano de los predadores y demás condicionantes. • El denominado Bruno Satiné del canario puede ser una forma extrema de selección de dicho mutante sobre ejemplares con abundante eumelanina marrón de base sobre la que el Satiné pierde poder de penetrancia por encontrar mucha resistencia a su acción, dada la alta concentración de eumelaninas marrones. Éste hecho se ve apoyado por el trabajo de los aficionados italianos para modificar el efecto del Satiné con sus barras estrechas e interrumpidas, haciéndolas anchas y continuas, como si de un ejemplar Bruno se tratase. No es el único factor de reducción melánica en canaricultura que por selección desemboca en fenotipos muy alejados de su mutante original (ver el caso de los canarios brunos de línea azul o sin faeomelanina envolvente). • Como ya se ha publicado con anterioridad, puede que nos encontremos ante una nueva forma alélica integrante de la misma serie: Ancestral, Ágata y Satiné, posicionada entre el primer factor de reducción (o sea, el Ágata) y el Satiné, y que ejerce una menor super reducción sobre las eumelaninas marrones de los ejemplares integrantes de la serie Bruna.
Bibliografía Crovace, Diego. El Canario Bruno Satiné. Ornitología Práctica nº 65. Cromapress s.a. Cuevas Martínez, Rafael. Avicultura menor. Canarios lipocrómicos y melánicos. 1ª Edición. Ediciones Marzo 80. Manuel Company editores. Barcelona. 1987 Cuevas Martínez, Rafael. La mutación Satiné. Pájaros nº 43. FOCDE. 2000. Delille, Alain. Darrigues, Michel. Canarios de color. Los satinados. Ornitofilia. Año VII. nº1. Enero- Febrero 1974. García Rozas, J. Manuel. Experiencias con el Satiné. Nuestros Pájaros nº 27. COE. 2015 Gimeno Pelegrí, Honorio. La magia del color. H. G. Ediciones. Junio 2001. Gimeno Pelegrí, Honorio. La magia del indígena. H. G. Ediciones. Junio 2011. 2ª Edición. Natale, Masimo. Pidalà, Leone Giuliano. Las mutaciones del Jilguero. Cromapress s.a. Godella. 2007. Rodríguez Barbero, Ángel Luis. Sintenia y series alélicas. Nuestros Pájaros nº 4. COE 2009. Rodríguez Benavente, José Manuel. La serie alelomorfa del primer factor de reducción melánica y el Canario Bruno Satiné. Ornitología Práctica nº 71. Cromapress s.a. Rodríguez Nadales, Ricardo. El Canario Bruno Satiné. La ilusión de un criador. Nuestros Pájaros nº 21. COE 2013, y Ornitología Práctica nº 65. Cromapress s.a.
Créditos fotográficos conservados en el artículo.