La coloración amarilla anaranjada o roja en la pluma, piel o picos de los pájaros se producen principalmente por el depósito de pigmentos que conocemos como carotenoides. La coloración que producen estos pigmentos ha sido ampliamente estudiada por sus efectos en el comportamiento, evolución y fisiología ya que interviene con un papel principal en el apareamiento de muchas especies. Además, frecuentemente es un indicador de la calidad individual y puede servir de indicador de la identidad de cada especie. Los pájaros son incapaces de sintetizar carotenoides y deben incorporarlos en la dieta, lo que supone un vínculo esencial entre la coloración y el ambiente. Sin embargo, queda mucho por averiguar sobre el papel que juega la coloración en base a estos carotenos.
Para poder asumir los carotenos se requieren 4 etapas o procesos fisiológicos: la asimilación de los mismos en el intestino, el transporte por el sistema circulatorio y linfático, su transformación o metabolismo (ya sea en el lugar donde se depositen o en el hígado) y el depósito final en la epidermis.
En un artículo anterior [1], hemos repasado otros avances de cómo unos carotenos se metabolizan en otros. Concretamente dos estudios realizados independientemente concluyeron que un gen (CYP2J19) es clave para transformar los carotenos amarillos en ketocarotenos rojos que algunas especies depositan en sus plumas o partes corneas. Adicionalmente otros estudios con gallinas o con otras paseriformes han caracterizado genes (el que codifica para la enzima BCO2 del inglés betacarotene dioxygenase) responsables de la decoloración de las patas o plumas. En resumen digamos que se están aportando recientemente datos moleculares del metabolismo (transformación) que sufren los pigmentos en las aves.
Además se está progresando también en el entendimiento de los mecanismos por los cuales los carotenos son transportados en sangre hasta los tejidos donde se depositarán finalmente. Se conoce que los carotenos se transportan en el sistema circulatorio y linfático, formando lipoproteínas. Nuevos experimentos están demostrando el papel de estas lipoproteínas transportadoras (ejemplo ABCA1 en pollos) en el transporte y la coloración.
Pero los que os quiero contar aquí son experimentos realizados con el canario (Serinus canaria) que atrae a investigadores por sus numerosas y diferentes libreas para conocer, en este caso, algo más sobre la expresión de la coloración basada en carotenos [2-3].
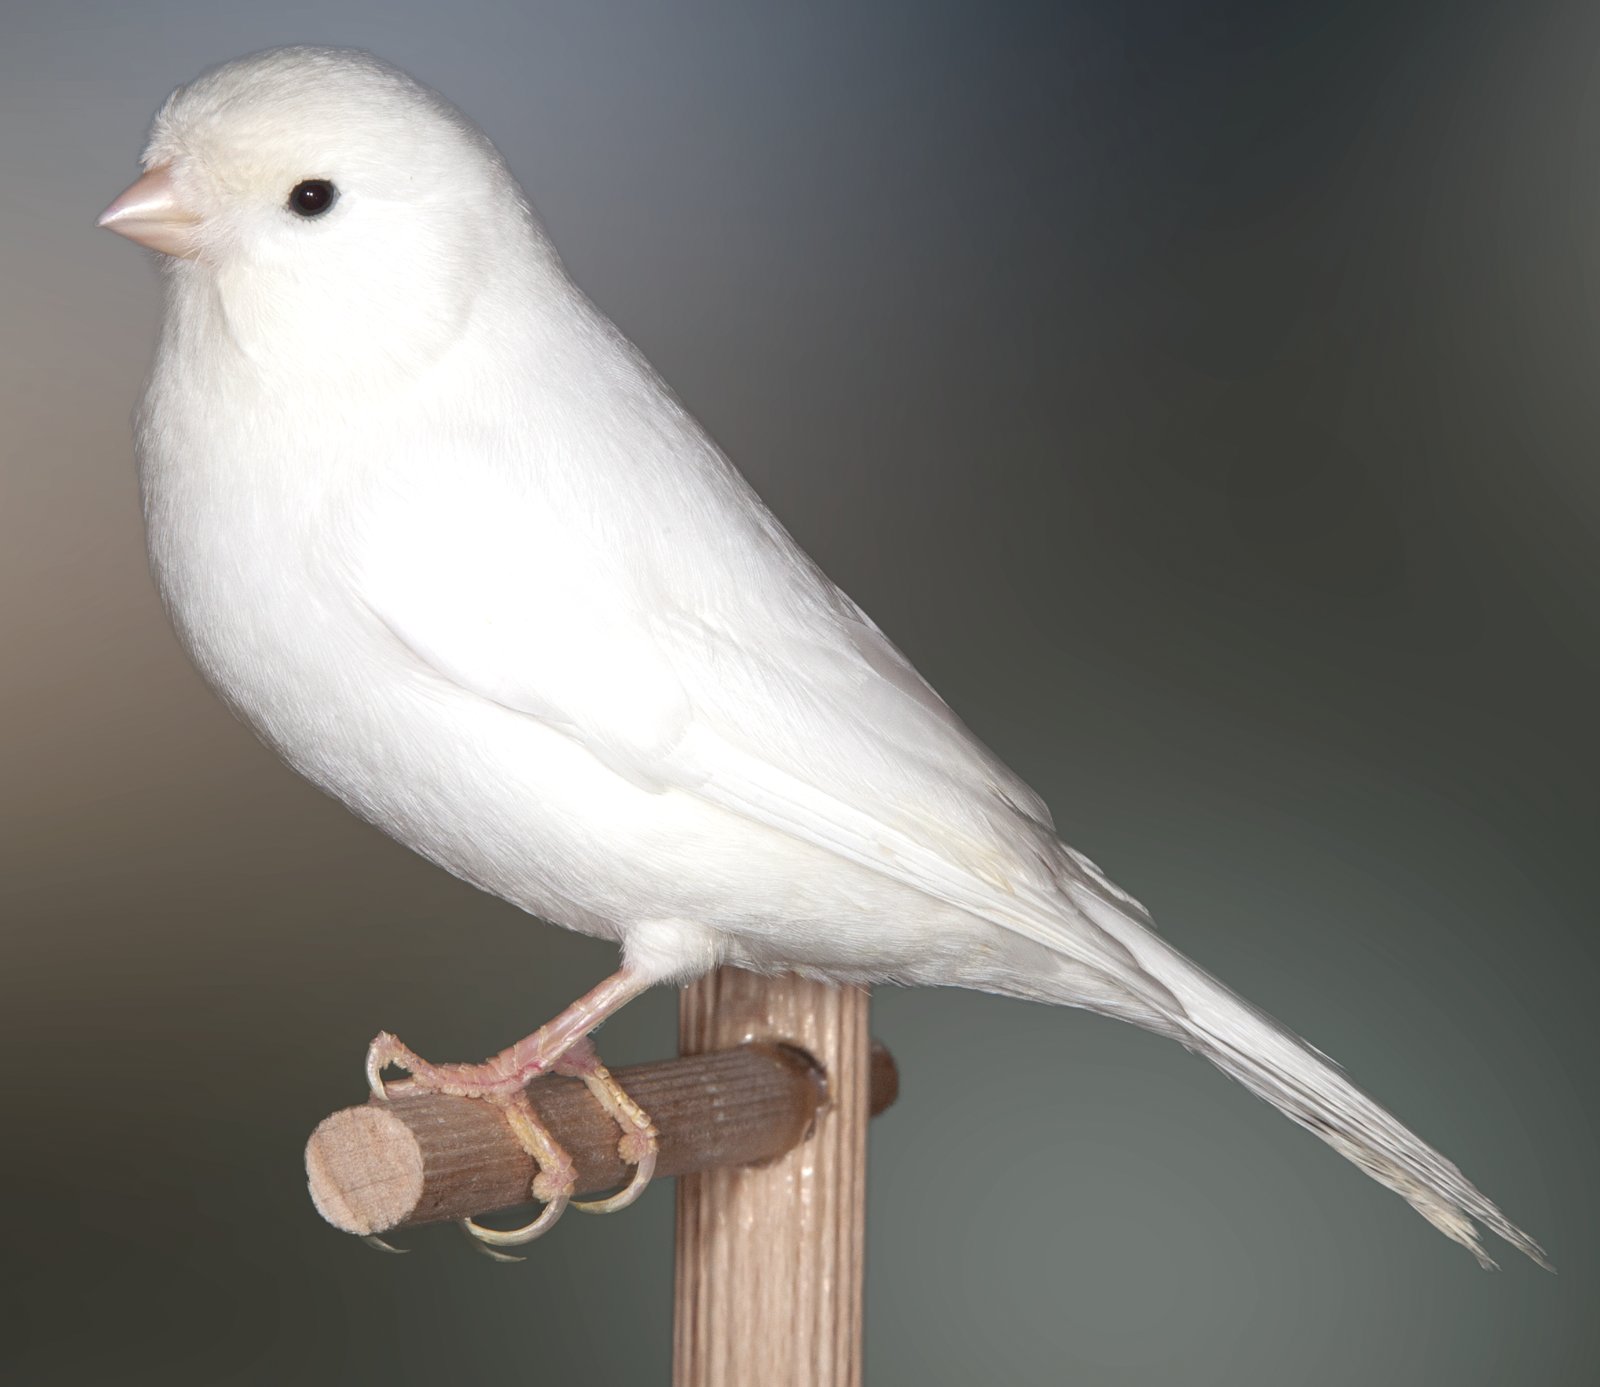
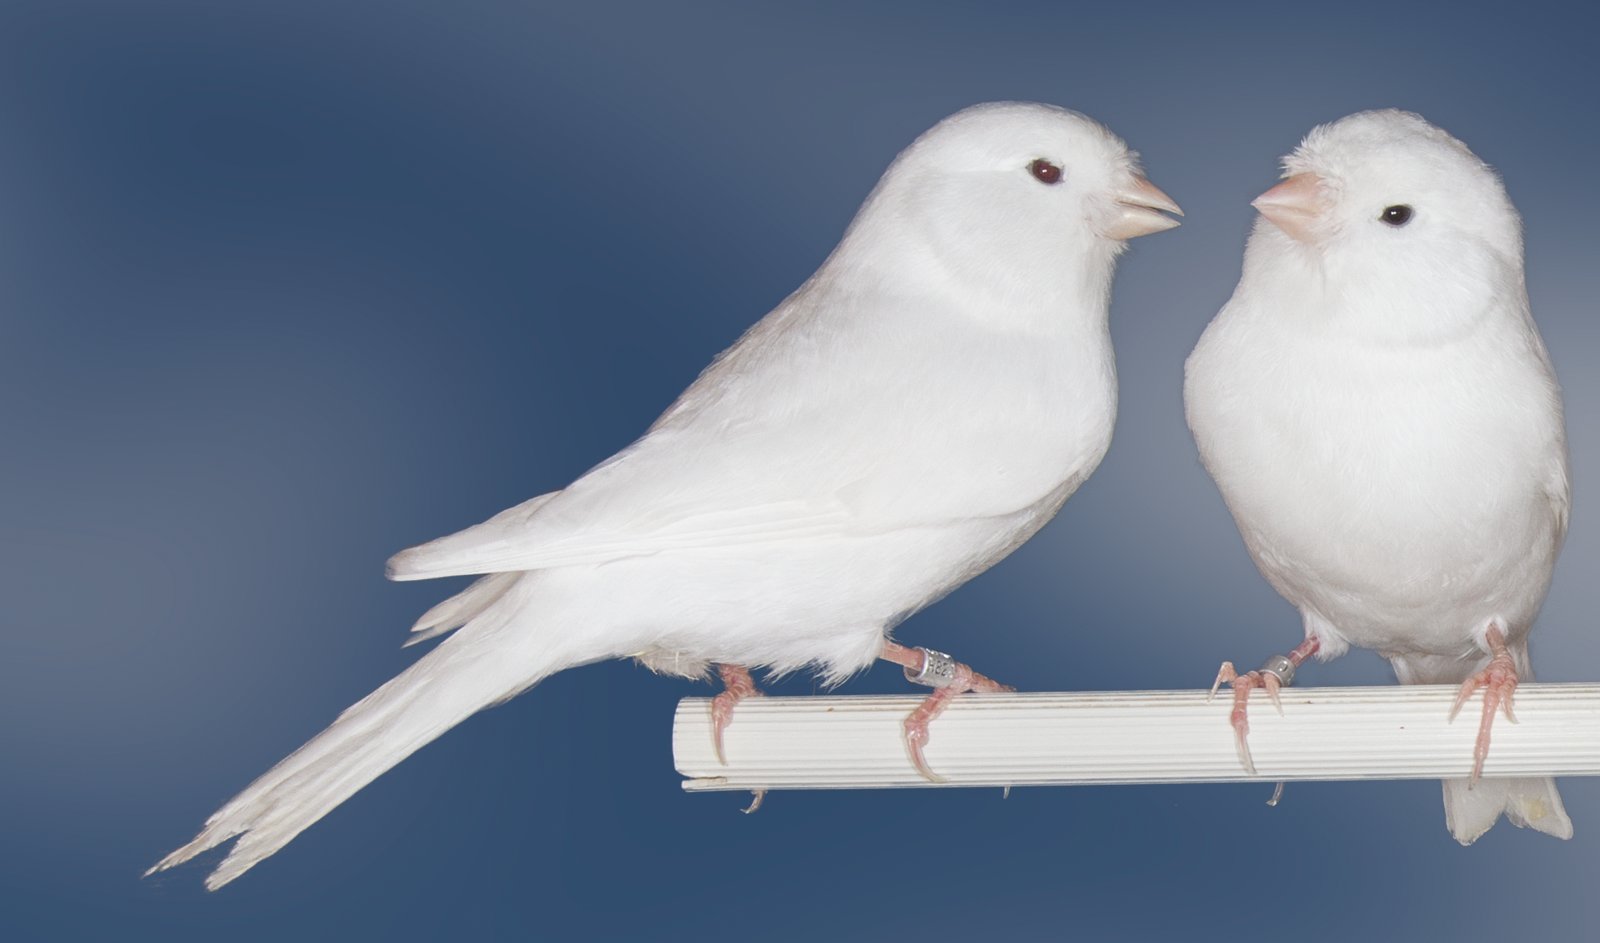
No es novedad que el canario silvestre y la mayoría de sus variedades digamos domésticas tienen plumas con pigmentos amarillos o incluso rojos en las conseguidas después de la hibridación con el cardenalito de Venezuela. Pero vamos a enfocar la cuestión en una de estas variedades, el blanco recesivo.
Dejando a un lado las melaninas, toda la bibliografía consultada coincide en que el blanco recesivo es genéticamente un pájaro mutado, una mutación autosómica recesiva que trae además una deficiencia congénita de vitamina A. Sin embargo, la bibliografía no se pone de acuerdo en como ocurre esto. Diego Crovace expone en un artículo de esta misma revista [4] que la mutación impide que los carotenos que el canario ingiere en la dieta se transformen en xantofilas (amarillos) o cataxantina (rojo). Por su parte, Antonio José Rodríguez Pérez reproduce en su artículo [5] que la hipótesis más extendida por entonces es que los canarios blancos recesivos poseen una reducida absorción de los carotenos a nivel intestinal. Rafael Cuevas, en una de las obras más completas que existen sobre canaricultura de color [6], afina que los canarios blancos son incapaces de absorber pigmentos rojos o amarillos y de depositarlos en su piel por la ausencia de enzimas necesarias para la fijación. La realidad es que se desconocía el mecanismo molecular (gen) implicado en esa mutación.
Por tanto el blanco recesivo supone una oportunidad para conocer algo más sobre cómo se asimilan los carotenos y acaban formando parte de las libreas de las aves.
Ha sido en 2017, más de 100 años después de que la mutación apareciese, cuando científicos de varias universidades y centros de investigación de varios países (Oporto y Coimbra en Portugal y San Luis en EEUU) han trabajado con el blanco recesivo para aportar más conocimientos.
Los trabajos publicados [7] en la prestigiosa revista americana PNAs (del inglés Proceedings of the National Academy of Sciences) coinciden con otros anteriores en que no hay carotenos o si los hay están a muy baja concentración en los tejidos del canario blanco recesivo. Se analizaron varias muestras de las plumas, piel, hígado, retina, lugares con alta concentración en ejemplares no mutados. No se pudieron detectar carotenos en plumas de ningún blanco recesivo. Tampoco en la piel donde bien no se detectaban o si se detectaban eran trazas de hasta 100 veces menos cantidad que en individuos no mutados. En el hígado de canarios blancos recesivos o de canarios amarillos se pudieron detectar pequeñas cantidades de carotenos, principalmente luteína, eso sí, significativamente menos concentradas en blancos. No se detectó carotenos en la retina de los blancos recesivos a pesar que están en grandes cantidades en las retinas de por ejemplo canarios lipocromos amarillos. En definitiva, los niveles de carotenoides en los blancos recesivos estaban reducidos al mínimo en la mayoría de los tejidos analizados.
Aunque surgió casi a la vez en Nueva Zelanda e Inglaterra, por su forma de transmisión se espera que se trate de un único gen y alelo recesivo. Esto es que todos los blancos conservan la misma mutación en el mismo gen. Los investigadores secuenciaron el genoma completo de canarios blanco recesivo y analizaron únicamente los autosomas (cromosomas no sexuales) y buscaron regiones del genoma donde existían más diferencias entre canarios blancos recesivos y el resto de variedades. Además analizaron los genomas de canarios amarillos portadores de blanco recesivo para confirmar las zonas en heterocigosis en ellos. Cruzando toda esta información llegaron a la identificación de una zona en el genoma que contenía el gen SCARB1 e incluso la mutación concreta que causaba el fenotipo del blanco recesivo.
La mutación hace que se generen versiones aberrantes de la proteína que no funcionan correctamente y se ha podido detectar su expresión en el intestino delgado, hígado, retina y piel de los blancos recesivos. Se trata de una proteína localizada en las membranas de las células y que en su forma mutada es incapaz de reconocer a las lipoproteínas y por tanto se podría concluir que afecta a la incorporación de los carotenos a los tejidos.
SCARB1 se caracterizó por primera vez en humanos como un receptor de lipoproteínas de alta densidad (HDL) que media en la asimilación del colesterol, y que posteriormente se concluyó que además intervenía en la asimilación de una gran variedad de lípidos como fosfolípidos, vitaminas A y D, etc… La proteína SCARB1 es un mediador importante de los niveles de colesterol y las mutaciones en esta proteína están asociadas con el desarrollo acelerado de la enfermedad de las arterias coronarias.
Estos hallazgos sugieren un vínculo entre la coloración del plumaje y el metabolismo de las grasas (lípidos). SCARB1 también puede jugar un papel central en la reproducción de las aves. La formación del huevo implica una movilización masiva de colesterol y otros lípidos, incluidos los carotenoides, el cuerpo de la hembra al huevo. Estos recursos serán esenciales para el crecimiento y desarrollo del embrión [8]. Luego, el papel global de la proteína SCARB1 en la fisiología de los carotenos y lípidos potencialmente vincula la expresión en el color en base a carotenos con el estado del individuo, la fisiología de los lípidos y la fecundidad.
Por tanto se abren nuevas hipótesis en torno al papel de esta proteína y tendremos que esperar nuevos resultados.
Bibliografía [1] Francisco Manuel Reyes Sosa (2018). Nuevos avances científicos en la genética del factor rojo. Ornitología Practica nº 88. [2] Walker GBR, Avon D (1993). Coloured, Type, and Song Canaries: A Complete Guide (Sterling, New York). [3] Birkhead T (2003). A Brand New Bird: How Two Amateur Scientists Created The First Genetically Engineered Animal (Basic Books, New York). [4] Diego Crovace (2012). Enjuiciamiento del canario blanco recesivo. Ornitología Práctica nº54. [5] Antonio Jose Rodríguez Pérez (2006) Los canarios blancos recesivos y la vitamina A. Ornitología Practica nº19. [6] Rafael Cuevas Martínez (2010) Los canarios lipocrómicos y melánicos. Editorial Hispano Europea. [7] Matthew B. Toomey, Ricardo J. Lopes, Pedro M. Araújo, James D. Johnson, Malgorzata A. Gazda, Sandra Afonso, Paulo G. Mota, Rebecca E. Koch, Geoffrey E. Hill, Joseph C. Corbo y Miguel Carneiro (2017) High-density lipoprotein receptor SCARB1 is required for carotenoid coloration in birds. Proc Natl Acad Sci USA. [8] Surai PF (2002) Natural Antioxidants in Avian Nutrition and Reproduction (Nottingham Univ Press, Nottingham, UK).

Texto: Francisco Manuel Reyes Sosa. Criadero: Pedro Silvente. Fotos: Javier Mas.


