
Introducción El sistema de determinación del sexo en las aves es distinto al de los mamíferos, en cuanto a nomenclatura de los cromosomas sexuales y el sexo homogamético que, en este caso, corresponde al macho. Sin embargo, aún existen criadores e incluso algunos jueces que por desconocimiento o inercia siguen llamando X e Y a los cromosomas de las aves y utilizan impropiamente dicha nomenclatura. En este artículo técnico se expresará la extraordinaria importancia de los cromosomas sexuales para la determinación del sexo, el color de las aves y el dicromatismo sexual. Pensemos en el canario de color, donde son numerosos los genes responsables de la pigmentación cuyo locus se sitúa en el segmento diferencial o no apareante del cromosoma sexual Z.
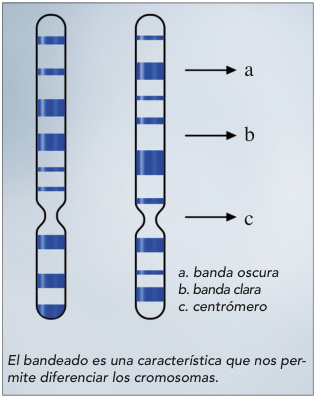
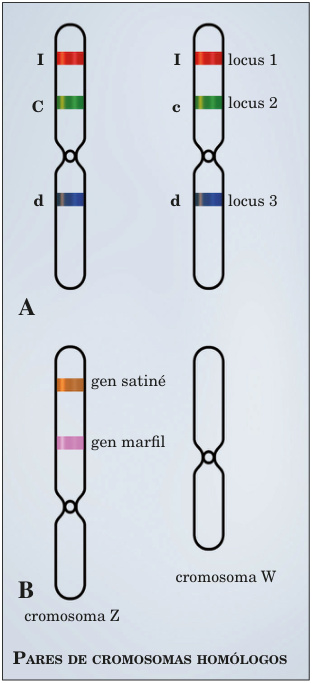
Tipos y número de cromosomas en las aves Los cromosomas de los seres vivos los podemos clasificar atendiendo a un criterio de tamaño en macrocromosomas y microcromosomas; además, según su función los clasificamos en autosomas y cromosomas sexuales. El número de cromosomas es muy variable según las especies, así por ejemplo tenemos en el periquito 58 y en el pato mandarín 90. El canario cuenta con un total 80 cromosomas, de los cuales 78 corresponden a autosomas y dos a cromosomas sexuales o también llamados heterocromosomas (ZZ o ZW). De los 78 autosomas, 62 corresponden a microcromosomas. Los microcromosomas son mucho más pequeños y numerosos que los macrocromosomas. No sabemos si los microcromosomas surgieron al aparecer las aves; o bien, ya estaban presentes en sus antecesores reptilianos. Los cromosomas Z y W presentan diferencias, entre sí y con relación al resto de cromosomas (autosomas), en cuanto a la forma, tamaño, bandeado y genes presentes. El cromosoma Z es compartido por ambos sexos, no así el W que es exclusivo de las hembras de las aves. El bandeado típico de cada cromosoma corresponde a zonas más o menos condensadas de cromatina (heterocromatina y eucromatina, respectivamente), y las podemos comparar a una especie de “código de barras”, que permite la correcta identificación de cada tipo de cromosoma.. Los cromosomas están dispuestos en pares de cromosomas homólogos, 40 en el caso del canario, de los que 39 pares corresponden a autosomas y un par a cromosomas sexuales. Hay nueve pares de macrocromosomas y treinta y un pares de microcromosomas. El cromosoma W en las aves es el único que no tiene copia idéntica. Es decir, es la única pareja heteromorfa de cromosomas homólogos. Se piensa que hace millones de años ambos cromosomas eran idénticos. En los gametos siempre existirá –salvo mutación– la mitad de cromosomas al formarse mediante meiosis y, por ello, presentar un número haploide (n), a diferencia de las células somáticas que son diploides (2n).
Composición química de los cromosomas La función de los cromosomas es portar y transmitir la información o mensaje genético a las células hijas; constituyen el material genético y para ello están formados químicamente por ADN y proteínas (histonas, principalmente). Podemos diferenciar ADN codificante y no codificante. El ADN codificante está constituido por todos aquellos genes que se transcriben y traducen, dando lugar a diferentes proteínas responsables de los caracteres hereditarios. Es el menos abundante en relación al ADN no codificante o repetitivo, mal llamado “ADN basura”, que no se expresa en proteínas y presenta funciones reguladoras de la acción de otros genes que permiten que dichos genes se activen o no. La cromatina, al igual que los cromosomas, está formada por ADN y proteínas, lo que varía es el grado de condensación o espirilizacíón, ya que los cromosomas representan el grado máximo de espirilizacíón del material genético, lo que permite su visualización. La cromatina se observa durante la interfase y los cromosomas durante la división celular (mitosis o meiosis)
Determinación del sexo en las aves En las aves y otros grupos de seres vivos como algunos insectos (mariposas), peces y crustáceos, el sistema de determinación del sexo es: ZZ y ZW. El macho es ZZ y la hembra ZW. El macho es el llamado sexo homogamético, porque todos los espermatozoides tienen el cromosoma sexual Z, a diferencia de la hembra que corresponde al sexo heterogamético, ya que produce dos tipos de óvulos, unos con el cromosoma Z y otros con el W. Por tanto, y a diferencia de los mamíferos, es la hembra de las aves la responsable de la determinación del sexo de la descendencia, pues un óvulo con el cromosoma Z dará lugar a un macho ZZ, y, por contrario, si el óvulo presenta el cromosoma W producirá una hembra. Según recientes estudios, realmente el responsable del sexo en las aves, sería el gen DMRT1, situado en el cromosoma Z. En los individuos con dos cromosomas sexuales (ZZ), al expresarse dicho gen en doble dosis da lugar al sexo masculino. En las aves monomórficas (sin dimorfismo sexual); o sea, sin diferencias, anatómicas, biométricas o cromáticas entre ambos sexos, la existencia de un gen específico en el cromosoma W (exclusivo de las hembras), permite utilizar un método de sexado fundamentado en su presencia, por medio de la llamada Reacción en Cadena de la Polimerasa (PCR). El cromosoma W produce un bandeado típico en los análisis mediante la técnica de electroforesis que permite su identificación.
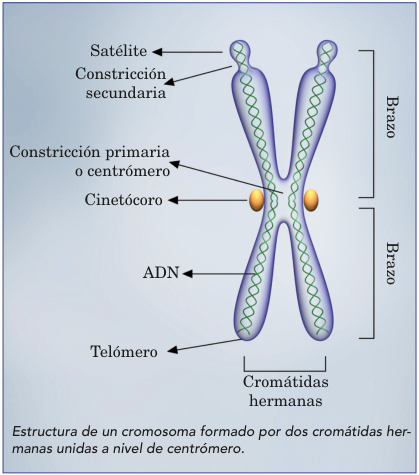
Características de los cromosomas sexuales en las aves El descubrimiento del cromosoma sexual W se produjo en 1961 por J. Frederic. La mejora y desarrollo de las técnicas de tinción de orgánulos celulares y la utilización del microscopio electrónico mejoró considerablemente el conocimiento de los cromosomas sexuales. Al igual que el cromosoma X de los mamíferos, el cromosoma Z es de mayor tamaño y con un mayor número de genes con relación al cromosoma sexual Z. Los cromosomas W, por lo general, son heterocromáticos y ricos en ADN satélite (formado por secuencias de ADN que se repiten cientos o miles de veces), en relación al Z que presenta mayor riqueza en eucromatina. En el cromosoma W, el ADN codificante es muy inferior al no codificante, y también se caracteriza por sus secuencias de nucleótidos palindrómicas; es decir, se leen igual de izquierda a derecha como de derecha a izquierda. Veamos un ejemplo: AATCTAA, “Dábale arroz a la zorra el abad”, por utilizar un símil en nuestro idioma. Los cromosomas Z y W de las aves son metacéntricos; o sea, que la posición del centrómero o constricción primaria es central y determina dos brazos de igual longitud. Según algunos estudios, el cromosoma Z en relación a su tamaño es el cuarto de los cromosomas de las aves y el W es el séptimo. El cromosoma W es bastante más pequeño que el Z, dado que pierde heterocromatina durante el proceso de evolución de éste. La heterocromatina representa ADN que no se transcribe y traduce, de ahí que dicha pérdida de material genético no sea importante.
Ginandromorfismo El término ginandromorfo procede de gine = femenino y andros = masculino. Este fenotipo, descrito por primera vez por Crew en 1938, no es transmisible a la descendencia y es consecuencia de anormalidades en la separación de los cromosomas sexuales durante la embriogénesis. No es una mutación en el sentido estricto del término, al no ser transmisible a la descendencia. Un ejemplar ginandromorfo es un tipo de ejemplar half-sider que, presenta una mitad del cuerpo genéticamente de macho y la otra mitad de hembra, afectando a la coloración del plumaje. En las aves halfsider ginandromórficas se produce la supresión de un cromosoma Z en algunas células durante las divisiones celulares que ocurren durante el desarrollo embrionario, lo que da lugar también a la expresión de caracteres sexuales propios de una hembra. También son conocidos como mosaicos sexuales. Los ejemplares ginandromorfos, de canarios de color con diversos fenotipos, conocidos hasta el momento, afectan al carácter mosaico (dicromatismo) así como los citados en la literatura científica consultada, han resultado estériles. El hermafroditismo y ginandromorfismo son alteraciones genéticas diferentes, ya que en el hermafroditismo aparecen gónadas masculinas (testículos) y femeninas (ovario). En los sujetos ginandromorfos hay una variación fenotípica en una y otra mitad del cuerpo que muestra células con diferente constitución genética en relación a los cromosomas sexuales.

Origen de los cromosomas sexuales La primera cita sobre las diferencias que presentan los cromosomas sexuales en relación a los autosomas se deben a H. Henking. La génesis de los cromosomas sexuales de las aves y de mamíferos se produjo de forma separada; es decir, por líneas evolutivas distintas a partir de una pareja de cromosomas homólogos (autosomas), pese a sus diferencias observables actualmente. Esto lo demuestra el hecho de que el pool (cluster) génico del cromosoma X es distinto del que se presenta en el cromosoma Z.
Evolución de los cromosomas sexuales Los cromosomas sexuales son el resultado de un largo proceso de evolución durante millones de años. La evolución de los cromosomas sexuales comunes en aves y mamíferos (X y Z), aunque responsables de mecanismos diferentes de determinación sexual, se ha producido de forma convergente dando lugar a amplias similitudes entre ambos. En el cromosoma W (e Y de los mamíferos) se han producido numerosos cambios, a diferencia del Z, donde los cambios han sido de menor magnitud. Se considera que los cromosomas Z y W, en un principio, eran de idénticas características y se producía recombinación génica prácticamente a lo largo de todo su recorrido. Al evolucionar y aumentar la biodiversidad ornítica, se produjo una disminución del segmento apareante u homólogo y un aumento progresivo del segmento no apareante o diferencial, dado la existencia de genes específicos para la determinación del sexo en las aves, los cuales no deben sufrir un proceso de crossing-over entre los cromosomas Z y W. La porción no apareante presenta pocos genes y está, formada por heterocromatina, la cual se tiñe más intensamente. En primer lugar, se piensa que ocurrió la imposibilidad de intercambio génico (crossing-over) durante la meiosis entre algunos genes de los cromosomas Z y W; posteriores mutaciones entre ambos cromosomas, conducen a una mayor diferenciación y distanciamiento génico. Posteriormente, se produce la incorporación de nuevos genes y pérdida de genes no recombinantes en el cromosoma W dada su pérdida de funcionalidad, por lo que podemos hablar de un proceso de degeneración del cromosoma sexual W de las aves que condujo a un acortamiento paulatino de dicho cromosoma -debido a la progresiva ausencia de recombinación de algunos genes con el cromosoma Z- y se ha aumentado la secuencia de ADN no codificante (“ADN basura”), dando lugar a que un menor número de genes se expresan. Finalmente, no han ocurrido procesos de inactivación del cromosoma sexual Z, tal como veremos a continuación.
Inactivación del cromosoma Z En las aves no se produce la inactivación de uno de los dos cromosomas Z (equivalente al X de los mamíferos) completo, como ocurre en las hembras de los mamíferos, donde siempre se inactiva uno de los dos cromosomas X; la inactivación en las aves sólo se da a nivel de determinados genes, y por diferentes mecanismos. La diferencia en la expresión de los genotipos homocigóticos de los machos ZZ, en relación a las hembras ZW, se debe a que en los machos hay doble dosis de los productos (proteínas, enzimas) formados por la acción de los genes no inactivados -y por consiguiente operativos- y simple en las hembras. En las hembras de los mamíferos, por el contrario, sí se produce la compensación de dosis mediante el silenciamiento o inactivación del cromosoma sexual X. La ausencia inactivación o silenciamiento del cromosoma Z en las aves da lugar a que existan algunas diferencias entre el fenotipo de ejemplares homocigóticos y heterocigóticos en la herencia ligada al sexo, ocasionando que en los ejemplares puros, el producto final (pigmento, proteínas) aparezca en mayores dosis. Esto puede relacionarse con diferentes intensidades de expresión cromática y selección sexual entre las diferentes especies de aves.
Cromosomas en distintos grupos de aves Existe una extraordinaria diversidad entre las especies de aves en relación al grado de diferenciación entre los cromosomas Z y W y la composición de la región pseudoautosómica, (PARs), o dicho de otra manera, regiones apareantes de cromosoma Z y W donde se producen los fenómenos de recombinación génica. El análisis comparativo de las características de los cromosomas sexuales en diferentes grupos (taxones) de aves, demostró como el cromosoma W en las ratites (ñandú, kiwi, casuario, emú. etc.), es de mayor tamaño y con poca heterocromatina, a semejanza del Z, siendo este grupo de aves el que muestra actualmente una mayor semejanza entre los cromosomas sexuales. En las ratites -grupo de aves paleognatas (“mandíbulas antiguas”- se ha comprobado que ocurren intercambios de genes a lo largo de toda la longitud del cromosoma Z y W, lo que supone un menor grado de evolución de dicho cromosoma. En las aves actuales, las llamadas neognatas (“mandíbulas nuevas”), la diferencia entre estos dos cromosomas es máxima, así como el contenido de heterocromatina. Por el contrario, en el grupo de aves llamadas Tinamiformes (conocidas como tinamúes o inambúes, grupo donde se encuentran 47 especies) el cromosoma W aparece con características intermedias entre los grupos anteriores. La longitud del segmento recombinante en las aves más primitivas (paleognatas) es mayor, así como las diferencias morfológicas entre los cromosomas Z y W son menores en relación al grupo de aves más modernas, donde se ha producido un procesos de degeneración del cromosoma W y la porción apareante presenta pocos genes.
Alteraciones cromosómicas No se ha observado en las aves individuos ZWW ni ZO, siendo posible que se trate de mutaciones genómicas de carácter letal.
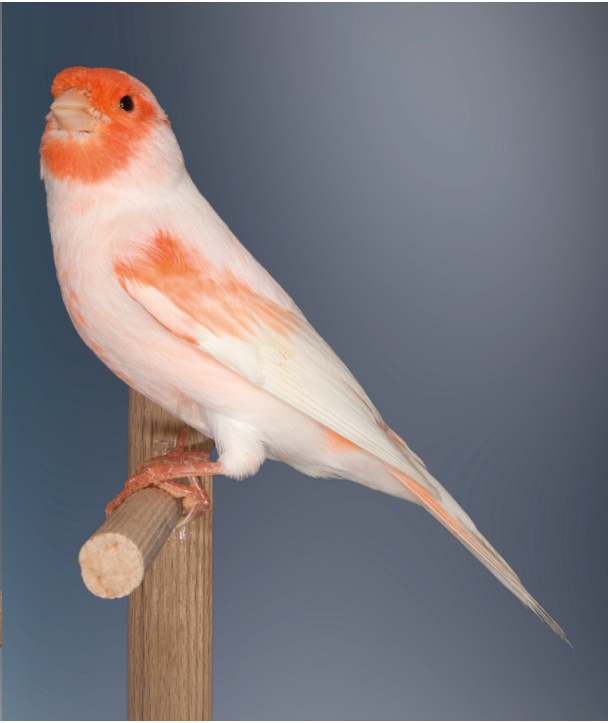
Cromosomas sexuales y canarios de color Los genes conocidos hasta la fecha ligados al sexo en el canario de color; es decir, situados sus locus en el segmento diferencial del cromosoma Z son responsables de los siguientes caracteres que afectan a la pigmentación: satiné, pastel, eumelanina negra, eumelanina marrón, dilución (ágata e isabela) y marfil. Todos estos genes están dispuestos alineadamente en el cromosoma; o sea, colocados uno a continuación de otro. Sin embargo, desconocemos su distancia génica medida en centimorgan o unidades de distancia génica, salvo en el caso de de los genes para la eumelanina marrón (bruno) y su alelo satiné, calculada de forma aún provisional en 46 centimorgan. El COV es el valor de cruzamiento y corresponde al 46%, según los cálculos del grupo de investigación genética Mutavi. La distancia génica se puede calcular a partir de la frecuencia de los fenotipos recombinantes, simples y dobles. Las hembras con relación a los genes ligados al sexo son hemicigóticas (mitad de dosis), al presentar un solo cromosoma Z, pues dichos genes sólo encuentran en una única dosis en su genotipo y los machos, pueden ser homocigotos o heterocigóticos (portadores de genes recesivos). El número de genes que porta el cromosoma W es muy inferior al Z, dado su menor tamaño y decimos que es un “desierto de genes”, al menos para los genes responsables de la pigmentación en el canario de color. En canaricultura de color, actualmente no conocemos ningún gen ligado al cromosoma W, pero si numerosos en el cromosoma Z, como ya hemos indicado anteriormente. La posibilidad de realizar al menos la secuenciación del cromosoma sexual Z del canario (genoma canario) está ahí y puede quedar al alcance las federaciones ornitológicas, ya que los costes de los laboratorios hoy en día han disminuido ostensiblemente, y ello sería un gran paso adelante en el mejor conocimiento de la genética del canario de color y su evolución con respecto al canario silvestre.
Dimorfismo sexual y variabilidad genética La selección sexual ocasiona las diferencias entre los sexos (selección sexual intersexual) y entre los individuos del mismo sexo (selección sexual intrasexual), dando lugar a diferencias a la hora de aparearse entre unos y otros individuos e impidiendo el cruce entre especies con diferentes pautas de cortejo. La selección sexual aumenta el dimorfismo sexual en las aves y la tasa de especiación, al provocar mayor variabilidad en el ADN de los individuos de esa especie, afectando a los genes responsables de las características sexuales secundarias, lo que produciría una evolución debido a las ventajas en la reproducción de unos individuos con respecto a otros. Se ha observado que los taxones (grupos próximos filogenéticamente) de aves con mayor dimorfismo sexual están formados por un mayor número de especies y de subespecies y las diferencias entre los cromosomas sexuales son mayores.
¿Qué pasará en el futuro? El futuro está por llegar ¿continuará la degeneración del cromosoma sexual W de las aves hasta llegar a desaparecer?, o por el contrario, ¿la inclusión en el mismo de genes determinantes del sexo posibilitara su supervivencia? Son preguntas que nos hacemos los biólogos y que, al día de hoy, quedan sin respuesta definitiva.
Referencias bibliográficas Cuevas Martínez, Rafael. Genética y reproducción aplicadas a la ornitología deportiva. Croma. Press. 2012. El cromosoma Y es enteramente prescindible. Javier Sampedro. Valor crossing-over de los dos loci ligados al sexo en los canario en comparación con sus equivalentes loci ligados al sexo en los psitácidos. Inte Onsman. Sex-chormosomes in birds and mammals: diferences and similiratities. Intel Onsman. Mutavi. Dos sexos y un mismo animal. Universidad Ediburgo. Gymamdromorphs and halfsiders. Inte Onsman. Mutavi. Ginandromorfos y Halsiders. Inte Onsman. Mutavi. Machos sin cromosoma Y. Investigación y ciencia. Evolución convergente en los cromosomas sexuales de pollos y humanos. La ciencia y sus demonios. Evolución de los cromosomas sexuales.Pablo M. 2015. El cromosoma de la masculinidad. Karin Jegalian y Bruce T. Lahm. Investigación y Ciencia.2001. Algunas características cromossomicas do canario. Aldo Waldrigues. 1980. Los cromosomas sexuales y la evolución de las aves. Ciencia hoy. Un solo gen hace que un ave sea macho o hembra. Joaquín Ventura García. 2009. Sexado de aves mediante técnicas moleculares. Oscar Cortés y Susana Dunner. Servicio de Genética Clínica. Sistema ZW de determinación del sexo. Wikipedia. Inactivación del cromosoma X. Silvia Baquedano y Alejandro Usón. Selección sexual. Manuel Martín-Vivaldi y Josefa Cabrera. Universidad de Granada. Avian genomes. Science. Diciembre 2014. El genoma de las aves. Mónica López Ramos. 2007.

Créditos fotográficos conservados en el artículo.