Introducción La reciente aparición de un nuevo ejemplar de half-sider, muy próximo a la zona donde vivimos, nos ha suscitado de nuevo un gran interés por estos ejemplares y ha dado lugar al presente artículo. Los ejemplares conocidos como halfsider (término del idioma inglés que en español viene a significar, medio lado o parte), o también llamados bicolores simétricos longitudinales, y los ejemplares ginandromórficos siempre han suscitado un interés especial para los científicos, pues aportan datos valiosos para el estudio de la embriogénesis, genética y evolución de las aves, así como en otros grupos de seres vivos. También son objeto de una extraordinaria curiosidad para muchísimos criadores de aves, entre los que nos encontramos. Presentan un mosaico fenotípico de extraordinaria belleza y fascinación, aunque desafortunadamente este carácter no es transmisible a la descendencia.
Half-sider: características fenotípicas El fenotipo half-sider se asemeja al producido por una relación de codominancia entre dos genes alélicos, al expresarse en el plumaje, al mismo tiempo, los fenotipos correspondientes a dos alelos diferentes responsables de la coloración del plumaje. Es decir, que tanto el alelo dominante como el recesivo se manifiestan en el mismo ejemplar pero en una mitad distinta del plumaje. Los ejemplares half-sider y los ginandromorfos, son mosaicos genéticos (mosaicismo); es decir, en sus células aparecen dos genotipos diferentes para un determinado carácter, por ejemplo pigmentación del plumaje lo que, a su vez, da lugar a dos fenotipos cromáticos, e incluso sexuales, distintos.
Ginandromorfos: características El fenómeno half-sider puede afectar a los cromosomas sexuales; en este caso da lugar a los ejemplares llamados quimeras o ginandromorfos. En dichos ejemplares la repartición simétrica de los colores del plumaje afecta a los caracteres sexuales, como son el mosaico o el carácter phaeo, donde es evidente el dicromatismo entre machos y hembras. Los ejemplares ginandromorfos son mosaicos sexuales, es decir, en su organismo presentan tanto células “masculinas” como “femeninas” y, por ello, expresan un fenotipo con aparición de caracteres procedentes de los genes tanto del cromosoma sexual Z como del W, con áreas del plumaje correspondientes al sexo masculino y otras del sexo femenino, al activarse las hormonas sexuales bajo la influencia génica. El ginandromorfismo (del griego gine, femenino y andros, masculino) puede ser de tres tipos: bilateral, polar y de tipo oblicuo. El ginandromorfismo bilateral (GAB) observado en las aves consiste en la expresión fenotípica en un ejemplar de una mitad masculina (ZZ) y otra femenina (ZW), correspondiendo simétricamente cada mitad del cuerpo a un fenotipo diferente, ya que cada una de ellas, se ha desarrollado como un sexo diferente. Generalmente, se presenta el plumaje y características de las hembras en el lado izquierdo -recordemos que en la hembra de las aves sólo el ovario izquierdo es funcional- y la mitad derecha corresponde al plumaje del sexo masculino. Por ejemplo, en los pollos se han observado individuos con crestas y espolones en la parte derecha y en la parte izquierda su ausencia, así como un plumaje más típico de la hembra. También se han presentado otros casos de disposición inversa; así, se ha observado en un gorrión con fenotipo de macho en el lado izquierdo y de hembra en el derecho. En los casos observados de canarios de categoría mosaico, ocasiona un fenotipo cromático por lo general, de macho en una mitad del cuerpo (izquierda) y de hembra en la otra mitad (derecha); aunque también se da la situación contraria, ya que algunas células presentan cromosomas ZZ y otras ZW, pues la repartición simétrica, en este caso de la coloración lipocrómica, afecta a los caracteres sexuales. Diversidad de animales half-sider y ginandromórfcos Este fenómeno genético se ha descrito en diferentes familias y especies y de aves, siendo más frecuente entre las paseriformes –familia a la que pertenece el canario-, así como en otros órdenes como los galliformes y anseriformes. Se ha producido en diferentes especies de aves, al menos de las que tenemos noticias: pinzón vulgar, camachuelo común, gorrión diamante de Gould, periquito, inseparables, cardenalito de Venezuela, diamante mandarín, etcétera. A continuación describimos algunos ejemplares aparecidos con este carácter: - Camachuelo común de pecho y abdomen rojos pero en una sola mitad. - En el periquito común se han observado los siguientes ejemplares half-sider: mitad verde y mitad azul; mitad gris y la otra mitad azul; mitad verde y la otra mitad gris verde. - Ninfas con una mitad blanco y la otra mitad gris. - Inseparables roseicollis con mitad malva y la mitad azul. -Diamante de Gould ginandromórfico: pecho blanco con la máscara negra en una mitad (macho) y clásico con la cabeza roja en la otra mitad (hembra); o sea, se produce una variación fenotípica de cuatro caracteres en el mismo ejemplar, siendo probable en este caso que ocurran alteraciones en la disyunción tanto de los autosomas como de los cromosomas sexuales. En la literatura de divulgación científica también aparece citado otro diamante de Gould ginandromorfo con la máscara naranja en una mitad y roja en la otra. En los mamíferos estos casos son todavía más raros que en las aves pero también se producen. También ocurre en los reptiles, como por ejemplo en algunas especies de tortugas. En los animales invertebrados el ginandromorfismo tiene lugar entre diferentes grupos, especialmente en insectos (moscas de la fruta y mariposas) y crustáceos.
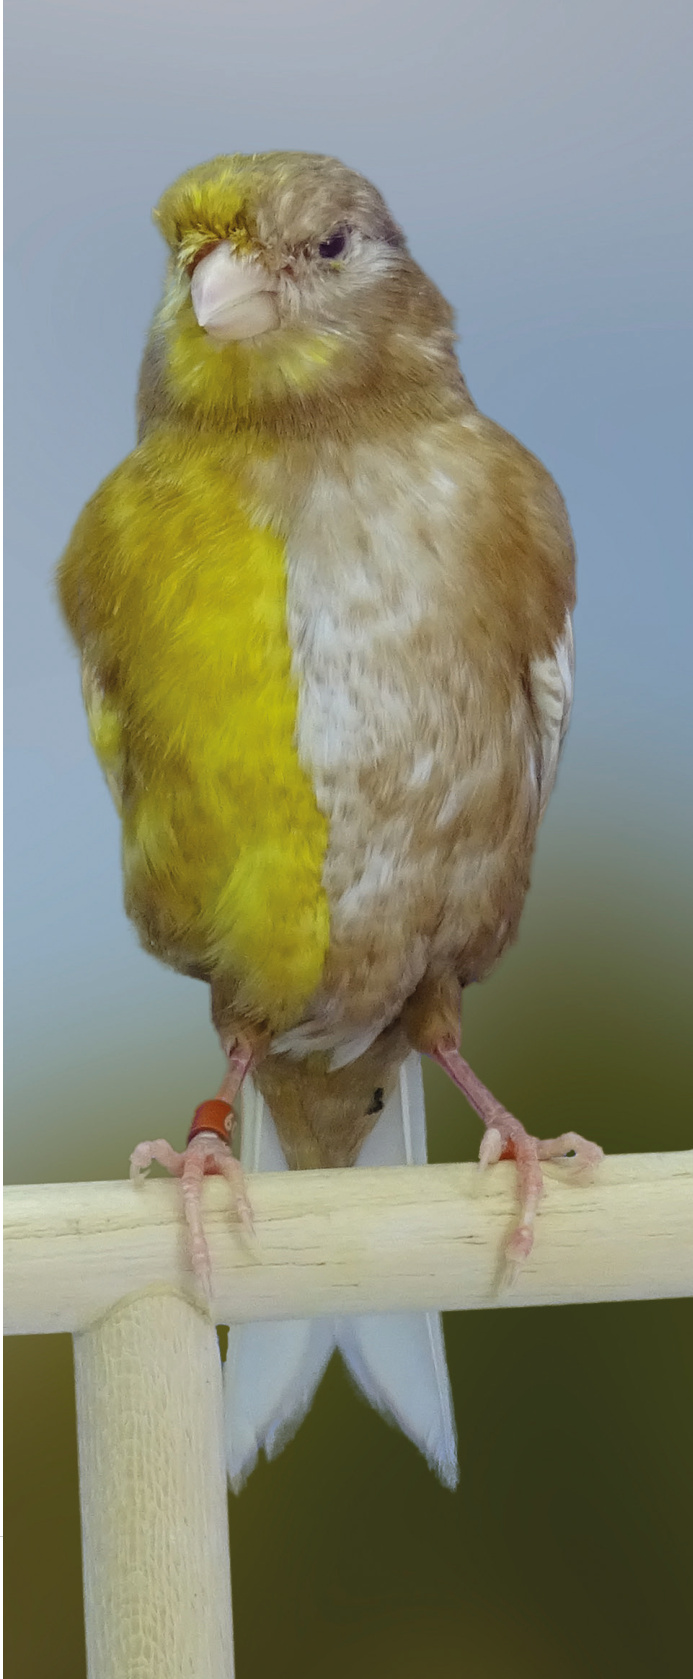
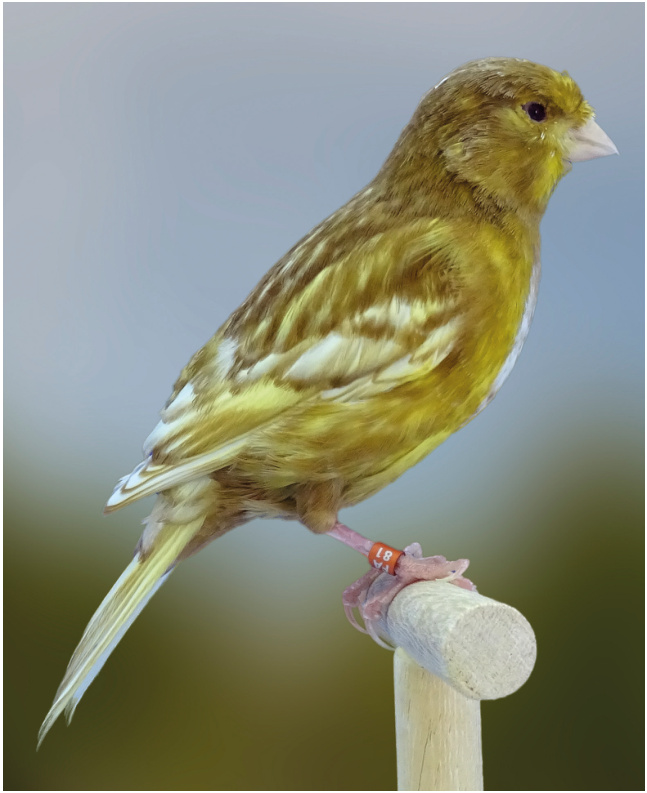
Canarios half-sider Este carácter se presenta también entre los canarios de color y de postura, existiendo una importante diversidad fenotípica en ejemplares aparecidos, tanto en su pigmentación lipocrómica como melánica. En canarios de postura se ha observado un ejemplar con presencia de moña en una mitad de la cabeza y su ausencia en la otra mitad, lo que demuestra que este fenómeno no solo afecta a la coloración del plumaje. Igualmente, ha aparecido un canario lizard blanco dominante en una mitad y amarillo en la otra, así como otro lizard mitad rojo y mitad rojo marfil. En el canario de color, los casos de los que tenemos noticia son los siguientes ejemplares: Canarios half-sider: 1. ágata mitad blanco dominante y mitad rojo. 2. mitad blanco recesivo y mitad rojo. 3. macho mitad verde y mitad bruno. 4. mitad bronce y mitad gris con factor azul. 5. Isabela con el lado izquierdo blanco y la mitad derecha amarillo. 6. Finalmente, el último ejemplar half-sider aparecido y motivo del presente artículo: phaeo mitad izquierda blanco y la mitad derecha amarillo. Los progenitores eran ambos phaeo blanco dominante con ascendencia de phaeo amarillo nevado. Canarios ginandromorfos: 1. ágata rojo mosaico con fenotipo de macho en el lado izquierdo y de hembra en el lado derecho. 2. rojo mosaico con fenotipo de macho en el lado izquierdo y de hembra en el lado derecho. 3. bruno pastel amarillo mosaico, mitad derecha con fenotipo de macho e izquierda de hembra.
Origen del half-sider y ginandromorfismo Half-sider Los ejemplares half-sider y ginandromorfos, surgen espontáneamente, tanto en los criaderos de los aficionados como en la naturaleza, aunque de manera muy excepcional. Como consecuencia de esta alteración genética en la división de las células (mitosis) durante la embriogénesis, se expresan en los individuos heterocigóticos tanto el gen dominante como el gen recesivo que estaba enmascarado por la acción del alelo dominante. A mayor porcentaje de individuos heterocigóticos en un criadero, la probabilidad de aparición de este carácter aumenta. Algunos autores cifran tal probabilidad en 1:10000 individuos; o sea, muy escasa. En la naturaleza la observación de estos ejemplares es menos frecuente que en los criaderos. El fenómeno natural se debe a la alteración en la información genética, pues no es un trastorno de base hormonal, sino genética. Cabe la posibilidad de que la edad de los progenitores pueda influir en una mayor probabilidad de aparición de este carácter, como ocurre por ejemplo con el síndrome de Down en la especie humana.
El mecanismo que genera los ejemplares half-sider puede ocurrir por: a) pérdida de la información genética de algún gen/es b) alteraciones durante la división mitótica, en la separación de los cromosomas homólogos, dando lugar a un caso especial de segregación cromosómica, separándose estos en lugar de las cromátidas hermanas, originando células hijas con diferente dotación cromosómica. Cada una de las cuales daría lugar por divisiones mitóticas repetidas a una mitad del cuerpo, provocando la expresión de mutaciones distintas en cada mitad. El cromosoma donde se sitúa el alelo dominante de un determinado gen, se separa del otro cromosoma homólogo y permite que los genes recesivos se expresen en las células derivadas de la célula mutante. Esto determina en una mitad del cuerpo la coloración normal del gen dominante y en la otra la pigmentación expresada por el gen recesivo. c) otras causas que se apuntan son mutación génica, entrecruzamiento, óvulos diploides, reunión de dos óvulos fecundados en un solo cigoto, etcétera. Según el profesor de biología francés Maurice Pomarède, la consanguinidad puede favorecer la aparición de estos ejemplares pero no es la causa. Debido a que los ejemplares half-sider presentan una mitad del cuerpo de un color y la otra mitad del otro, es muy probable que la mutación se produjera en las primeras divisiones mitóticas del cigoto, habiendo dos grupos de células con diferentes genotipos (mosaico genético), lo que da lugar también a la expresión de dos fenotipos diferentes. Sin embargo, no se trata de una relación de codominancia, puesto que existe un gen dominante y otro recesivo que también se expresa. Ginandromorfismo Estos ejemplares se forman por anormalidades en la división celular del embrión pero que, en este caso, afectan a los cromosomas sexuales. Se puede producir mediante alteraciones en la separación o disyunción de los cromosomas con pérdida del cromosoma sexual W, por lo que en el embrión existirán “células masculinas” con los dos cromosomas sexuales ZZ, que expresarían un fenotipo masculino en una mitad del cuerpo y otras células “femeninas” (ZO), que expresarían un fenotipo femenino en la otra mitad; es decir, con respecto a los cromosomas sexuales, el embrión sería un mosaico genético de células, lo que demuestra que la ausencia del cromosoma W no influye en la determinación del sexo. Otra posible explicación es que en un cigoto ZW, durante la división mitótica, tras la separación de las cromátidas hermanas del cromosoma W, éstas, ya transformadas en cromosomas, quedan en la misma célula, dando lugar a células ZWW y otras ZO que se comportarían como hembras y machos respectivamente. Una tercera causa del ginandromorfismo puede ser por formación de un óvulo binucleado, donde posteriormente es fecundado uno de los núcleos. Lo más frecuente es la ocurrencia de las alteraciones causantes del ginandromorfismo en etapas tempranas del desarrollo embrionario, al igual que los half-sider y a diferencia de los individuos intersexuales que surgen en etapas finales, o ya alcanzada la madurez sexual. Si la mutación ocurre en una fase temprana de la embriogénesis, produce un mayor efecto fenotípico. Según Pomarède estas anormalidades genéticas ocurridas tan pronto podrían tener su origen en la alteración de genes reguladores del desarrollo. Realmente se desconoce si esta es la verdadera causa pero todo tiene un porqué y una explicación; ya lo decía Albert Einstein: “Dios no juega a los dados”. Este fenómeno ocurre en genotipos heterocigótico, donde el gen recesivo ligado al sexo queda enmascarado, en un principio, por la acción del gen dominante. Se expresa dada la separación de los cromosomas que forman el par de cromosomas sexuales, dando lugar a los llamados half-sider ginandromorfos, o bien tratarse de ejemplares con gónadas de ambos sexos, posiblemente surgidos como consecuencia de la pérdida de algún cromosoma sexual (Z o W), o anormalidades durante el proceso de división celular (mitosis) ocurridas en los primeros estadios de la división celular como ya indicamos.

Transmisión hereditaria Estos caracteres se deben a una mutación de tipo cromosómico –provoca cambios estructurales en los cromosomas- ocurrida en células embrionarias somáticas (no germinales) y, por lo tanto, no es transmisible a la descendencia, así que omitiremos la selección y acoplamientos entre estos ejemplares. No es una mutación en el sentido estricto del término. Este tipo de mutaciones (aberraciones) lamentablemente no son heredables (transmisibles) a la siguiente generación, al no afectar a la línea germinal sino a la línea somática; es decir, a células no productoras de gametos. Por tanto, desde el punto de vista evolutivo desaparecen con el ejemplar donde han surgido y, por ello, su interés es limitado. Estos ejemplares son estériles o, al menos no, ha sido comprobada aún la fertilidad de los especímenes ginandromorfos. No obstante, en al menos en algunos casos (agapornis de fischeri) se ha observado ejemplares que se comportan como macho y copulan con la hembra pero sin obtener huevos fértiles. Tampoco se han citado casos de puesta de huevos. Un caso similar se observó en un diamante de Gould que se comportaba como un macho cortejando a la hembra, pero tampoco resultó fértil.
Ginandromorfismo y hermafroditismo El ejemplar ginandromórfico es diferente a un ejemplar hermafrodita, ya que en los sujetos ginandromorfos se produce una división simétrica en todo el cuerpo, dando lugar a células con dotación masculina y femenina en otras; o sea, se trata de un ave donde están presentes los dos sexos en el mismo ejemplar en función de la parte del cuerpo de que se trate. Son diferentes a los ejemplares hermafroditas, pues estos últimos presentan gónadas de ambos sexos, pudiendo incluso existir fecundación cruzada, tal y como ocurre, por ejemplo, en los caracoles. Finalmente añadir que son genética y fenotípicamente uniformes, a diferencia de los ginandromórficos.
Concursos-exposiciones Son ejemplares no reconocidos para concursar pero si es interesante su presentación a concursos para difundir su existencia y ser observados por los criadores que de otra manera, y a no ser por estos artículos de divulgación, pasarían totalmente desapercibidos.
Agradecimiento Al criador Miguel Ángel Troyano Gómez la cesión del ejemplar para ser fotografiado.
Referencias bibliográficas Cuevas Martínez, R. Canarios lipocrómicos y melánicos. Hispano Europea. 2010. Cuevas Martínez, R.Genética y reproducción aplicadas a la Ornitología Deportiva. Croma Press. 2012. Cuevas Martínez, R. Revista Pájaros. Nº 21. FOCDE. Half-sider. 1995 Cuevas Martínez, R. Revista Pájaros nº 50. Nuevo half-sider. 2002. El pollo ginandromorfo de frente. Universidad de Edimburgo. Genética. Anthony J. F. Griffiths y varios. Mc Graw Hilll.. 5ª edición. 1998. Ginandromorphy en agapornis sp. Jorge Muñoz-Gil et al. Universidad de Oriente. Venezuela. Google. Imágenes. Half-sider y ginandromorfos. Pomarède, Maurice. CRO/COM. Les half-sider. Janvier 1996. Revista Pájaros nº 19. FOCDE. Canarios half-sider. 1995. Revista Pájaros nº 26. FOCDE. Las aves half-sider. CRO/COM. 1996. Revista Pájaros nº 29. FOCDE. Más half-sider. 1996. William S. Klug y Michael R. Cummings. Concepto de Genética. Prentice Hill. 1999. Yeves Valero, Bernardino. Revista Pájaros. nº 2. FOCDE. Canarios half-sider. 1990.
Texto: Rafael Cuevas Martínez Fotos: Roberto Jurado Medrán. Créditos fotográficos conservados en el artículo.