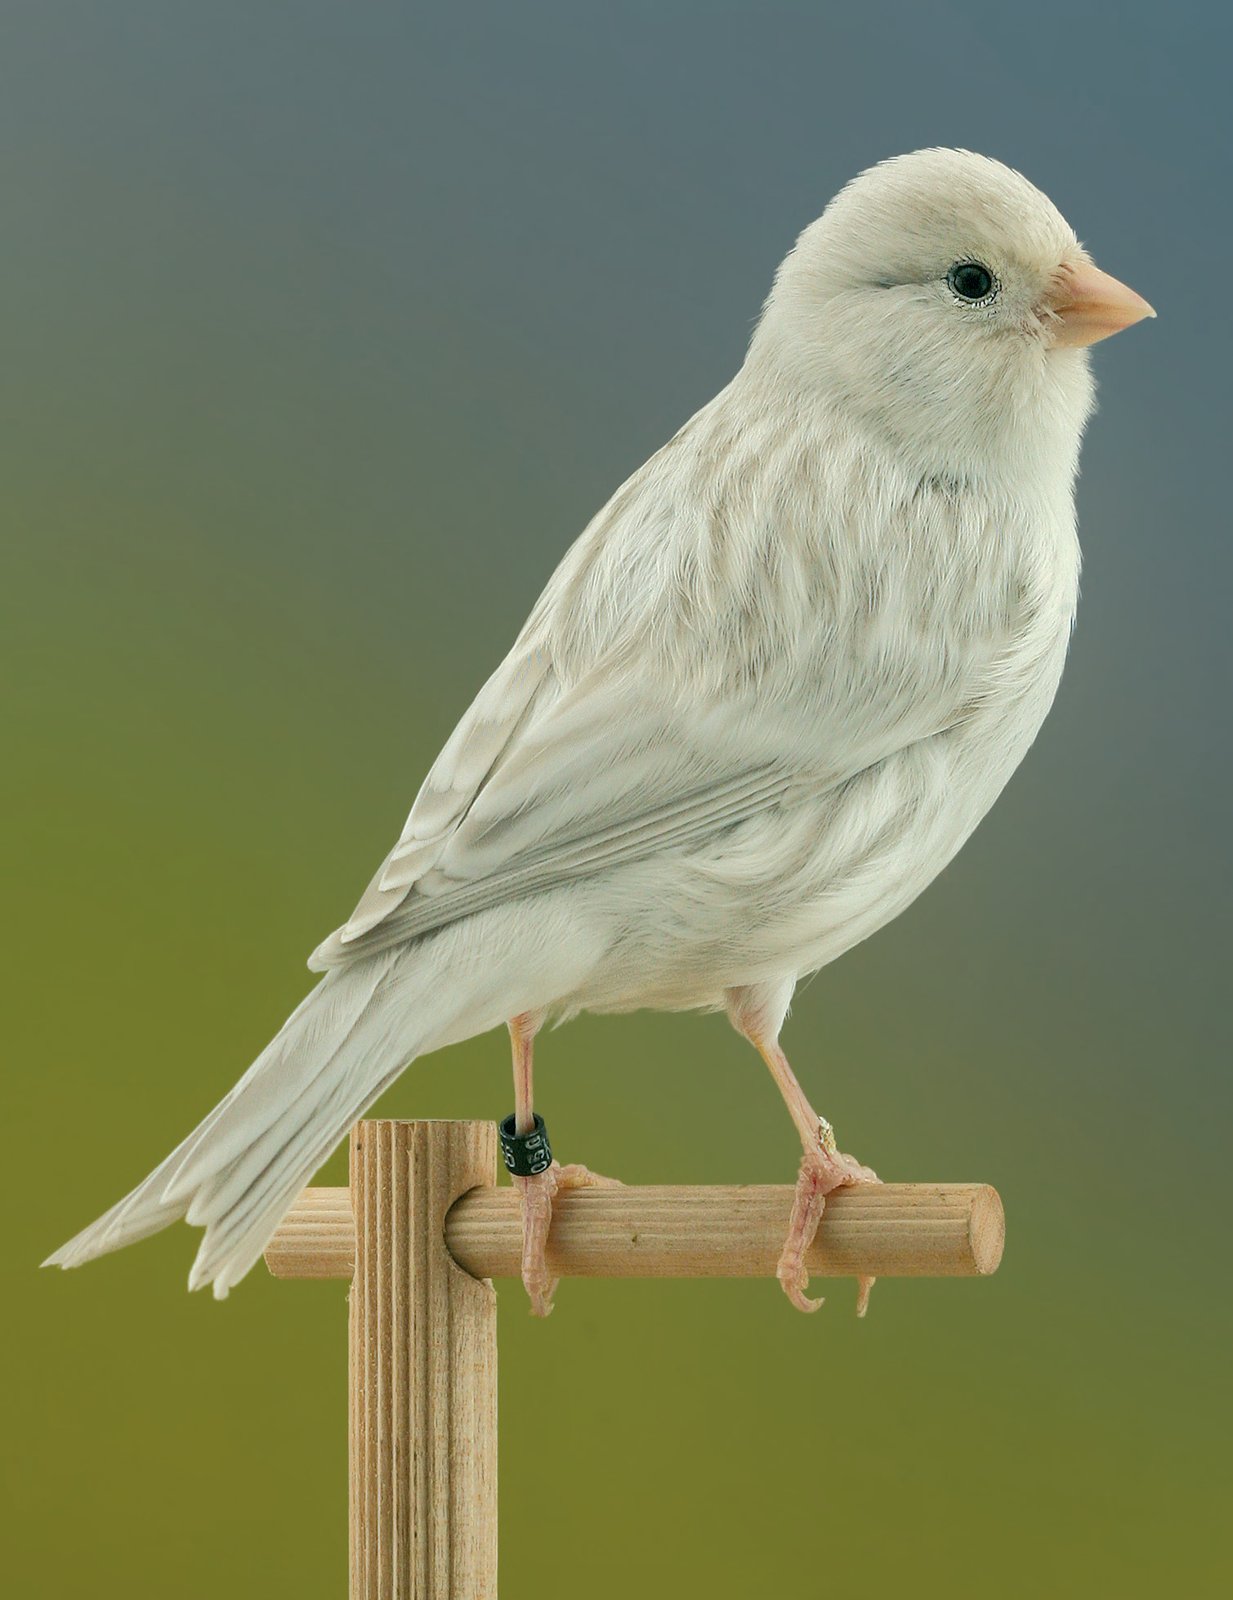
El plumaje del Canario Opal blanco tiene dos expresiones, el blanco y el azul, que tienen dificultades en manifestarse al máximo de su intensidad cuando interactúan. En este trabajo vamos a intentar demostrar cómo la expresión de la radiación azul en estos Canarios de color tiene menor intensidad cada vez que se asocia con la variedad blanca, por una evidente interferencia de la variedad sobre el tipo. Tendremos también ocasión de aportar un poco de luz sobre la importancia de la eumelanina en la génesis de la radiación azulada, en particular del azul Tyndall, de los sitios estructurales sedes de tales radiaciones y sobre el nacimiento, en general, de las cromías del plumaje de los pájaros.
El factor Opal
Como la mayor parte de los ornitófilos saben, la mutación Opal, recesiva y no ligada al sexo, provoca una reducción cuantitativa y una modificación cualitativa de las melaninas. A simple vista, los vexilos de los Canarios Opal se expresan con feomelanina extremadamente reducida, con coloración lipocrómica más brillante y con eumelaninas diluidas e incluso modificadas en su estructura y en su situación, hasta el punto de mostrarse de una tonalidad gris azulada. A nivel microscópico, las cosas son un poco más complicadas de analizar, pero este análisis es necesario para comprender cómo se origina la radiación azul. Como sabemos, las melaninas del plumaje son producidas por células llamadas melanocitos, situadas también en las papilas de las plumas. En el momento de la formación del plumaje, el producto de estas células lo penetran, coloreándolo de bruno o de negro.
Ahora bien, la investigación experimental ha confirmado que los melanocitos de los Canarios Opal sintetizan menor cantidad de pigmento negro, que agregándose en minúsculos gránulos originan melanosomas con cantidades modestas de pigmento (reducción cuantitativa), que se disponen en la parte profunda de la pluma. Esta profunda dislocación de los pigmentos, por añadidura asociada a melanosomas cuantitativamente más escasos pero de aspecto más grande de lo normal (modificación cualitativa), da origen a un particular substrato de queratina refringente, necesario para la génesis de esas radiaciones opalescentes o azules típicas del Canario Opal. La presencia de este estrato melanizado, dislocado en profundidad, hace que la pluma aparezca más pigmentada en su parte inferior que en la exterior.
Los melanocitos
Para comprender mejor el papel de estas células en la coloración azul, pero también en las coloraciones verdes y violetas de algunos vertebrados y por ende de los pájaros, es necesario abrir un paréntesis sobre las mismas. En este trabajo haremos mención constante a las publicaciones sobre las melaninas de un estudioso italiano, R. A. Nicolaus (Melanin studies. Nápoles 1995-2005). La melanina, que se presenta bajo la forma de gránulos, es producida, como decíamos, por unas células llamadas melanocitos y melanóforos. Los dos tipos de célula son morfológicamente diferentes, pero la diferencia más importante parece estar en que en los melanóforos, los gránulos de melanina pueden moverse, contribuyendo al cambio de color del animal (un buen ejemplo puede ser el camaleón), mientras que no ocurre lo mismo con los melanocitos. Independientemente de las Razas, nuestros Canarios tienen aproximadamente el mismo número de melanocitos. Los diferentes colores del diseño (negro, gris, antracita...), hay que atribuirlos, como hemos dicho, únicamente a una mayor o menor cantidad de melanina producida por el melanocito. El número de melanocitos decrece con la edad.
Las células, además de disminuir su actividad, tienen un ciclo vital más breve. Esto explica por qué, con el paso de los años, la oxidación de las melaninas de muchos Canarios sufre una notable decadencia cualitativa. Los gránulos de melanina se agrupan en estructuras más o menos compactas, los melanosomas. El diseño de los Canarios puede aparecer negro si los melanosomas están dispersos, claro si están concentrados. Resulta así evidente que la dilución y agregación de los gránulos puede llevar a la modificación del color del diseño de los Canarios. Pero el concepto más importante es que los gránulos negros pueden contribuir a la modificación de colores a consecuencia de fenómenos ópticos como la reflexión, difracción o difusión de la luz. En particular permiten la expresión del color azul Tyndall o también del verde, como síntesis de la suma del azul Tyndall y del pigmento amarillo. En este punto, se hacen necesarias algunas precisiones sobre los productos de los melanocitos: las melaninas. Las numerosas publicaciones que he consultado hablan en términos generales de melaninas y sólo en Canaricultura deportiva resulta esencial la distinción entre eumelanina y feomelanina.
Los análisis de laboratorio han demostrado que son muy raros los ejemplos de melaninas extraídas de un tejido animal que contengan sólo eumelanina o sólo feomelanina. Incluso plumajes aparentemente muy negros (cuervo, mirlo, etc.) contienen una cierta cantidad de feomelanina, que queda enmascarada por el negro de cobertura de las eumelaninas. Estudios desarrollados sobre palomas han permitido mapear los puntos de localización de eu y feomelanina en base a su mayor concentración y no en base a su exclusiva presencia en zonas concretas del plumaje. La lógica de estos estudios nos lleva a decir que el diseño de los Canarios, zona de convergencia de las eumelaninas, podría contener, por consiguiente, feomelanina, al igual que las zonas en que de forma masiva se concentra la feomelanina podrían contener también gránulos de eumelanina. Estos resultados experimentales reforzarían la hipótesis de que la mutación Ónix se realizaría como una verdadera sustitución de melaninas, que codificadas para convertirse en feomelanina, se conformarían, por el contrario, como eumelaninas.
Las zonas de residencia predominante de la feomelanina contendrían naturalmente numerosas “islas” de eumelaninas y nada nos impide pensar que estas pequeñas islas de eumelaninas puedan incrementarse por efecto de la mutación Ónix. El efecto fuliginoso sería así no un desbordamiento hacia la periferia de las plumas de eumelaninas, sino un incremento de éstas en zonas donde su concentración natural debería ser mínima.
Colores químicos y colores físicos
Los colores del plumaje de los Canarios se producen de diferentes modos. Algunos se originan por mecanismos relativamente sencillos relacionados con la reflexión óptica selectiva de pigmentos (melaninas y lipocromos), sustancias con un alto poder de absorción. En otros casos, el efecto cromático se debe a fenómenos ópticos más o menos complejos, que se producen a nivel de estructuras mucho más finas, las cuales activan ya sea el fenómeno de reflexión óptica sobre medios no homogéneos o el fenómeno de interferencia. La fina estructura de las plumas interviene en ambos casos para modificar el aspecto cromático final. La consecuencia es que la interacción de estos factores pigmentarios y ópticos puede ofrecer una gama de “impresiones cromáticas” extremadamente amplia. Es praxis consolidada subdividir los colores del plumaje de los pájaros según su naturaleza: colores químicos o colores físicos. Los colores químicos están ligados a los pigmentos carotenoides y a las melaninas. Sobre las melaninas, a pesar de ser los pigmentos más difundidos en el mundo animal, se conoce aún bastante poco.
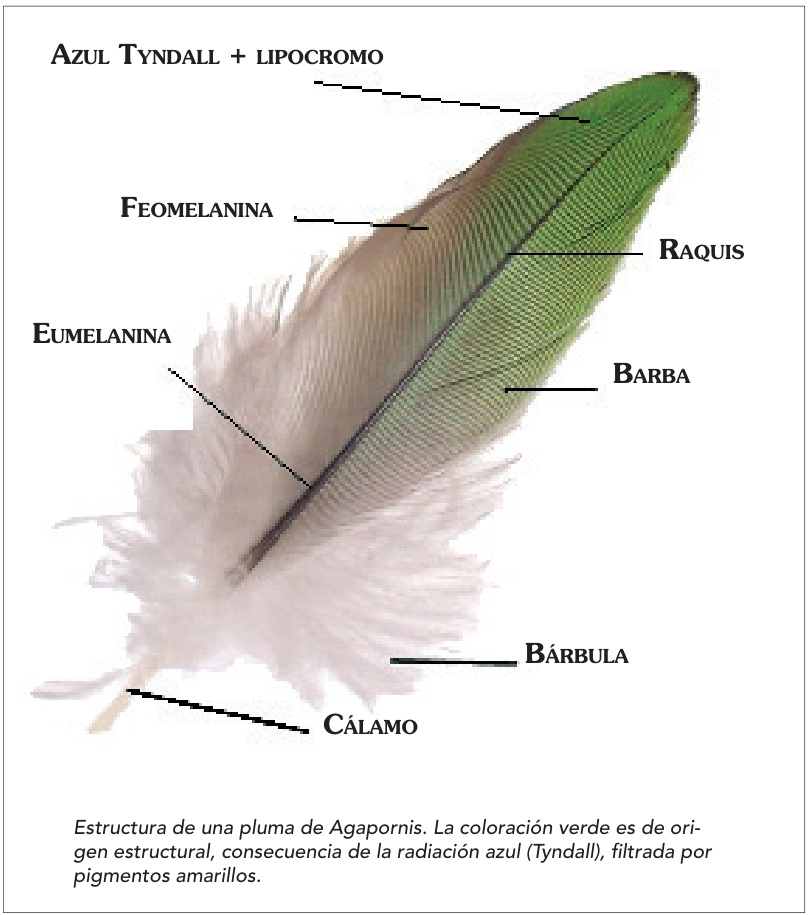
Están en el origen de los colores negro, gris, bruno y amarillo brunáceo, tan frecuentes en los pájaros. Los granos de melanina, aun afectando a todo el plumaje, se disponen de forma masiva sobre las barbas. Los pigmentos carotenoides están en el origen de la mayor parte de las coloraciones amarillas y rojas. Los carotenoides se encuentran ya en el primer esbozo de la pluma. Se concentran hasta formar masas vivamente coloreadas ya en la fase de formación de la queratina. La queratina toma así el color del pigmento carotenoide, que se difunde progresivamente, al contrario que las melaninas, que forman gránulos más o menos estratificados, densificándose en la zona cortical de las plumas. Los carotenos se sitúan en la parte distal de la pluma mientras que parte proximal se enriquece de melaninas. Los carotenos se difunden especialmente en las bárbulas.
Los colores físicos son aquellas coloraciones del plumaje que no son debidas a la presencia de pigmentos específicos (verde, azul, violeta....), pero que se manifiestan incluso con tonalidades metálicas y que tienen su origen en la particular conformación de las estructuras del plumaje, que permiten que se produzcan fenómenos de naturaleza fisico-óptica. Estas coloraciones, también llamadas por ello estructurales, se deben principalmente a tres fenómenos luminosos: • interferencia sobre láminas finas; • difracción; • difusión (efecto Tyndall). Los primeros dos mecanismos producen colores iridiscentes, al contrario que la difusión. La iridiscencia se produce cuando un objeto muestra colores diferentes según el ángulo desde el que se vea. Un color difuso y, por consiguiente, no iridiscente, aparece siempre igual sea cual sea el ángulo desde el que se observa. Debemos precisar que también las coloraciones originadas por simples pigmentos están siempre ligadas a fenómenos ópticos bastante sencillos de comprender (reflexión, refracción y absorción).
De hecho, estas sustancias químicas absorben una pequeña fracción de los rayos luminosos incidentes y, después de filtrarlos, reflejan tan sólo una parte del espectro luminoso. La consecuencia es que la luz blanca se transforma y la superficie en donde se halla el pigmento adquiere el color determinado por la naturaleza de éste y por la cantidad de absorción que se produzca.
Colores por interferencia sobre láminas finas
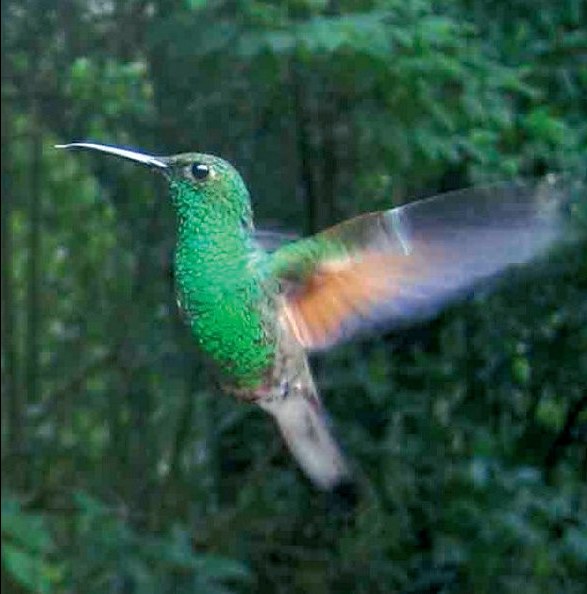
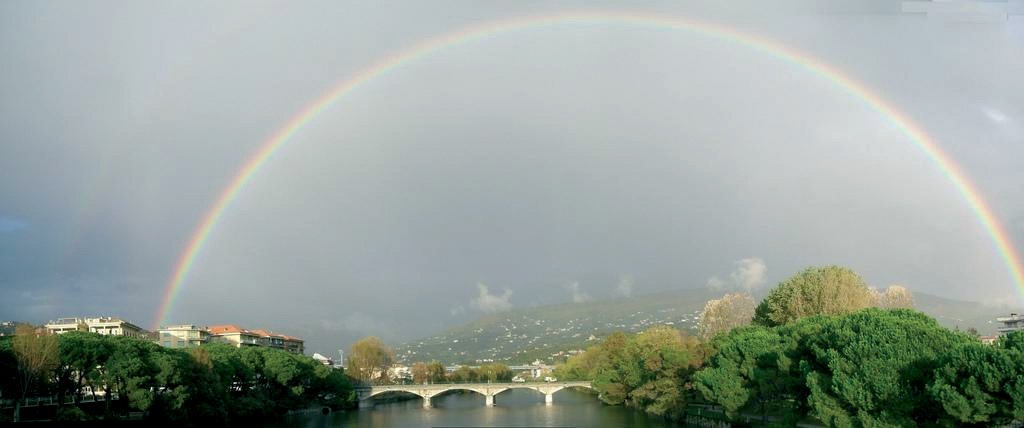
El juego de colores que se observa en las pompas de jabón, en las alas de las moscas, en el plumaje del colibrí se explica por fenómenos ópticos de interferencia. Los reflejos iridiscentes provocados por el movimiento de la ondas que agitan una capa fina de gasolina son un ejemplo clásico de interferencia sobre láminas finas. Físicamente, el fenómeno se justifica por el desfase entre los rayos luminosos reflejados por la parte superior e inferior de la lámina de gasolina, que siguen trayectos ópticos diferentes. Casi siempre, los reflejos metálicos o también coloraciones que cambian en función del ángulo bajo el que se observe (coloraciones iridiscentes) que se aprecian en el plumaje de los pájaros son originados por fenómenos de interferencia óptica sobre láminas finas. En las plumas de los pájaros, y más concretamente en la parte donde hay una zona iridiscente, se encuentran gránulos muy regulares de melanina, depositados en forma de mosaico en un solo estrato (a modo de lámina), rodeado de queratina.
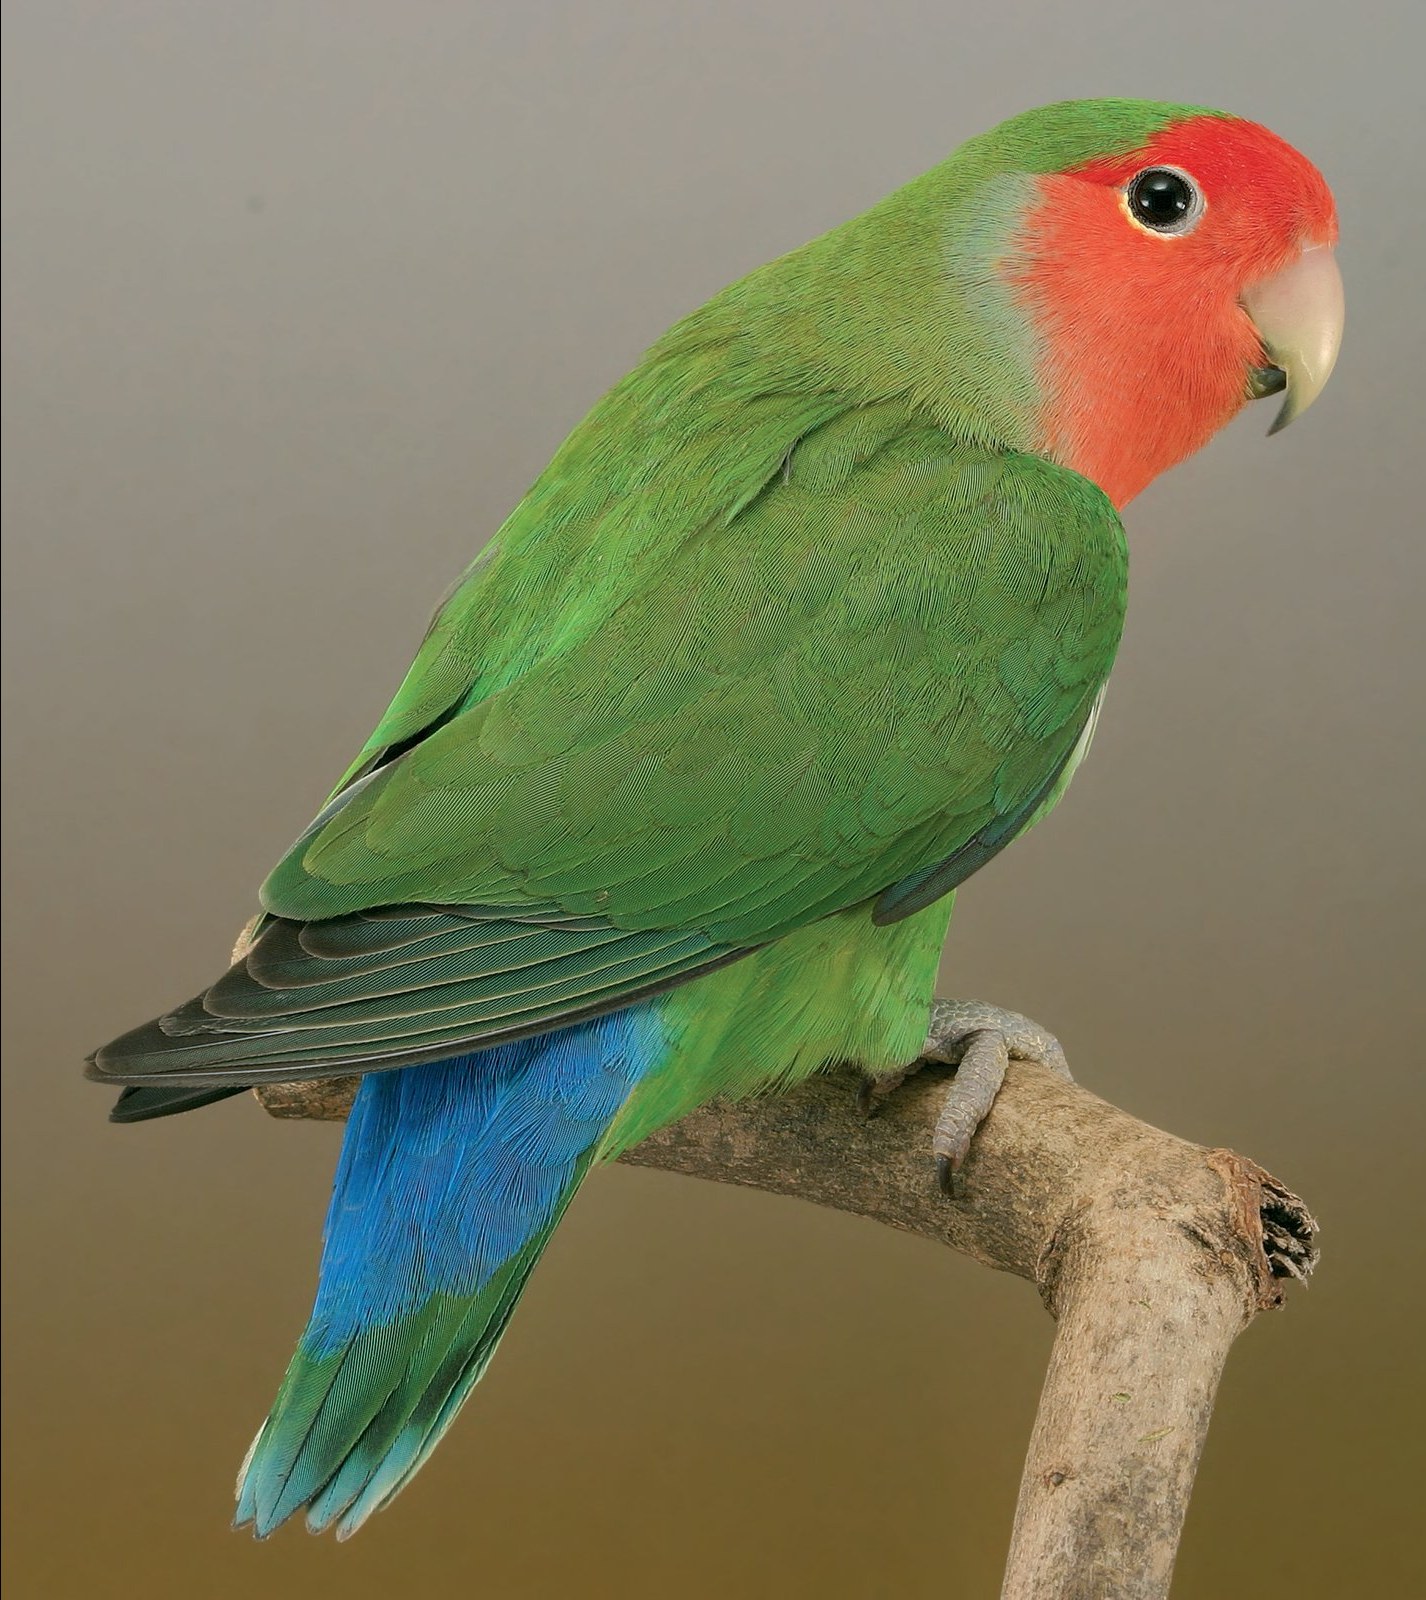
Puesto que los gránulos de melanina tienen un grado de refracción mucho mayor que la queratina circundante, se produce el fenómeno de la iridiscencia. Las zonas de extensión de estas radiaciones iridiscentes ocupan a menudo partes delimitadas del plumaje (ocelos en el pavo real) mientras que por el contrario, la coloraciones por difusión, que trataremos a continuación, casi siempre afectan a zonas amplias del plumaje. En los Agapornis roseicollis, la extensión de las coloraciones verdes es tan amplia que afecta casi a todo el plumaje y es un ejemplo de color debido a radiación difusa y no interferencial. Por consiguiente, la extensión de la zona de plumaje afectada por la radiación puede ser un elemento para diferenciar las dos tipologías de radiación, interferencial o difusa. Las interferencias ópticas se producen sólo a nivel de las bárbulas,s en finas estructuras tan especializadas que no pueden coexistir con otros tipos de coloraciones sobre la misma unidad anatómica.
Colores por difracción
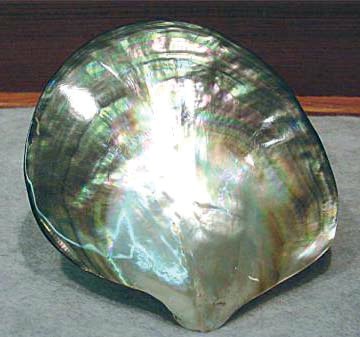
Si sobre la superficie brillante de una plancha metálica realizamos una serie de finas incisiones longitudinales paralelas y muy próximas, obtendremos un retículo de difracción, y si sobre estos arañazos incide transversalmente un rayo de luz blanca, los rayos reflejados generan un espectro luminoso que hace que la superficie sea iridiscente, como por ejemplo podemos apreciar sobre un compact disc. El ojo de algunos mamíferos (pantera) emite una luz coloreada, visible en la semioscuridad, que se genera en una zona posterior de las coroides. Parece que esta zona reflectante de la coroides genera colores debidos, al menos en algunos casos, a fenómenos de difracción, aunque no puede excluirse la intervención del fenómeno de la interferencia. También la iridiscencia de la madreperla, en un principio asociada a fenómenos de interferencia, sería atribuible, según estudios recientes, a la difracción debida a la disposición de los minerales que constituyen la madreperla. La iridiscencia por difracción, aunque presente en la naturaleza, tiene escasa importancia en Canaricultura ya que las plumas de los pájaros tienen dificultades para crear retículos de difracción.
Mucho más importante es, sin embargo, la coloración por difusión, que se presenta en numerosas especies de pájaros.
Colores por difusión
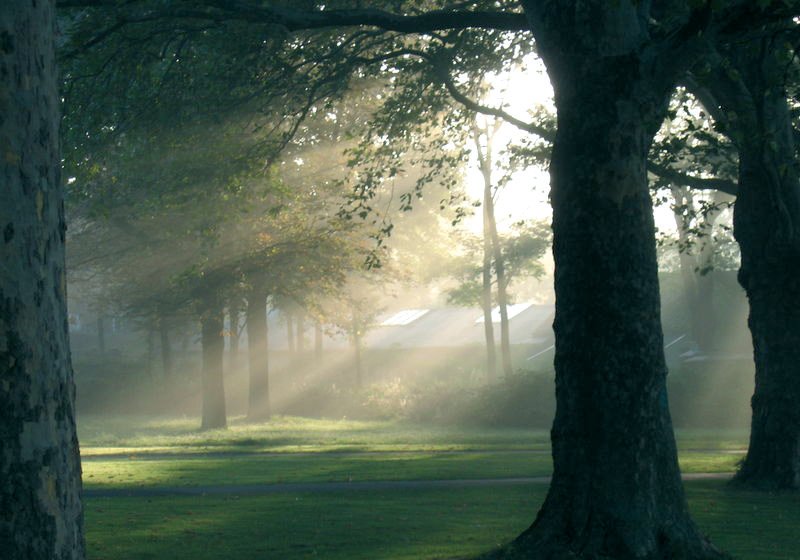
Como decíamos, el color de los animales puede ser debido a un efecto físico (llamados esquemocromos o colores estructurales) a un pigmento (llamados también biocromos) o a la interacción de los dos. De los colores de los pájaros debidos a los biocromos (eumelaninas, feomelaninas y lipocromos) incluso el más desinformado de los criadores tiene ya conocimiento. Pero no se puede decir lo mismo de los esquemocromos. Uno de los colores más interesantes entre los presentes en la naturaleza es el azul, que casi siempre es un color físico o estructural (esquemocromo). En Canaricultura, esta radiación azul se llama a menudo azul Tyndall. En 1869, John Tyndall fue uno de los primeros en estudiar el color azul del cielo y esta coloración se menciona como “efecto Tyndall, de manera impropia (debería hablarse de dispersión de Rayleigh) La difusión puede definirse como un “desparramamiento”, una dispersión de rayos luminosos que chocan contra obstáculos. Los colores consecuentes al efecto de la difusión tienen la importante característica de no cambiar con el ángulo visual, es decir no son iridiscentes.
En forma resumida, estos colores se originan de la difusión de las longitudes de onda menores de la luz blanca, que “chocan” con partículas pequeñísimas. Estas minúsculas partículas pueden ser burbujas de aire, pequeñísimos cristales o sustancias coloidales. Es sabido que la luz blanca es un conjunto de radiaciones de color de frecuencias variables. La luz difundida por partículas menores que su longitud de onda puede dar lugar a fenómenos de reflexión o de difusión, en mayor medida para las longitudes de onda más cortas (azul, violeta) y en menor medida para longitudes de onda más anchas (rojo o amarillo). De hecho, la intensidad de la luz difusa es proporcional a la cuarta potencia de la frecuencia de la luz misma (teoría de Lord Rayleigh, de finales del sigo XIX). De forma más sencilla, si enviamos sobre partículas bastante pequeñas la componente azul (que tiene la frecuencia más alta), se difunde casi 10 veces más que la componente roja, que es la de frecuencia más baja.
En el caso del cielo azul, las moléculas presentes en los estratos altos de la atmósfera y las partículas de polvillo contenidas en las partes bajas difunden y nos reenvían un alto porcentaje de las ondas más cortas (que son las de frecuencias más altas) del espectro solar: azul y azul celeste. Así, el azul del cielo se debe a luz difusa, mientras que el rojo del atardecer es aquella parte de la luz solar que nos es transmitida y no difundida. Si no existiese la atmósfera, y por consiguiente fenómenos de difusión, el cielo aparecería negro durante el día, como lo es cuando se ve desde la superficie lunar. El color azul de los ojos humanos y de algunos gatos se produce de forma análoga al azul del cielo, pero también el humo de un cigarrillo asume un color azulado cuando destaca sobre un fondo oscuro que impide la reflexión de otros colores que podrían enmascarar el azul. El azul brillante de la cara del mandril, el color azul del pavo salvaje se deben a la difusión de Tyndall. La presencia eventual de melanina, detrás de las partículas proteicas responsables de la difusión, determina un incremento del azul.
El azul del ojo humano se debe a pequeñas partículas proteicas que se encuentran en el iris, con índices de refacción mayores que los del estroma que lo rodea, responsables de las radiaciones azules. Un estrato doble de células intensamente pigmentadas de negro (eumelanina) situado detrás del iris asume la función de filtro absorbente de las radiaciones residuales. El gradual engrandecimiento de las partículas, inevitable con el paso del tiempo, explica porqué el azul se reduce con el envejecimiento.
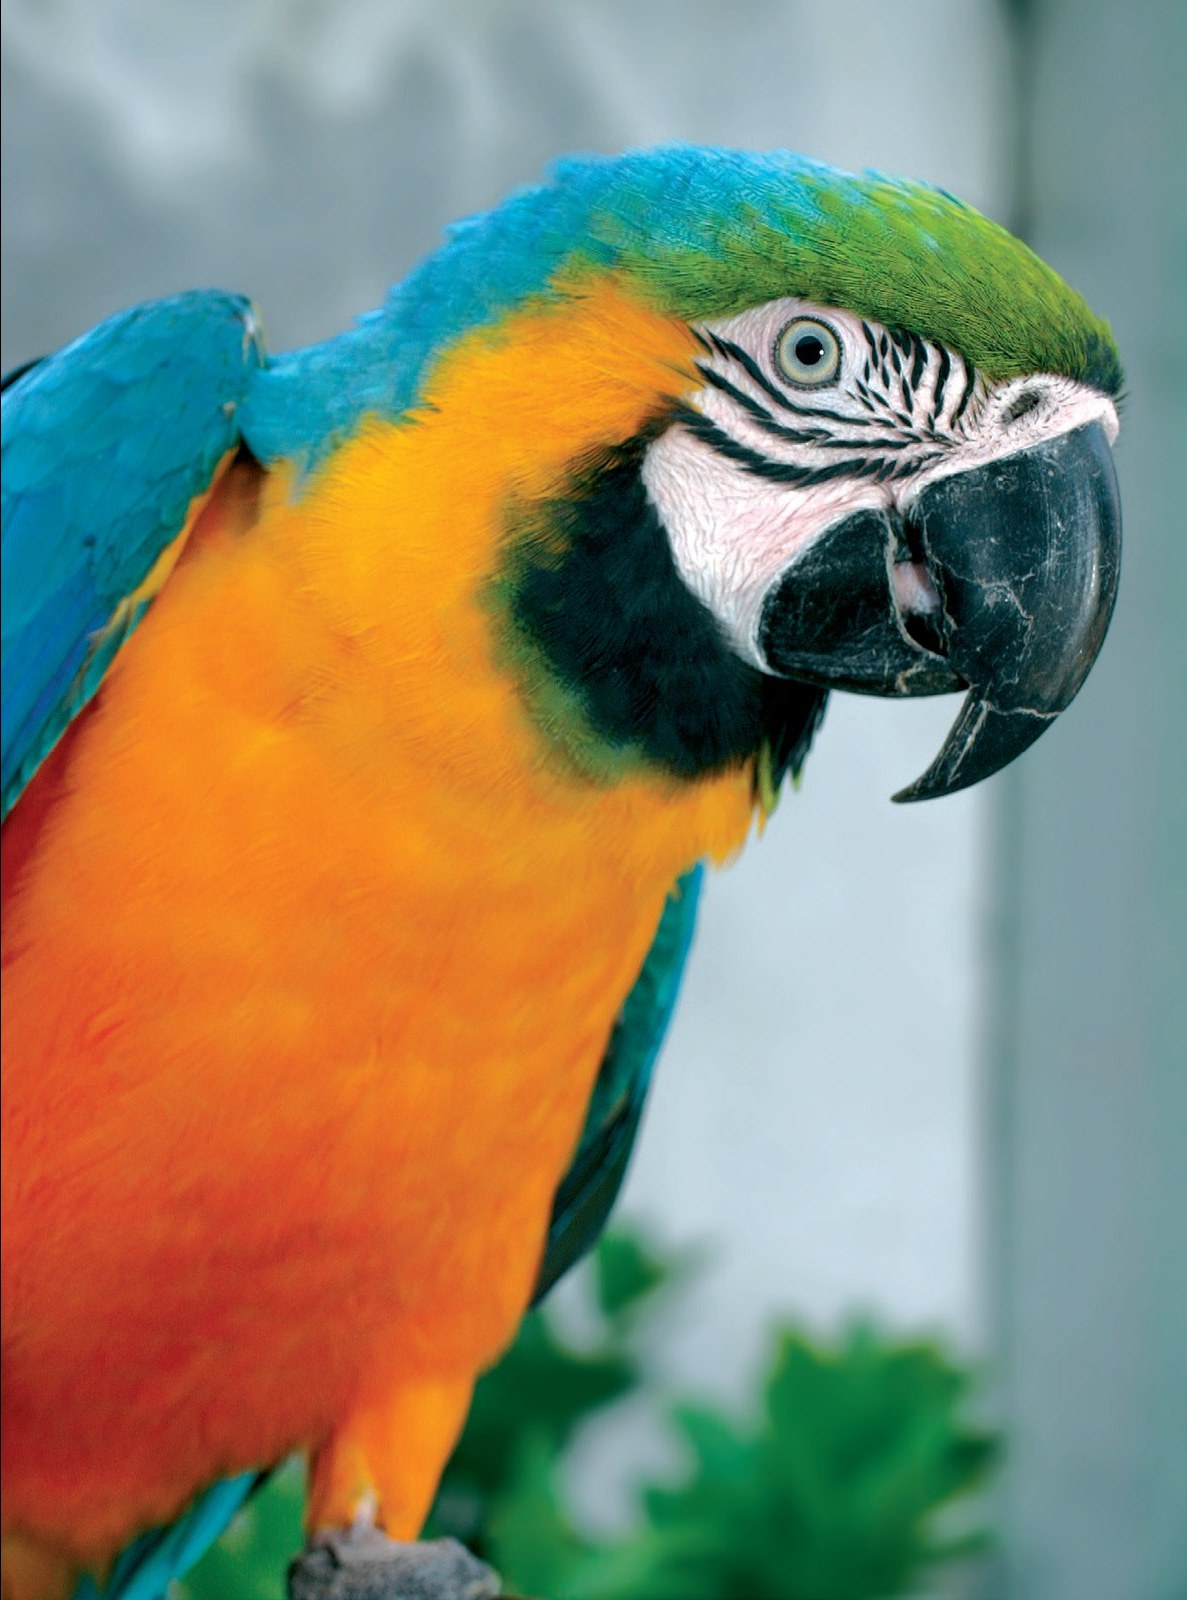
Las plumas de muchos pájaros que muestran radiaciones azules, como periquitos o papagayos australianos. están coloreadas por el efecto Tyndall, es decir de forma completamente diferente al azul iridiscente del pavo real o del colibrí. Cada trazo de coloración azul de los fringílidos, y por consiguiente de los Canarios, se debe al efecto Tyndall. Un azul que no sea iridiscente puede ser identificado si se observa una pluma azul con luz blanca puesta detrás: el azul se desvanece y es sustituido por un marrón oscuro, mientras que en idénticas condiciones, plumas rojas o amarillas coloreadas por un pigmento permanecen inalterables. El sitio estructural de las plumas sede de estas radiaciones es la barba. En las barbas, las partículas que determinan la difusión de la luz son células de queratina, con paredes muy espesas y porosas, con numerosas microvacuolas (minúsculas cavidades rellenas de aire, las llamadas box cell) en el centro. Un experimento puede demostrar la naturaleza difusiva de esta radiación azul.
De hecho, el color azul de esta plumas puede anularse simplemente sumergiendo la pluma en algún disolvente (disulfuro de carbono, xileno): el agua que ocupa las vacuolas es sustituido por este disolvente orgánico, las plumas pierden parte del azul y se muestras variegadas de negro. Una vez se haya evaporado el disolvente, las microvacuolas se rellenan de aire y vuelve el color original. Otro experimento más sencillo consiste en triturar finamente la pluma en un mortero, con el fin de destruir la arquitectura celular que produce el color azul, que, de hecho, desaparece y es sustituido por un gris con tendencia al marrón, signo evidente de coloración debida a esquemocromo y no a biocromo. Otro dato experimental es que el azul es tanto más intenso y profundo cuanto más espesas sean las paredes celulares, sea cual sea la especie de los pájaros.
Verde difuso
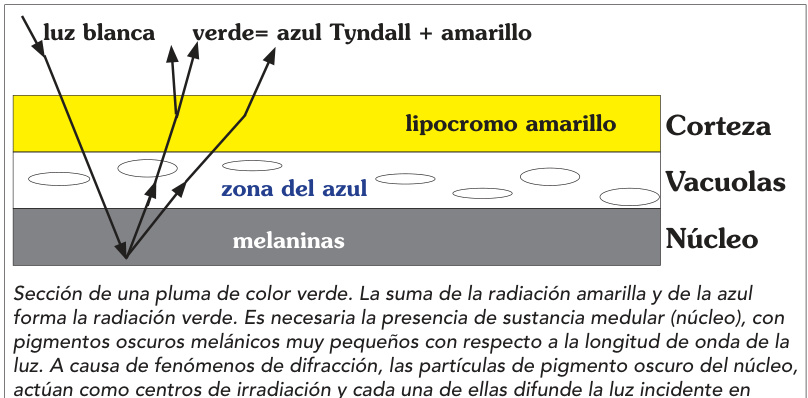
También el verde puede ser causado por el efecto Tyndall. En el Ara se puede ver muy bien cómo el azul, insinuándose en el amarillo de la cabeza, deriva gradualmente a verde amarillento. El estrato más externo de queratina (cutícula) que recubre las barbas de una pluma verde por difusión contiene un pigmento amarillo capaz de filtrar las radiaciones más cortas de la luz blanca incidente: los diminutos espacios celulares consiguen difundir lo que resta de las longitudes menores filtradas, especialmente las que provocan la sensación de verde. Aunque se difunda una cantidad menor de estas ondas, más largas que en el caso de una pluma azul, nuestro ojo es relativamente más sensible al verde. El color verde de una pluma depende por consiguiente de la pantalla amarilla que filtra la radiación azul. El pigmento amarillo puede ser eliminado con ácido acético y sulfuro de carbono: la pluma aparecerá azul. Entre las Psitácidas, concretamente en el Periquito ondulado (Melopsittacus ondulatus), su coloración tiene una base genética.
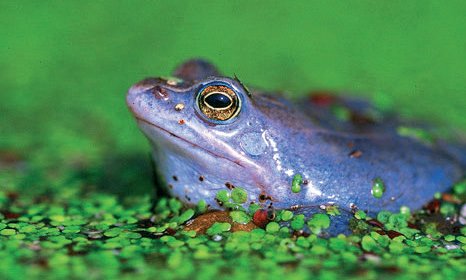
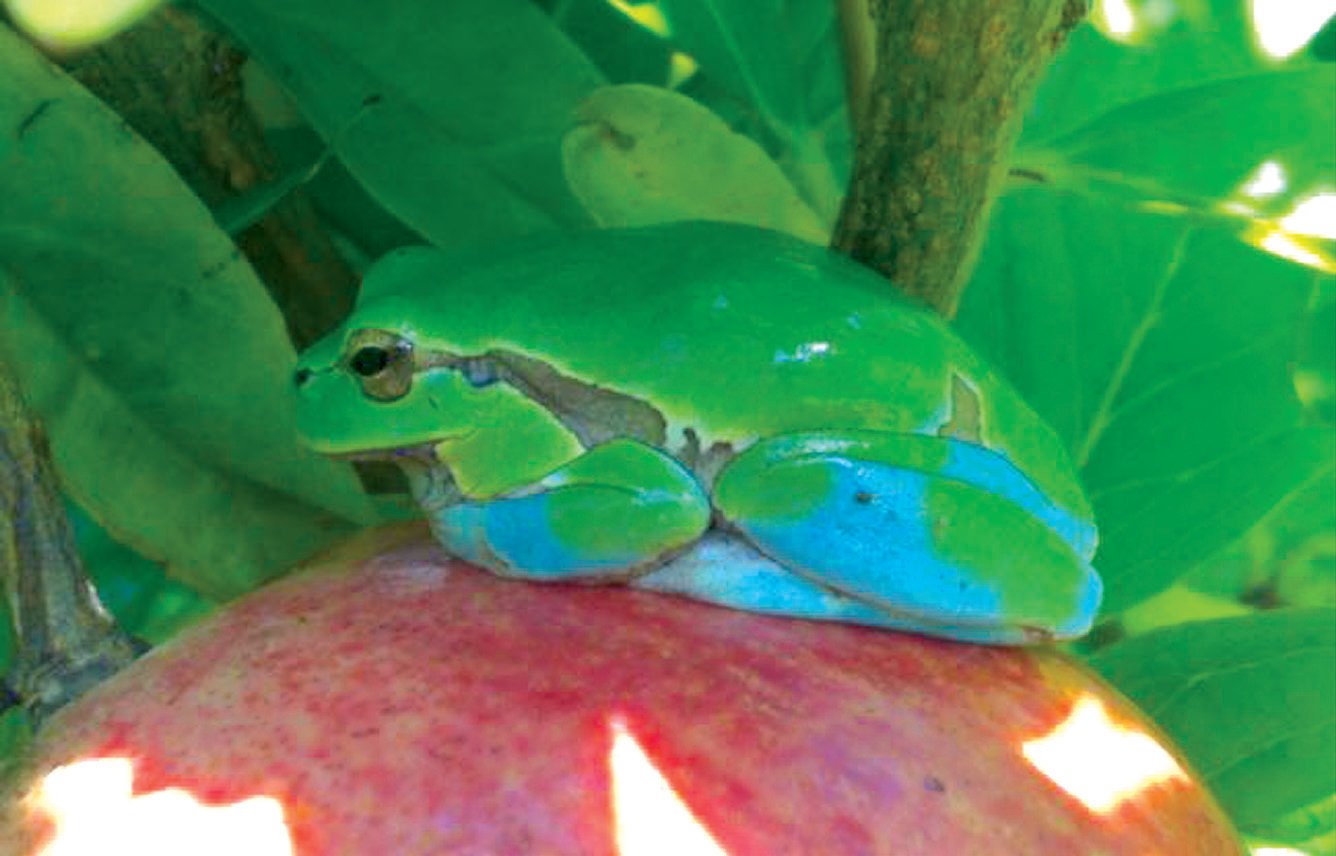
Los ejemplares silvestres son verdes, pero es posible encontrar periquitos azules por la presencia de un gen recesivo, que impide la acumulación de pigmento amarillo en las plumas. Otros genes mutados pueden bloquear la formación de melanina, con lo que la luz azul difusa no puede ya ser vista y los periquitos se ven de color amarillo. En el caso de que falte tanto melanina como pigmento amarillo, por acción de los dos genes recesivos, los periquitos aparecerán blancos. Las ranas silvestres tienen un color verde de naturaleza difusa sobre base genética, pero por efecto de genes recesivos, algunas no son capaces de acumular pigmento amarillo, por lo que se muestran de un bonito color azul.
Bibliografía
R.A. Nicolaus:Melanin studies.2005. E. Corti: Summa gallicana. F. Faggiano: Mutis mutandi. FOI. C. Alfonzetti: Italia ornitologica. P. Mignone: Italia ornitologica. Actas Convenio Ornitológico Macerata 2002.
Texto: Cosimo Alfonzetti. Créditos fotográficos conservados en el artículo.