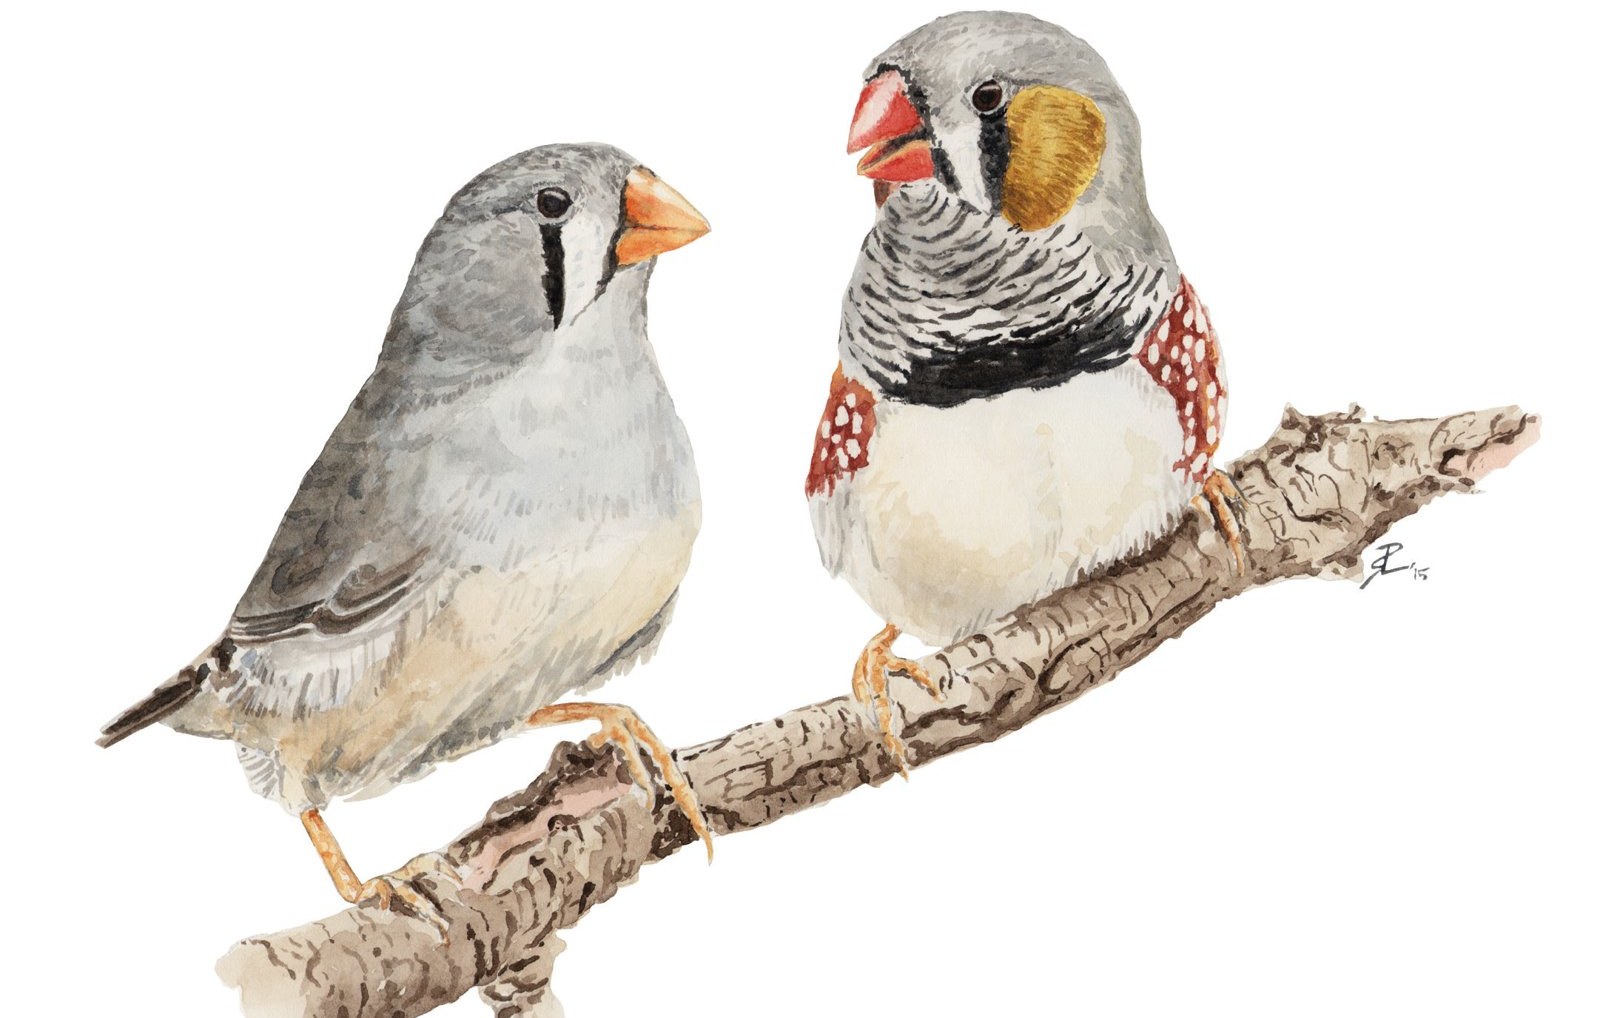
Los nombres científicos son esenciales en biología pues nos permiten identificar a cada especie sin ambigüedades y a pesar de que hablemos diferentes idiomas. Estos nombres -que siempre se escriben en cursiva— están compuestos por dos palabras en latín, la primera de las cuales indica el género y la segunda concreta la especie. Para cumplir su cometido eficazmente, cada especie sólo puede poseer un único nombre científico. Sin embargo, en ocasiones, nos encontramos ta la misma especie se le atribuyen nombres científicos diferentes en distintas publicaciones. Este es el caso del diamante mandarín, al que se nombra como Poephila guttata o Taeniopygia guttata, según la fuente. ¿Dónde está el origen de esta confusión? ¿Cuál de estos nombres es el correcto? En este artículo repasamos brevemente cómo funciona la taxonomía, cómo y cuándo se describió por primera vez el diamante mandarín y cual es el origen de la controversia existente sobre su nombre científico.
El ser humano es un sujeto clasificatorio. Tenemos tendencia a organizar el universo que nos rodea en base a apariencias, formas, colores, usos. Nuestra visión del mundo está condicionada por ello. Todas las culturas que conocemos poseen alguna forma de clasificar la naturaleza que les rodea, a menudo basándose en su apariencia (color, forma de desplazamiento, localización) o utilidad (palatabilidad, propiedades medicinales, peligrosidad). Dado que estos criterios han variado entre culturas y regiones, dichas clasificaciones no suelen ser muy consistentes. Debido a esta tendencia natural a la clasificación, no resulta fácil fijar en el tiempo el origen de la Taxonomía (la ciencia de la clasificación de los seres vivos). La forma de nombrar que hoy usamos entronca con el sistema de nombres comunes en latín que se empleaba ya en la época clásica. Éste, a su vez, no era muy diferente en términos de estructura del que empleaban otros pueblos de las mismas zonas en épocas más antiguas aún.
Este sistema de nombres latinos se mantuvo durante toda la Edad Media, pero experimentó un auge tremendo durante el Renacimiento, gracias al florecimiento de las primeras colecciones científicas y el enorme volumen de nuevos especímenes que empezaban a llegar a Europa de mano de los primeros naturalistas que se aventuraban en grandes expediciones. Para cumplir con su cometido, los nombres científicos empleados para designar cada nuevo organismo descrito deben ser únicos, específicos. Generalmente, esto se lograba mediante la adición de nuevas palabras al nombre de la especie conocida más semejante, destacando así algún rasgo que la distinguía de ésta. En la práctica, esto generaba una nomenclatura repleta de designaciones largas, heterogéneas y compuestas por un número indeterminado de vocablos. Este sistema de nomenclatura, que siguió en uso hasta mediados del siglo XVIII, carecía de reglas estandarizadas y más o menos consensuadas entre los científicos.
Esto hacía que a menudo una misma especie se nombrara de distintas formas según los autores, lo que suponía un grave problema para la clasificación de los seres conocidos e imposibilitaba una correcta revisión y síntesis de los conocimientos existentes. Si además consideramos que el siglo XVIII fue el de las primeras grandes expediciones naturalistas a lo largo y ancho del globo -con el incremento exponencial de especies por describir y clasificar que ello implicaba- la necesidad de un sistema reglado de nomenclatura se hizo aún más patente. Autores como Joseph Pitton de Tournefort o John Ray desarrollaron y emplearon sus propios sistemas de nomenclatura en sus clasificaciones. Estos sistemas estaban particularmente centrados en la botánica, el campo que más desarrollo tuvo en la época. Sin embargo, no fue hasta la entrada en escena de Linneo cuando se fijaron las bases de la taxonomía y la nomenclatura biológica modernas.
Deus creavit, Linnaeus disposuit
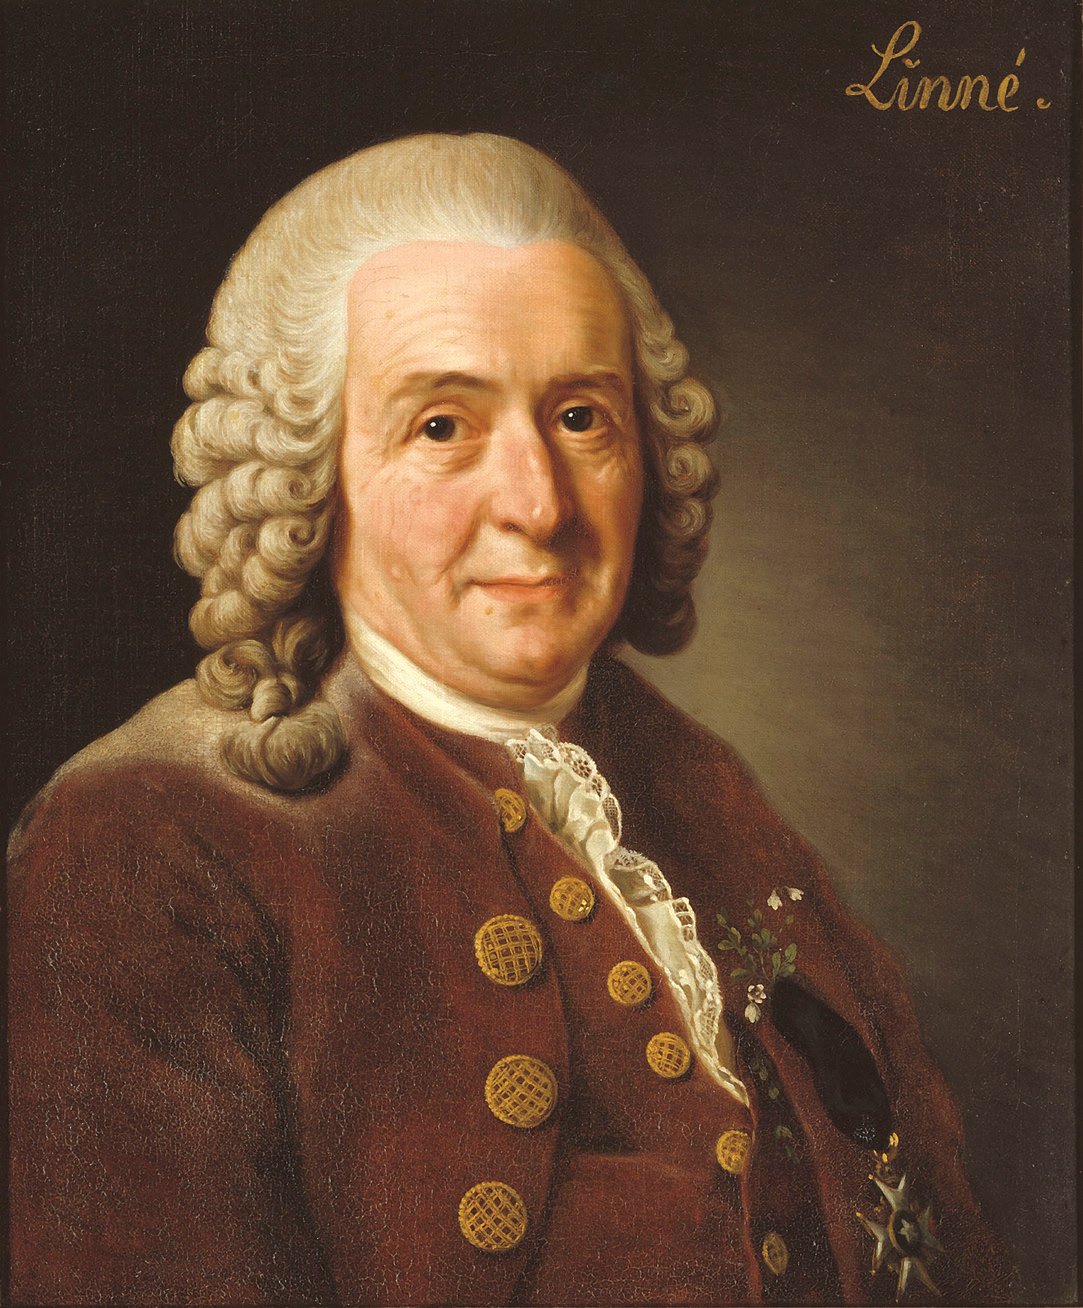
Hacia 1750, el naturalista sueco Carl von Linné (o Linneo) publicó una serie de obras, especialmente Phylosophia botanica, Species plantarum y Systema naturae, en las que sentaba las bases de la nomenclatura científica y la taxonomía tal y como las conocemos hoy. Según el sistema linneano, y recogiendo en parte las ideas de sus contemporáneos, las especies se agruparían de forma jerárquica en Clases, Órdenes, Familias, Géneros y Especies, y lo harían en función de sus similitudes morfológicas. En cuanto a la nomenclatura, Linneo propuso que los nombres científicos estuvieran compuestos por el género al que pertenecía la especie, seguido por un epíteto específico que distinguiera a la especie en cuestión del resto de las de su género. Dicho epíteto específico suele ser una palabra que hace referencia a algún rasgo distintivo de la especie, ya sea de su apariencia, distribución o comportamiento. Este sistema binomial, formado por la combinación de género más epíteto específico, permitió, por su sencillez, unificar la nomenclatura científica en un sistema simple y estandarizado.
Aunque Linneo diseñó su sistema pensando fundamentalmente en las plantas, también lo aplicó exitosamente a los animales, si bien en este caso fueron necesarios algunos reajustes posteriores. En total nombró y clasificó unas 6.000 especies de plantas y 8.000 de animales, lo que da una idea del volumen de su obra. La importancia de su trabajo se reconocía ya en su época, hasta el punto de que se hizo popular el lema Deus creavit, Linnaeus disposuit, “Dios creó, Linneo puso orden”.
En busca del criterio adecuado
Pese a la gran utilidad del sistema de nomenclatura y clasificación ideado por Linneo, éste no impedía que siguieran surgiendo ciertos problemas. Por ejemplo, pese a que el sistema linneano buscaba que cada especie tuviera un único nombre científico, no podía evitar que dos taxónomos, trabajando de manera independiente, describieran la misma especie y le atribuyeran nombres diferentes (sinonimias). Y esto era algo que, en una época donde la difusión de la información era lenta y deficiente, ocurría muy frecuentemente. Para resolver estas situaciones, originariamente se aplicaba el Principio de Autoridad, según el cual cuando una especie recibía dos nombres, debía aceptarse aquel que considerara adecuado el mayor especialista en ese campo. Como puede imaginarse, esto conducía a frecuentes disputas, pues diferentes taxónomos podían considerarse a sí mismos como “máximos especialistas”. Con la creación del Código Internacional de Nomenclatura Zoológica, el principio de autoridad se sustituyó por el Principio de Prioridad, según el cual, en igualdad de condiciones, debía respetarse el primer nombre asignado a la especie o taxón.
Este reconocimiento a la prioridad se manifiesta en el hecho de que, junto al nombre científico completo de una especie, se suela añadir el nombre de quien la describió por primera vez y el año en que lo hizo. Si echamos una ojeada a los nombres científicos de muchas de las especies que nos rodean, comprobaremos cuántas de ellas llevan el nombre de Linneo (Linnaeus, o su inicial, L.), lo que nos da una idea de la titánica labor del científico sueco. Pero otro problema más importante es el de qué criterios elegir para definir cada grupo (taxón). En el caso de las plantas, Linneo tuvo la intuición de elegir la morfología de los órganos sexuales de la flor para definir los grandes grupos vegetales, un criterio que luego se reveló como muy útil y estable. Sin embargo, el caso de los animales ha sido bien diferente, pues elegir qué caracteres son más adecuados para determinar la formación de taxones resultó más complejo. Y es en este punto donde la Taxonomía se encuentra con la Filogenética, que es el estudio de las relaciones evolutivas entre los seres vivos.
La concepción moderna de la taxonomía busca que las clasificaciones de los seres vivos reflejen, lo más fielmente posible, su parentesco evolutivo. Si visualizamos la evolución de las especies como un árbol, las ramas más gruesas serían los taxones superiores (Clases, Órdenes), que se irían ramificando en Familias, Géneros y, finalmente, llegarían al nivel de Especie, que estarían representadas por las hojas en el extremo final de estas metafóricas ramas. La taxonomía debería entonces agrupar las especies en géneros coherentes con esta historia evolutiva. Así, las especies de un mismo género deberían estar más emparentadas entre sí que con otras incluidas en géneros diferentes; a su vez, los géneros incluidos en cada familia deberían compartir entre sí una historia común más amplia que con géneros de familias diferentes, y sucesivamente así a niveles taxonómicos cada vez mayores. La teoría es bastante sencilla, ¿pero cómo se logra esto? ¿cómo decidir qué caracteres reflejan mejor las relaciones evolutivas entre especies, géneros y demás niveles taxonómicos?
Por ejemplo, uno podría clasificar las aves en función de la forma del pico, de ciertos rasgos de su esqueleto o del color del plumaje. Sin embargo, no todos estos caracteres tienen el mismo valor, ya que unos son mucho más resistentes al cambio evolutivo que otros, y no todos nos permiten reconstruir las relaciones de parentesco entre especies de manera igualmente fiable. Por ejemplo, el color del plumaje, por sí mismo, tendría poca utilidad para distinguir taxones superiores al de especie, ya que aves de órdenes o familias muy poco emparentados pueden desarrollar un mismo color de plumaje debido, por ejemplo, a una necesidad común de ocultarse ante los depredadores o por el mero hecho de vivir en ambientes similares. Esos caracteres que se presentan en grup os diferentes y que no se deben a la herencia por un pasado común sino a una convergencia evolutiva, se denominan analogías. Por otro lado, existen caracteres que, aunque puedan expresarse con ciertas modificaciones entre grupos distintos, tienen un origen evolutivo común. Este es el caso, por ejemplo, de la aleta de los pingüinos y el ala del resto de las aves. Estos caracteres se denominan homologías.
Las primeras clasificaciones de Linneo y sus coetáneos no tenían en cuenta estos criterios, pues las teorías evolutivas tardarían aún décadas en entrar con fuerza en escena. Pero el gran auge de la Anatomía Comparada, entre finales del siglo XVIII y principios del XIX, ayudó a considerar este tipo de cuestiones, con lo que buena parte de las clasificaciones originales fueron revisadas y corregidas teniendo en cuenta nuevos criterios. Los árboles evolutivos de los diferentes taxones se han ido modificando desde entonces a medida que se han clarificado las relaciones entre especies. La filogenética tradicional se ha basado fundamentalmente en caracteres anatómicos, pero el desarrollo de la biología molecular, a finales del siglo XX, ha cambiado rápidamente el arsenal de herramientas, yendo desde el análisis de proteínas al de los patrones cromosómicos y, en los últimos años, la secuenciación del ADN. ¿En qué forma influyen todos estos cambios en la taxonomía a los nombres científicos de las especies? Como dijimos al principio, el sistema de nomenclatura binomial requiere que todas las especies de un mismo género deben compartir nombre genérico y variar sólo en el epíteto específico.
Cuando los reajustes en la taxonomía implican reubicar especies de unos géneros a otros, o incluso crear géneros nuevos, los nombres de las especies deben cambiar consecuentemente para ajustarse a la nueva situación. Pues bien, ahora que tenemos una idea de cómo funciona la nomenclatura zoológica y la taxonomía, podemos volver a la pregunta que nos planteábamos al principio: ¿cuál es el nombre científico correcto del diamante mandarín?
El descubrimiento del diamante mandarín
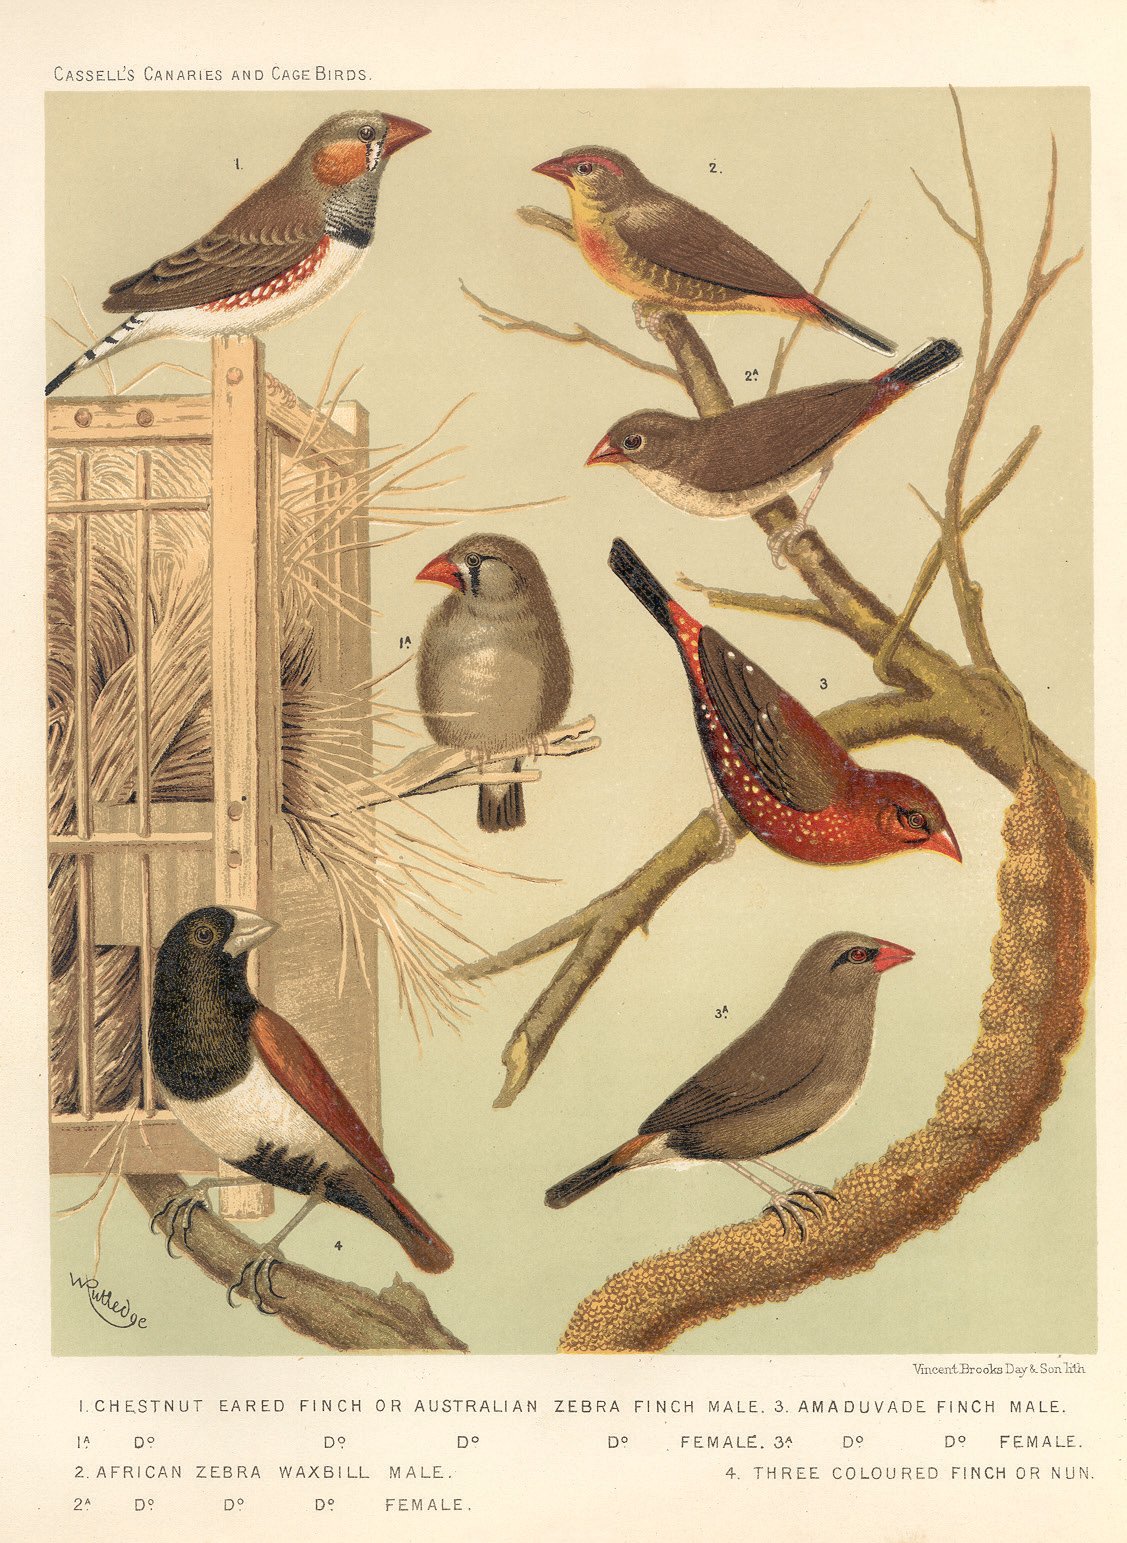
El diamante mandarín fue descubierto para la ciencia a principios del siglo XIX, gracias a una de las expediciones Europeas mejor financiadas de su época. La misión, auspiciada por el gobierno de Napoleón, zarpó en 1800 con el objeto de explorar las costas de Australia. Más allá de los intereses geopolíticos, el carácter científico de la expedición quedaba de manifiesto en los nombres de las dos naves que la formaban: Géographe y Naturaliste. Tras mapear la costa oeste del continente Australiano, la expedición visitó la isla de Timor, donde recolectó los primeros ejemplares de diamante mandarín, que pasaron a formar parte de la inmensa colección de más 100.000 especímenes zoológicos que llevaron de vuelta a Francia para ser estudiados y clasificados por los científicos. Fue el ornitólogo y taxónomo Louis Jean Pierre Vieillot quien, en 1817, realizó la primera descripción y clasificación de la especie, a la que incluyó en el mismo género que los pinzones europeos y la denominó Fringilla guttata (“guttata” significa “con motas”, en referencia al moteado del plumaje de los flancos). Sin embargo, unos años más tarde, el alemán Heinrich G. L.
Reichenbach repararía en el error y ubicaría al diamante mandarín en un nuevo género, Taeniopygia (de “tainia-”, bandas o rayas, y “-pyge”, cola), con lo que pasaría a denominarse Taeniopygia guttata (Vieillot, 1817).
Lo habitual en la época era que los ejemplares capturados fueran disecados en el lugar de origen y remitidos a Europa, donde los taxónomos realizaban su labor a partir de las muestras recibidas.. Sin embargo, hay quien sostiene que Vieillot pudo tener acceso a algunos ejemplares de diamante mandarín mantenidos con vida hasta el regreso de la expedición a Francia, ya que poco antes de describir por primera vez y clasificar la especie, hizo algunas referencias vagas a su comportamiento en su obra Les Oiseaux Chanteurs, publicada en 1809. En realidad, lo más probable es que para ello se basara en las observaciones de campo de alguno de los naturalistas de la expedición (de la que él no formó parte). Pero si es cierto que algunos ejemplares sobrevivieron a los avatares de una travesía en barco desde el archipiélago malayo hasta Francia, circunnavegando el continente africano -no existía aún el Canal de Suez-, debió tratarse de una hazaña memorable.
En 1864, Alfred Russell Wallace, quien propuso junto a Darwin la teoría de la evolución por selección natural, también capturó ejemplares de diamante mandarín en Timor durante sus famosas expediciones por el archipiélago malayo. Al desconocer el trabajo de Vieillot, Wallace bautizó a la especie como Amadina insularis. Irónicamente, los ejemplares empleados por Vieillot y Wallace para describir la especie no pertenecen a la variedad más conocida y extendida hoy día, sino a la subespecie insular, el diamante mandarín de Timor. La subespecie continental, que es la más familiar para nosotros y de la que derivan todos los morfos seleccionados en cautividad, no fue descrita hasta 1837 por el eminente ornitólogo John Gould (exacto, el mismo que describió del diamante de Gould). Gould probablemente también desconocía el trabajo de Vieillot, por lo que considerólos ejemplares procedentes de Australia como una nueva especie para la ciencia a la que denominó Amadina castanotis (de “castan-“, castaño, y “-otis”, oreja).
Ambas subespecies son muy similares, si bien el diamante de Timor es más pequeño y los machos apenas muestran el característico bandeado del pecho que da al diamante mandarín su nombre en inglés, zebra finch.
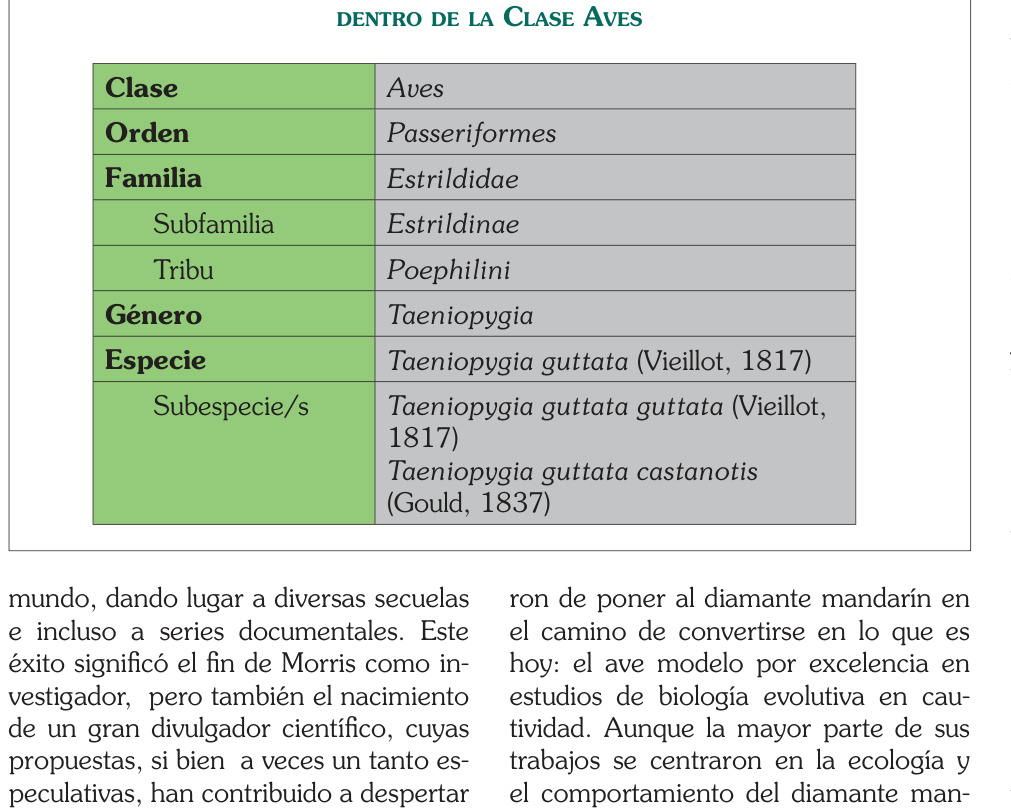
Revisiones posteriores del grupo, ya con una visión más global de las diferentes especies de estríldidos descubiertas, fijaron el estatus del diamante mandarín como una única especie, Taeniopygia guttata, compuesta por dos subespecies: el diamante mandarín de Timor (Taeniopygia guttata guttata) y el diamante mandarín australiano (Taeniopygia guttata castanotis). Se respetaba así la prioridad de Vieillot al otorgar el epíteto específico elegido por él para designar a la subespecie nominal -pese a no ser la más ampliamente extendida- y el de Gould para la continental. Se alcanzaba de esta forma un consenso que duraría hasta mediados del siglo XX, cuando los taxónomos volvieron a ocuparse de los estríldidos con renovado brío.
Poephila entra en escena
En 1940, el ornitólogo Jean T. Delacour renombró al diamante mandarín como Poephila guttata, al considerar las similitudes de esta especie con otras de dicho género. La nueva clasificación propuesta por Delacour consideraba, dentro de la familia Estrildidae, una subfamilia Estrildinae, que a su vez se dividía en tres tribus (un nivel taxonómico intermedio entre subfamilia y género): Estrildini, Amadini y Erythrurini, conteniendo ésta última a todos los estrildinos de Australasia, incluido el diamante mandarín. Los Erythrurini se dividirían en tres géneros, Zonoaeginthus, Erythrura y, finalmente, Poephila, donde el diamante mandarín compartía género con el diamante de Bichenov, el diamante de cola corta o el diamante de Gould entre otros. De hecho, todavía hoy, algunas publicaciones sobre el diamante de Gould siguen recogiendo esta antigua clasificación de Delacour y lo denominan Poephila gouldiae. Como vemos, la controversia en cuanto al nombre no es exclusiva del diamante mandarín.
En taxonomía a menudo se ha dado gran importancia a los rasgos anatómicos que se expresan en las primeras fases del desarrollo, al considerarse que éstos son menos sensibles al cambio evolutivo y por tanto reflejan más fielmente la filogenia de las especies. Así, para su clasificación de los estrildinos, Delacour no sólo se basó en rasgos del plumaje adulto, sino que dio bastante importancia a las características marcas del paladar de los pollos de cada especie (ver Ornitología Práctica 68: 4-5). Pero además, y de acuerdo con el incipiente auge de la Etología -el estudio del comportamiento animal-, apoyó su taxonomía en la expresión de ciertos patrones comportamentales, como el de construcción del nido. Delacour concedió, en cambio, una importancia secundaria a caracteres como la coloración del pico o las patas, o las fórmulas alares o caudales (un conjunto de medidas que describen la forma del ala y la cola).
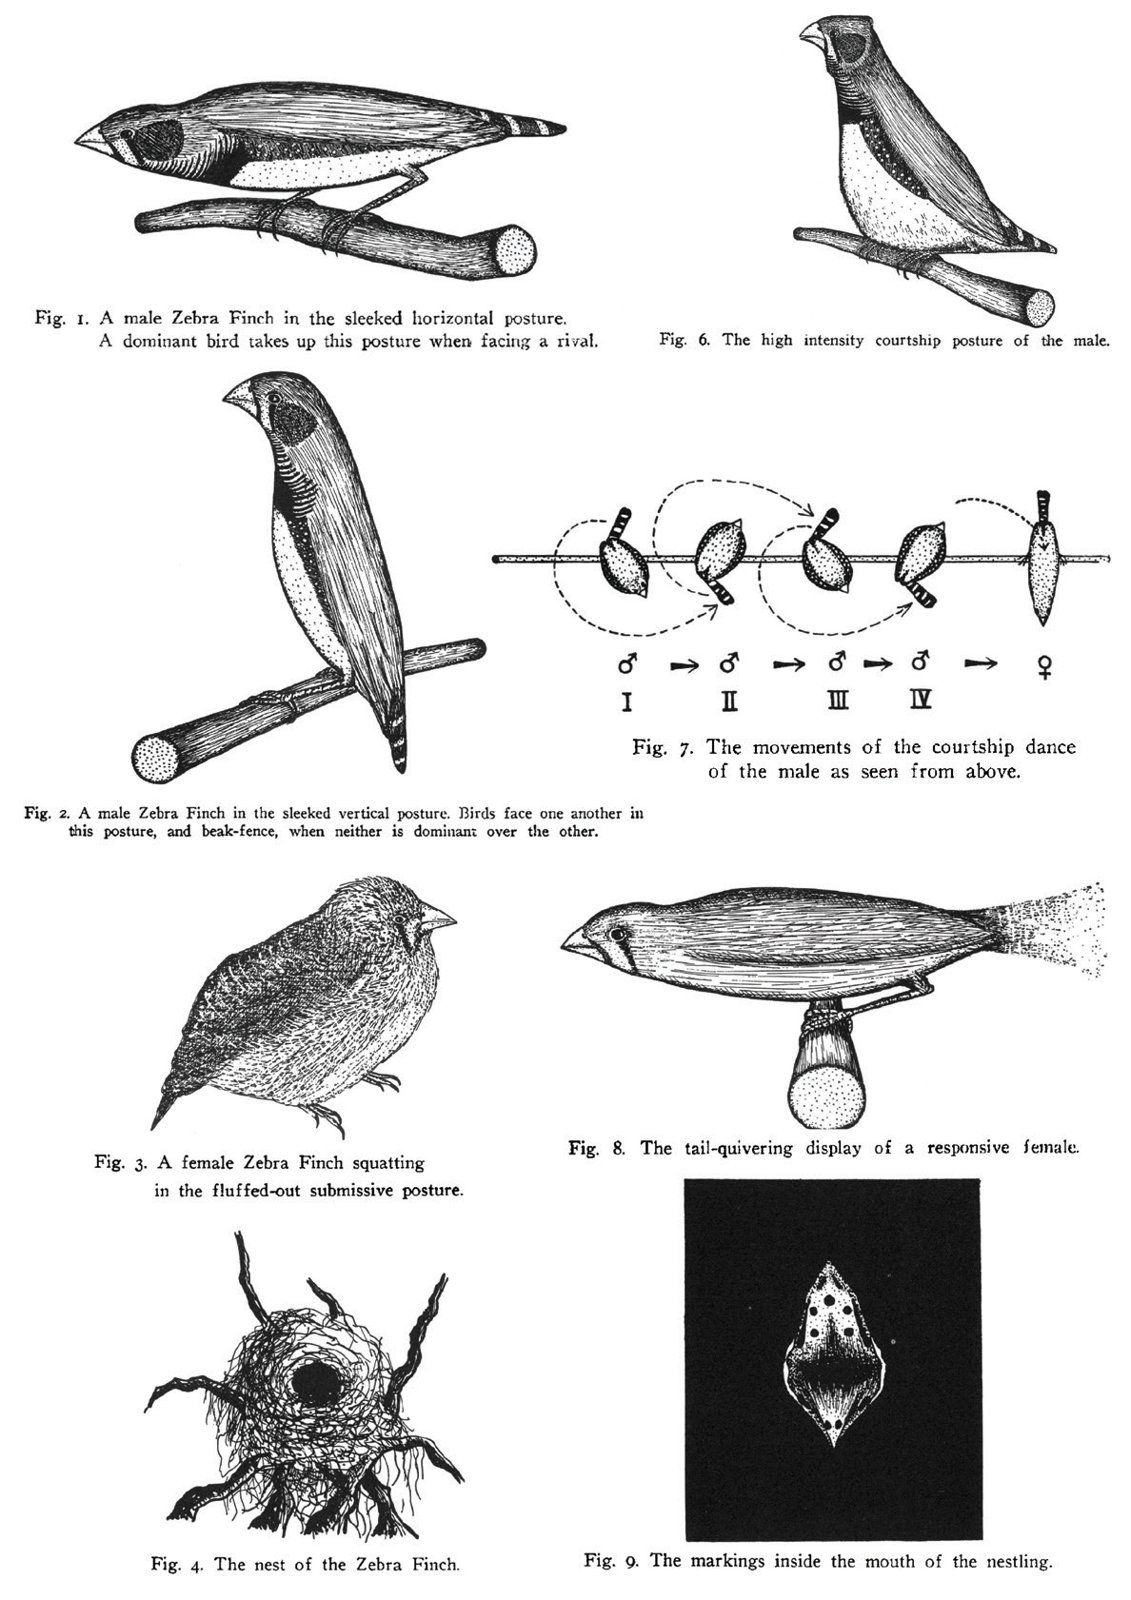
Los rasgos comportamentales ganaron peso en las filogenias y las taxonomías de mediados del siglo XX, en buena medida por el influjo de Konrad Lorenz y Nikko Timbergen, quienes a la postre recibirían, junto a Karl von Frisch, el Premio Nobel de Medicina por sus estudios sobre comportamiento animal. Precisamente fue un discípulo de Nikko Timbergen, Desmond Morris, quien revisó las relaciones taxonómicas de los estríldidos teniendo en cuenta criterios etológicos. Aunque, en lo que respecta al diamante mandarín, Morris no promovió cambios muy profundos, sí propuso desplazarlo de un subgénero a otro dentro de Poephila. La que sí fue una de las principales contribuciones de Desmond Morris al estudio del diamante mandarín fue la publicación del primer estudio completo y riguroso del comportamiento de la especie, publicado en la revista Behavior, en 1954. Aunque el diamante mandarín se venía criando en cautividad desde hacía un siglo, el trabajo de Morris sentó las bases para potenciar el empleo de esta especie en posteriores trabajos científicos en cautividad.
Sin embargo, no serían sus trabajos con el diamante mandarín los que lanzarían a la fama a Desmond Morris, sino algo bien diferente. En 1967, Morris publicó El Mono Desnudo, un libro de divulgación científica donde se reinterpretaba el comportamiento humano desde un punto de vista evolutivo. El texto se convirtió en un best seller inmediato en todo el mundo, dando lugar a diversas secuelas e incluso a series documentales. Este éxito significó el fin de Morris como investigador, pero también el nacimiento de un gran divulgador científico, cuyas propuestas, si bien a veces un tanto especulativas, han contribuido a despertar el interés en el gran público por la etología y la teoría evolutiva. Además de los trabajos iniciales de Morris, fueron las investigaciones del alemán Klaus Immelmann, tanto en cautividad como en campo (fue pionero en el estudio de la especie en su hábitat original en Australia), las que acabaron de poner al diamante mandarín en el camino de convertirse en lo que es hoy: el ave modelo por excelencia en estudios de biología evolutiva en cautividad.
Aunque la mayor parte de sus trabajos se centraron en la ecología y el comportamiento del diamante mandarín, Immelmann también se ocupó de la taxonomía de la especie. Basándose en rasgos como la longitud de las supracobertoras caudales y el marcado dimorfismo sexual, Immelmann abogó por sacarlo del género Poephila. Sin embargo, su propuesta tuvo poco eco entre los taxónomos.
La biología molecular toma la palabra
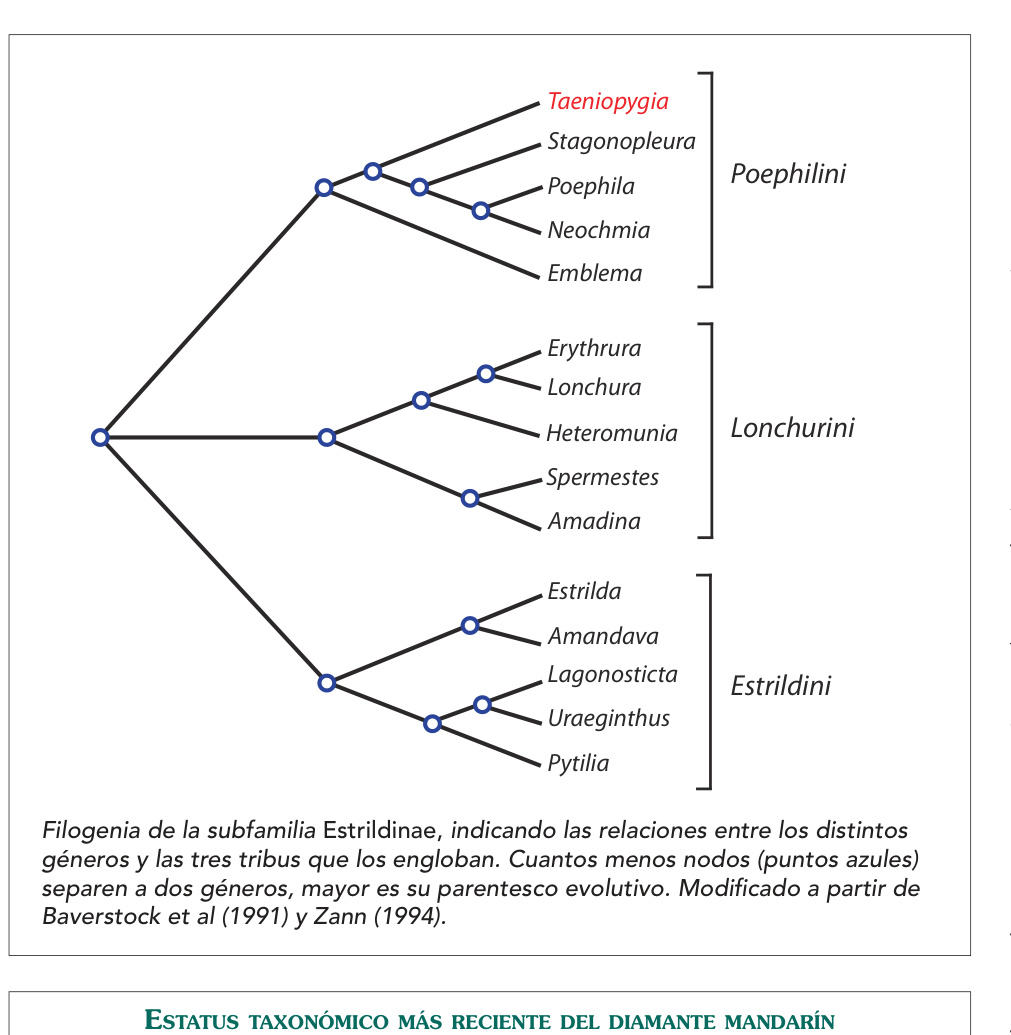
La turbulenta historia taxonómica de los estríldidos se ha mantenido hasta la publicación, en 1987, del trabajo de Les Christidis. Empleando técnicas como el análisis de proteínas por electroforesis y el estudio de ciertas características cromosómicas, Christidis establece tres grandes tribus dentro de la subfamilia estrildinae, a las que denomina Lonchurini, Estrildini y Poephilini. La tribu Poephilini, que es la que nos interesa aquí, comprendería los géneros Emblema, Neochmia, Poephila, Stegonopleura y Taeniopygia. Por último (y llegamos al final de este laberinto de nombres en latín), el género Taeniopygia estaría compuesto por dos únicas especies, el diamante de Bichenov (Taeniopygia bichenovii) y nuestro diamante mandarín (Taeniopygia guttata).
Conclusión
Por tanto, ¿cómo debemos llamar al diamante mandarín, Taeniopygia guttata o Poephila guttata? Las taxonomías más modernas indican que el nombre más adecuado es Taeniopygia guttata, pues esta clasificación refleja mucho mejor la filogenia de la especie. Y para más concreción, la subespecie que se ha extendido por todo el mundo como animal de jaula es la australiana, Taeniopygia guttata guttata, si bien los rasgos distintivos que llevaron a distinguirla de la otra subespecie a menudo se pierden en las distintas variedades domésticas. Pese a todo, el nombre Poephila guttata sigue apareciendo en la literatura. Si bien formalmente no podemos considerarlo incorrecto, pues se refiere inequívocamente a la misma especie y no hay posibilidad de error (es una sinonimia), implicaría que usamos una taxonomía anticuada, que no refleja las relaciones filogenéticas entre las diferentes especies. Así pues, Taeniopygia guttata queda como nombre más adecuado…. ¡a menos que la taxonomía y la filogenia se pronuncien de nuevo!
En la actualidad existen técnicas mucho más avanzadas y resolutivas que las empleadas para la última filogenia del grupo, como la secuenciación del ADN mitocondrial y nuclear. Por tanto, no es descartable que estas nuevas herramientas de análisis nos sugieran una historia evolutiva ligeramente diferente, que implique una clasificación más coherente que la actual. En ciencia nada es definitivo.
Texto e ilustración de cabecera: Lorenzo Pérez Rodríguez, Departamento de Ecología Evolutiva, Estación Biológica de Doñana (CSIC). Créditos particulares conservados en los recursos.


