| 1 3 | 2 4 5 |
|---|---|
| 44 | |
| Mutaciones |
Texto, criador y fotos: Roberto Jurado Medrán
Juez Nacional de Fauna Europea, Exóticos e Híbridos del CJA/CJ-COE
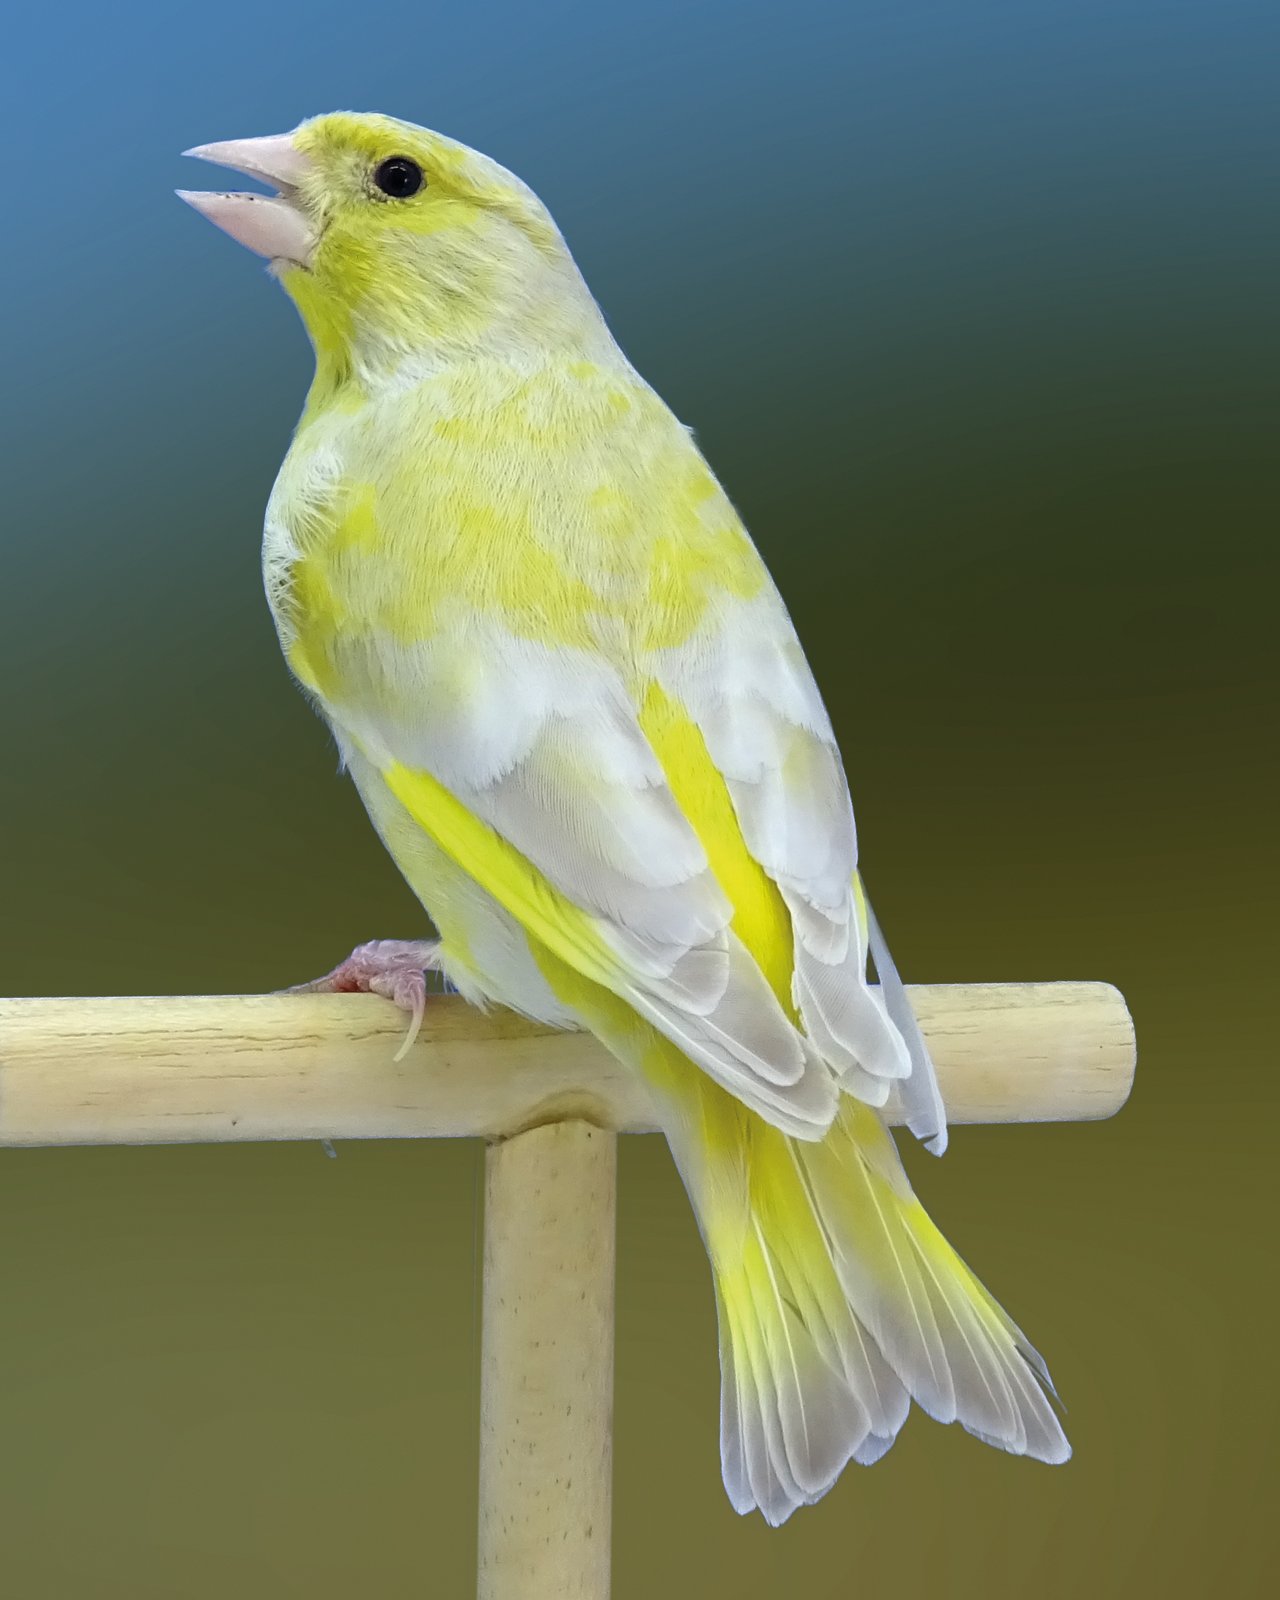
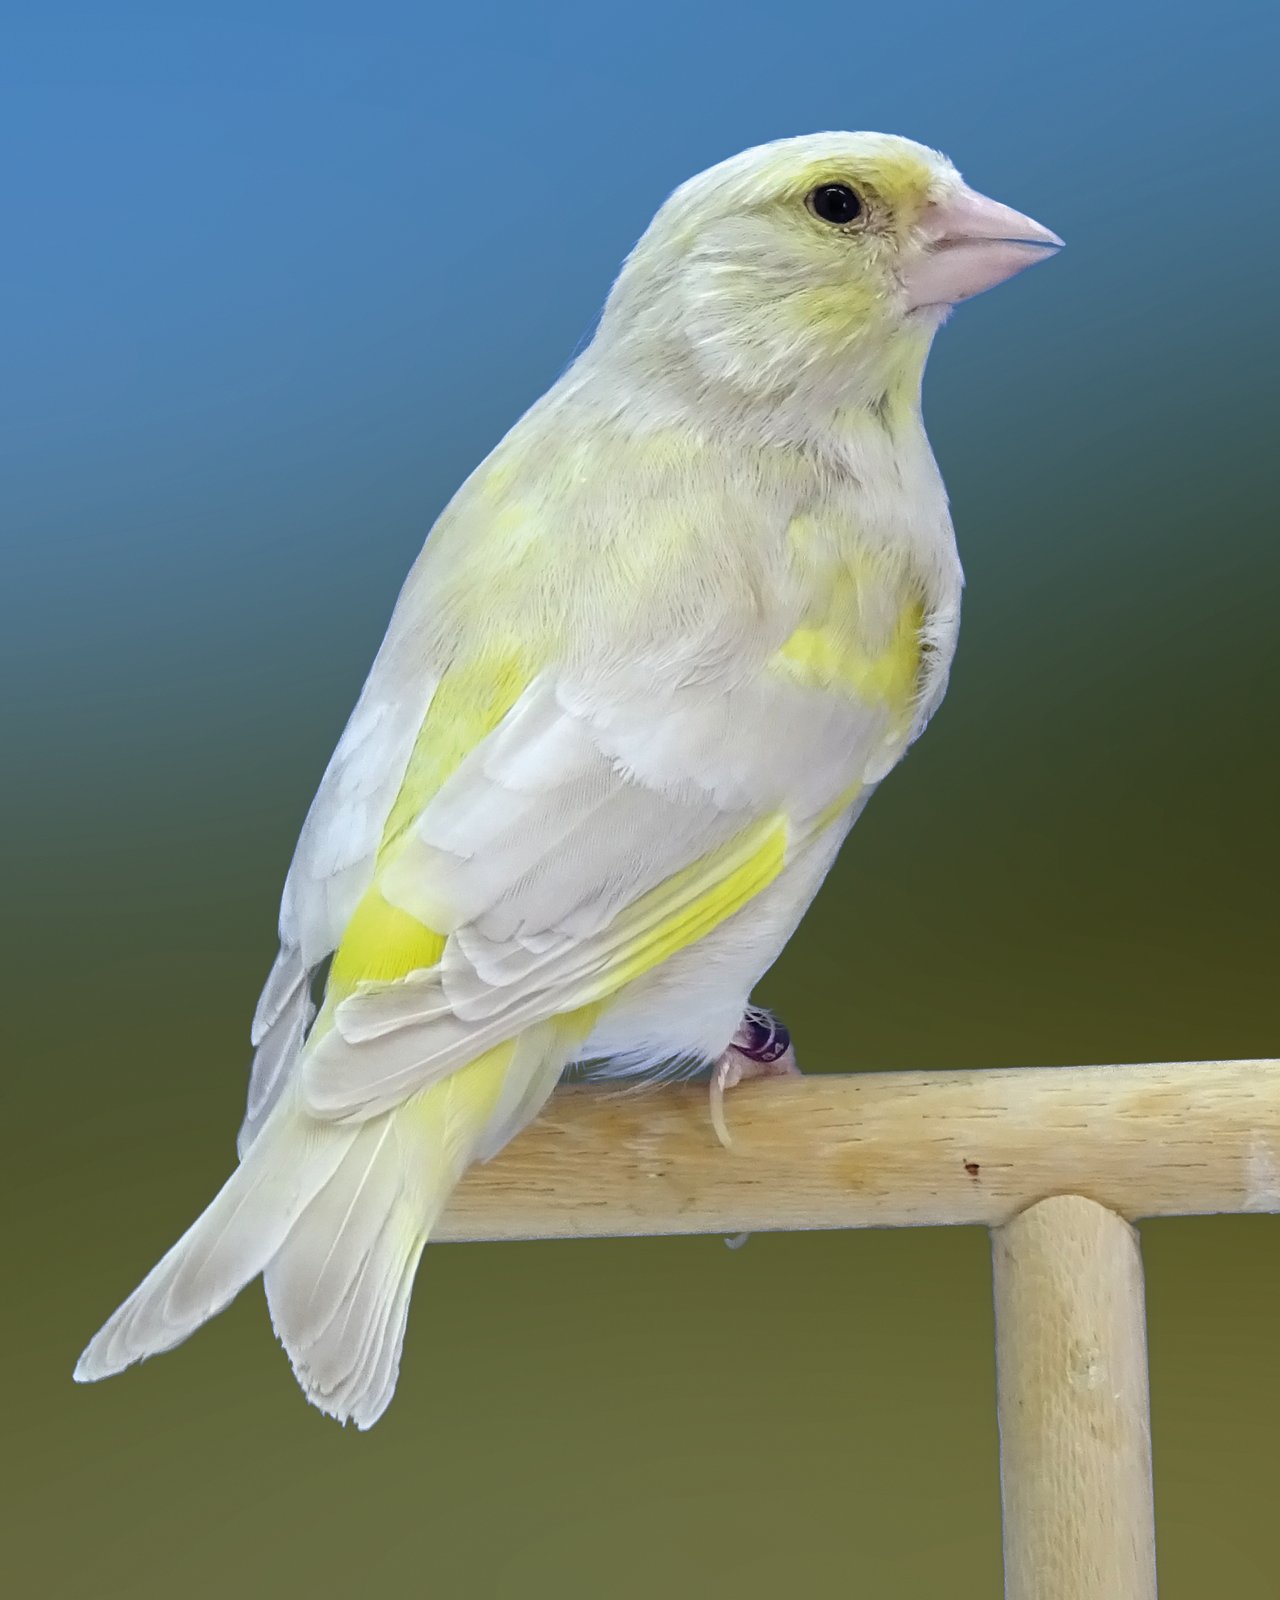
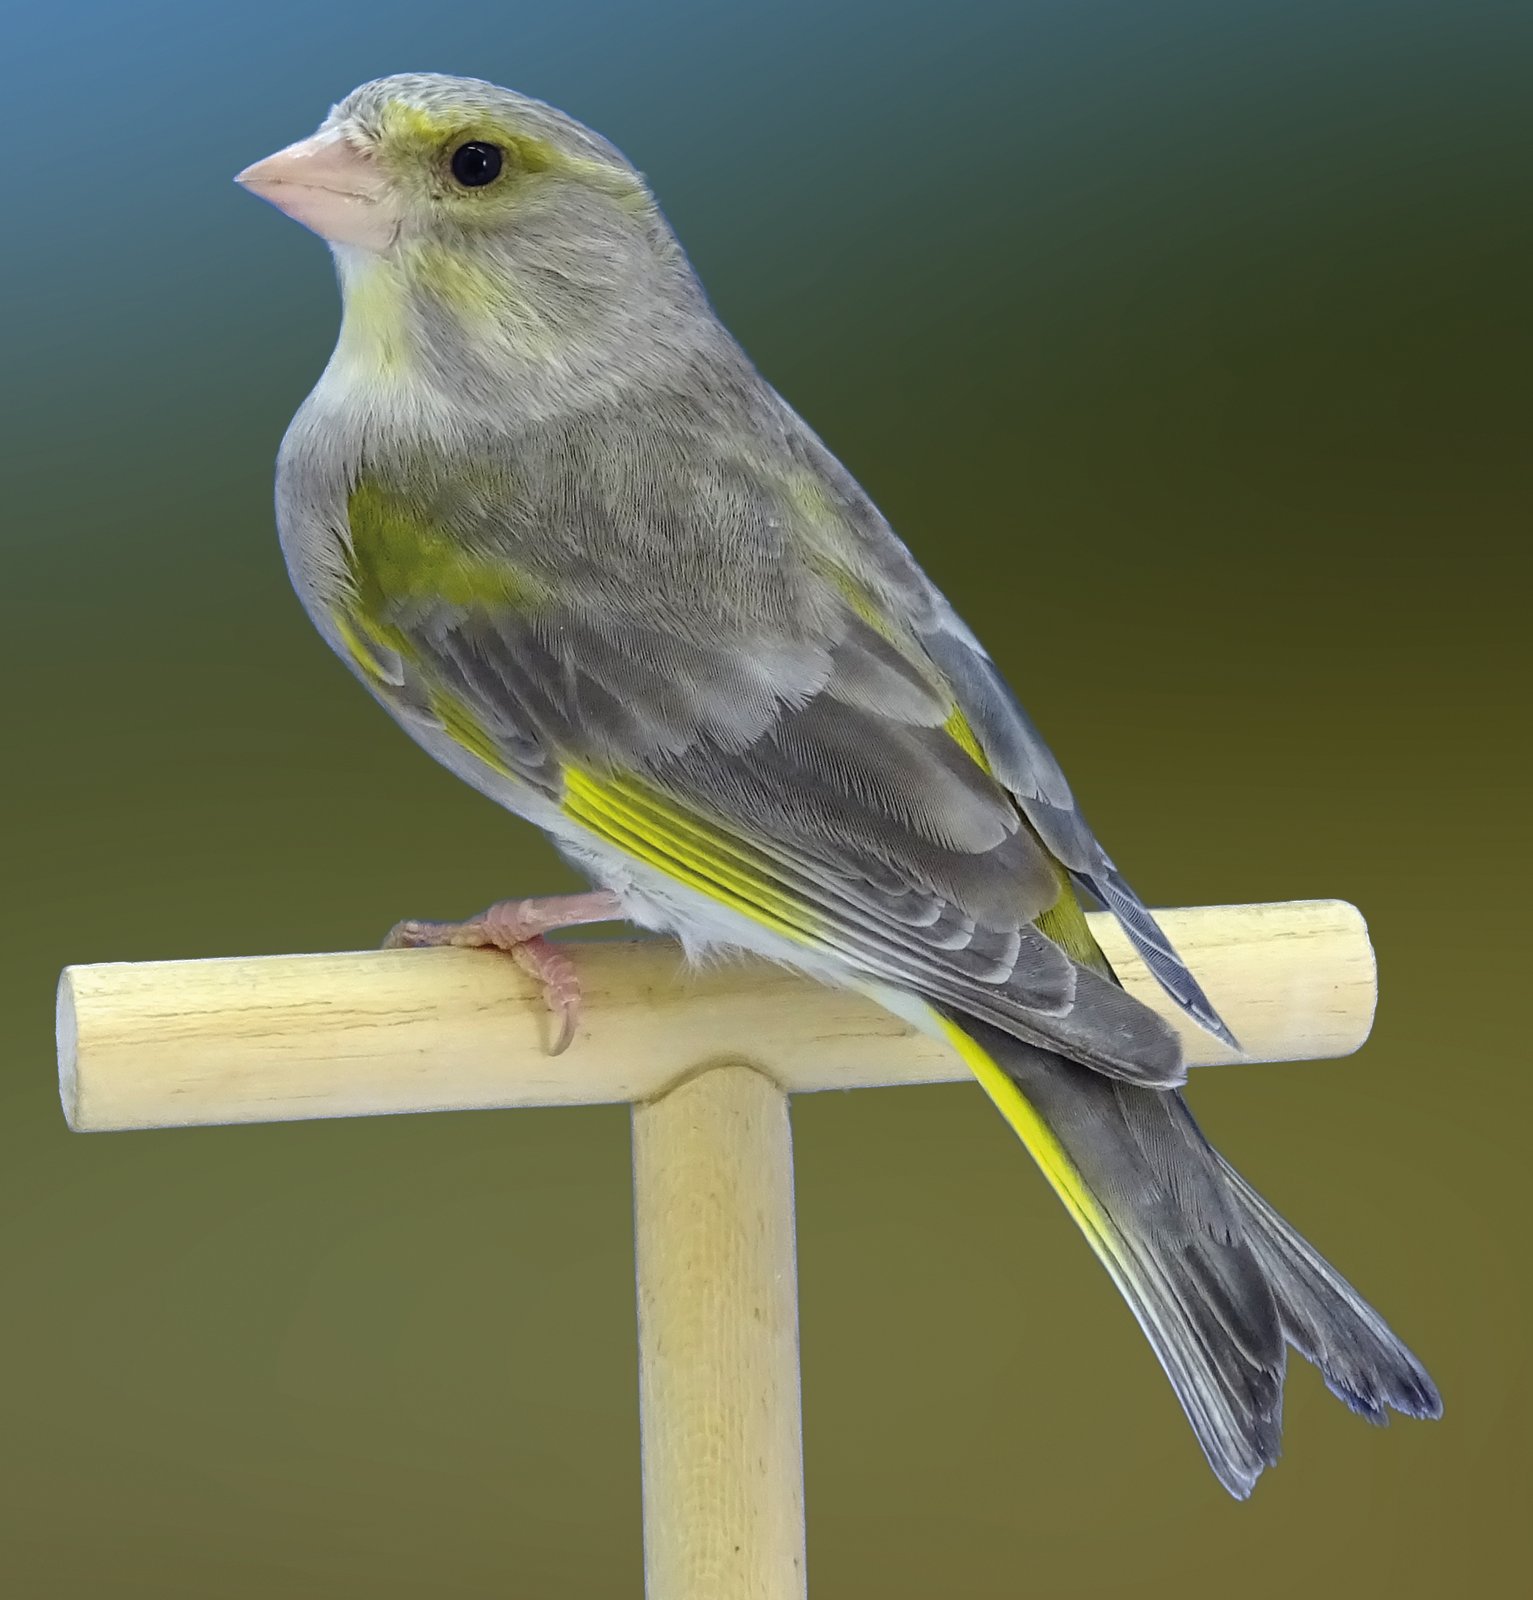
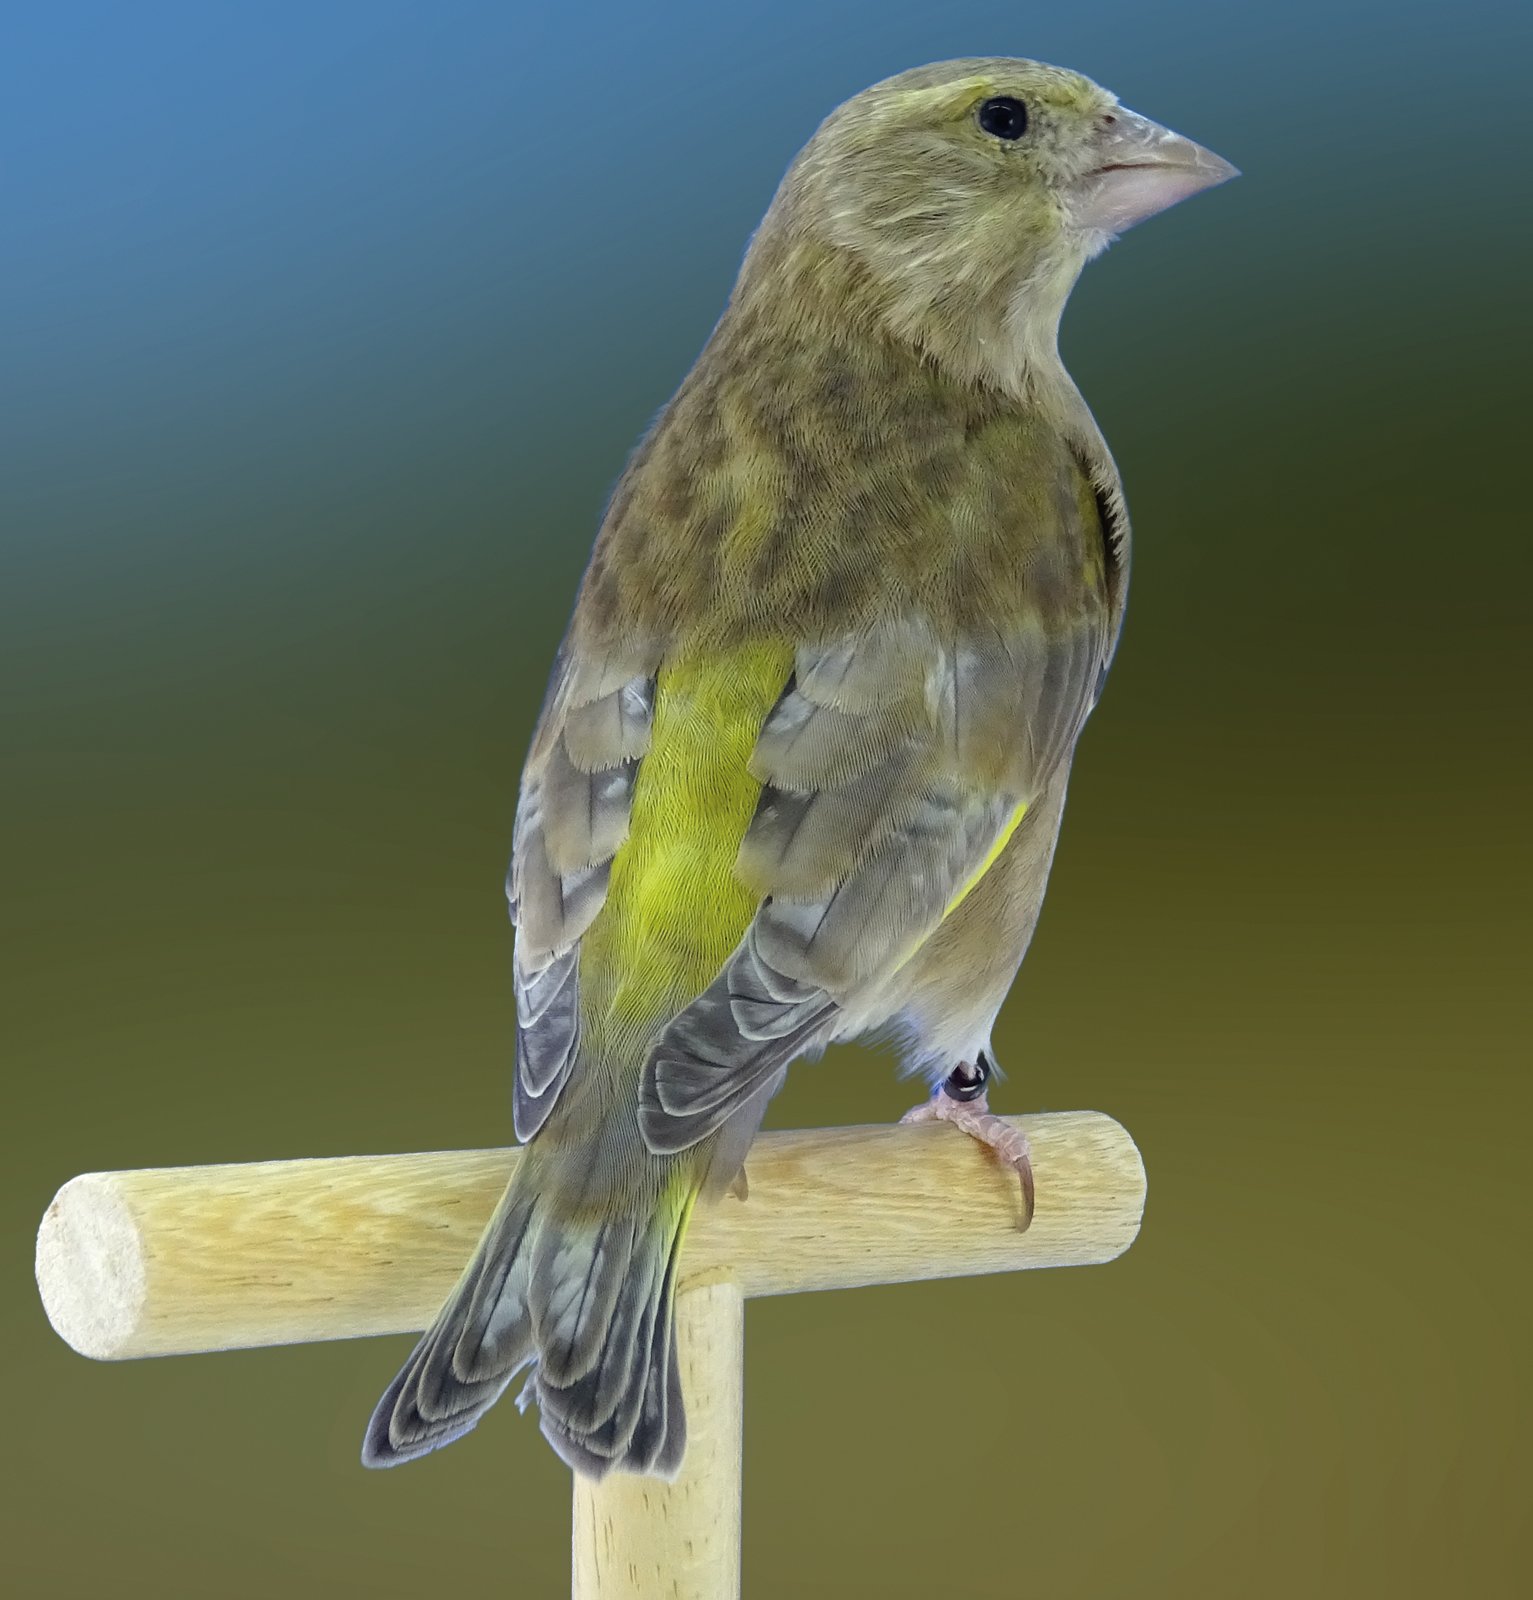
Introducción En la actualidad, es complicado poder encontrar sujetos pastel, más conocidos entre los aficionados como “verde pastel”. Son realmente muy pocos los aficionados que cultivan y seleccionan la mutación pastel en su forma sin combinar, igualmente ocurre con las combinaciones en bruno pastel e Isabela pastel. En cambio, cuando es combinada con el gen ágata, el número de adeptos aumenta exponencialmente. Tanto es así que en otros países de nuestro continente no logran identificarlo; en mi opinión, el auge de la cría del verderón ágata pastel sobre el pastel sin combinar ha logrado crear mucha disparidad de opiniones sobre este factor. Es por ello que mediante este artículo se pretende arrojar algo de luz al respecto. En este caso, al contar con una gran variedad de instantáneas, se espera poder ofrecer una visión más nítida del factor en cuestión. Tal y como dice el proverbio chino
“una imagen vale más que mil palabras” y es por ello que se aprovecharán todas estas fotografías para comparar y analizar varios fenotipos pastel en el verderón común. Además, a lo largo del articulo se procurará incluir orientaciones sobre la selección de dicho factor.
Nuevas referencias sobre el Verderón común Ya en 1758, Carlos Linneo, el padre de la taxonomía y de la nomenclatura binomial, catalogó esta especie con el nombre de “Loxia chloris”. Unos 250 años después, y gracias a los estudios de ADN mitocondrial, al parecer el nombre más concertado entre la comunidad de ornitólogos es “Chloris chloris”. También, siguiendo el listado del “Illustrated Checklist of the Birds of the World, Volumen 2: Passerines”, publicado en enero de 2017, podremos observar que aparecen reconocidas un total de diez subespecies para el verderón común. En mi anterior artículo del verderón ámbar (Ornitología Práctica, núm. 86) cito desde otro listado que son seis las subespecies que reconoce; en este más reciente listado se incluyen la ssp. harrisoni, ssp. muehlei, ssp madaraszi y la ssp. bilkevitchi. - Chloris chloris harrisoni: Gran Bretaña (excepto en el norte de Escocia) e Irlanda. - Chloris chloris muehlei: Serbia, Macedonia, Rumania y sur de Moldavia hasta el este de Grecia, Chipre y oeste de Turquía. - Chloris chloris madaraszi: Córcega y Cerdeña. - Chloris chloris bilkevitchi: Sur de Ucrania (Crimea) hasta el este del Cáucaso, noreste de Turquía, norte de Irán y suroeste de Turkmenistán. El mundo de la ornitología cuenta, afortunadamente, con gran cantidad de estudiosos y aficionados admirables. Gracias a su actividad podemos lograr información sobre todas las especies de aves del planeta. Y lo más importante es que continuamente esta información aumenta o se actualiza de una manera envidiable. Los listados de aves con especies y subespecies son muy discutidos y ampliamente estudiados. Sin embargo, cuando nos adentramos en el estudio de los grupos taxonómicos más ramificados, en donde el número de subespecies que posee una especie es más que notable, nos encontramos con serias dificultades para lograr clasificar e identificar a cada sujeto. En un porcentaje más alto del deseado son considerados sujetos inclasificables; no debemos obsesionarnos con ello. Esto es algo habitual en los estudios de campo y en los aviarios deportivos. Debemos tener en cuenta que existe una línea muy delgada entre los conceptos de especie y subespecie. Las subespecies, tal y como su nombre indica, no son más que especies incipientes, con la suficiente diferenciación como para poder ser parcialmente distinguidas; aunque, entre ellas pueden emparentarse y producir descendencia viable y fértil. Por ello, si una especie es fácilmente identificable y goza de gran autodeterminación e identidad pasa casi automáticamente a ser considerada como una especie en sí misma. Con la intención de aportar más información sobre las diferencias entre las subespecies del verderón común remitimos a otra fuente: el “Handbook of the Birds of the World. volumen 15”. En dicho volumen se dan una serie de pinceladas sobre las distintas diferencias entre subespecies. En primer lugar, se describe a la subespecie nominal para luego describir, mediante comparaciones, las diferencias en el resto de subespecies catalogadas. Del citado texto podemos entrever lo siguiente: - la subespecie harrisoni es como la nominal, pero con la frente verde-amarillenta, la corona teñida de gris, las partes superiores verde oliva teñidas de un color parduzco, la rabadilla de un tono verde oliva pálido, con un tono verde oliva más uniforme abajo, con el vientre amarillo verdoso y los lados del pecho y los flancos teñidos de gris-brunáceo;
- la ssp. aurantiiventris es ligeramente más pequeña, de color verde y más brillante por arriba, ligeramente más brillante en la frente y el dorso, los bordes de las plumas de vuelo de un amarillo más brillante, y más brillante o más amarillenta en el vientre, con los lados del pecho y los flancos verde oliva; - la ssp. vanmarli es similar a la anterior, pero las partes superiores (incluida la rabadilla) más apagadas y con menos amarillo, la frente amarillo verdosa, las partes inferiores de color amarillento teñido de verde oliva, el vientre de un amarillo más brillante, y los flancos de un tono oliva más oxidados; - la ssp. voousi tiene pico más grande (más largo, más profundo y más ancho en la base) y es más pálida que la ssp. aurantiiventris, la rabadilla de un verde ligeramente más pálido, la frente amarillo verdosa, en las partes inferiores un pálido verde amarillento, más brillante en el vientre, la hembra tiene las partes superiores gris ceniza, teñidas de color brunáceo, las partes inferiores de color gris ceniza pálido, teñidas de color amarillo verdoso en la garganta y el vientre; - la ssp. madaraszi es de un tono más verde oscuro, con la frente menos amarillenta; - la ssp. chlorotica es parecida a ssp. aurantiiventris, de un amarillo verdoso brillante arriba, ligeramente más pálido en la frente y la rabadilla, la garganta y el vientre son amarillo brillantes, el pecho y los flancos de un verde amarillento; - la ssp. bilkevitchi difiere sutilmente del anterior (con dificultades para distinguirlo en el campo), de un amarillo ligeramente más brillante en las alas, en las remeras secundarias internas y las terciarias de un gris pálido (menos teñido de marrón), en las partes inferiores de un tono pálido o grisáceo, con menos amarillo; - la ssp. muehlei es dudosamente distinta de la nominal, con las partes superiores de un verde oliva uniforme, menos tintado de marrón, la frente de un amarillo verdoso, la rabadilla de un verde amarillento, también verde amarillento en las partes inferiores, ligeramente brillante en el vientre, con gris a los lados del pecho y en los flancos; - la ssp. turkestanica es más grande y ligeramente más pálida, la frente es más verde amarillenta que verde, las plumas de vuelo de un gris oxidado en los bordes y de un amarillo pálido en la base, por abajo es ligeramente más pálida o grisácea que la nominal, la hembra es más estriada en la parte superior que la hembra de la subespecie nominal (del Hoyo, Elliot & Christie, 2010). Para cerrar este denso apartado sobre las nuevas referencias de esta especie me gustaría incluir el significado del género que preside esta especie. El género “Chloris”, que incluye a varias especies de verderones, es una palabra que proviene del griego que significa “amarillo verdoso” o “verde pálido”(Jobling, 2010), haciendo referencia, en este caso, al color envolvente y característico de esta especie. Es importante conocer el origen de los nombres latinos que preceden a nuestros pequeños alados pues son una fuente fidedigna de información, que en determinados casos puede ser muy útil a nuestra afición.
El origen de la mutación Descubrir realmente el origen de una mutación en la fauna europea o en los exóticos es algo realmente complicado, principalmente porque hay muy poca documentación al respecto. Es habitual que estas historias de inicio suelan estar rodeadas de un poco de ensueño; tratando, a veces, a los primeros sujetos como quimeras, con un toque de utopía. Aunque realmente, en la mayoría de los casos, la historia tal y como es contada suele ser honesta y ajustada a la realidad. En este caso, la historia del origen del factor viene de la mano de José Antonio Abellán Baños y Alois Van Mingeroet que en sus libros “El Verderón Común y sus mutaciones“ y “Europese cultuurvogels en hun mutaties”, nos hablan del verdadero origen del factor pastel en el Verderón común. Antes de adentrarnos en el origen es interesante mencionar que a pesar de ser una mutación apodada entre los aficionados como “Pastel Belga” para poder distinguirla del Ala Gris, cuyo origen es Español. Realmente se trata de una mutación originada en los Países Bajos, más concretamente en la provincia de Zelanda, y no en Bélgica como se podría llegar a pensar. Al parecer fue presentada en el año 1994 a un concurso social una hembra “Ágata” que poseía un cierto apastelamiento, que llamó mucho la atención del juez Jan de Nijs. Por aquel entonces, no existían todavía las redes sociales, sólo era el comienzo de la era de internet; sin embargo, en nuestro mundo este tipo de noticias suelen correr como la pólvora y llegó rápidamente a oídos de Frans Pijnen de Ossendrecht y del famoso criador y juez Rudy Driesmans. Al parecer, y poco después, el criador de los Países Bajos falleció y entonces, a través de su viuda, Frans y Rudy pudieron adquirir todos sus verderones. Entre ellos se encontraba una hembra que Rudy identificó como “Ágata Pastel”. En aquel trato, al parecer se quedó con la hembra “especial” y su compañero Frans con todos los demás. En el primer año, la hembra fue acoplada con un macho ancestral, del que logró obtener 9 pichones, de los cuales cuatro resultaron ser machos. Dos de ellos fueron para Rudy y los otros dos para Frans. Fue entonces aquella hembra y sus cuatro retoños los que dieron origen a toda una cepa de verderones pastel. Es entonces como se logró afianzar la mutación y ya en 1997 salieron los primeros machos ágata pastel. Fue más de diez años después de su origen en agosto de 2007, que la COM reconoció y estandarizó dicha mutación (Alois Van Mingeroet, 2009). Aunque en la última edición del estándar para la fauna europea de 2012 a pesar de estandarizar las combinaciones ágata pastel, bruno pastel e isabela pastel la OMJ las considera “en estudio”, debido probablemente a los pocos ejemplares que se ven en los mundiales; asignándole, por tanto, estas denominaciones de manera provisional.
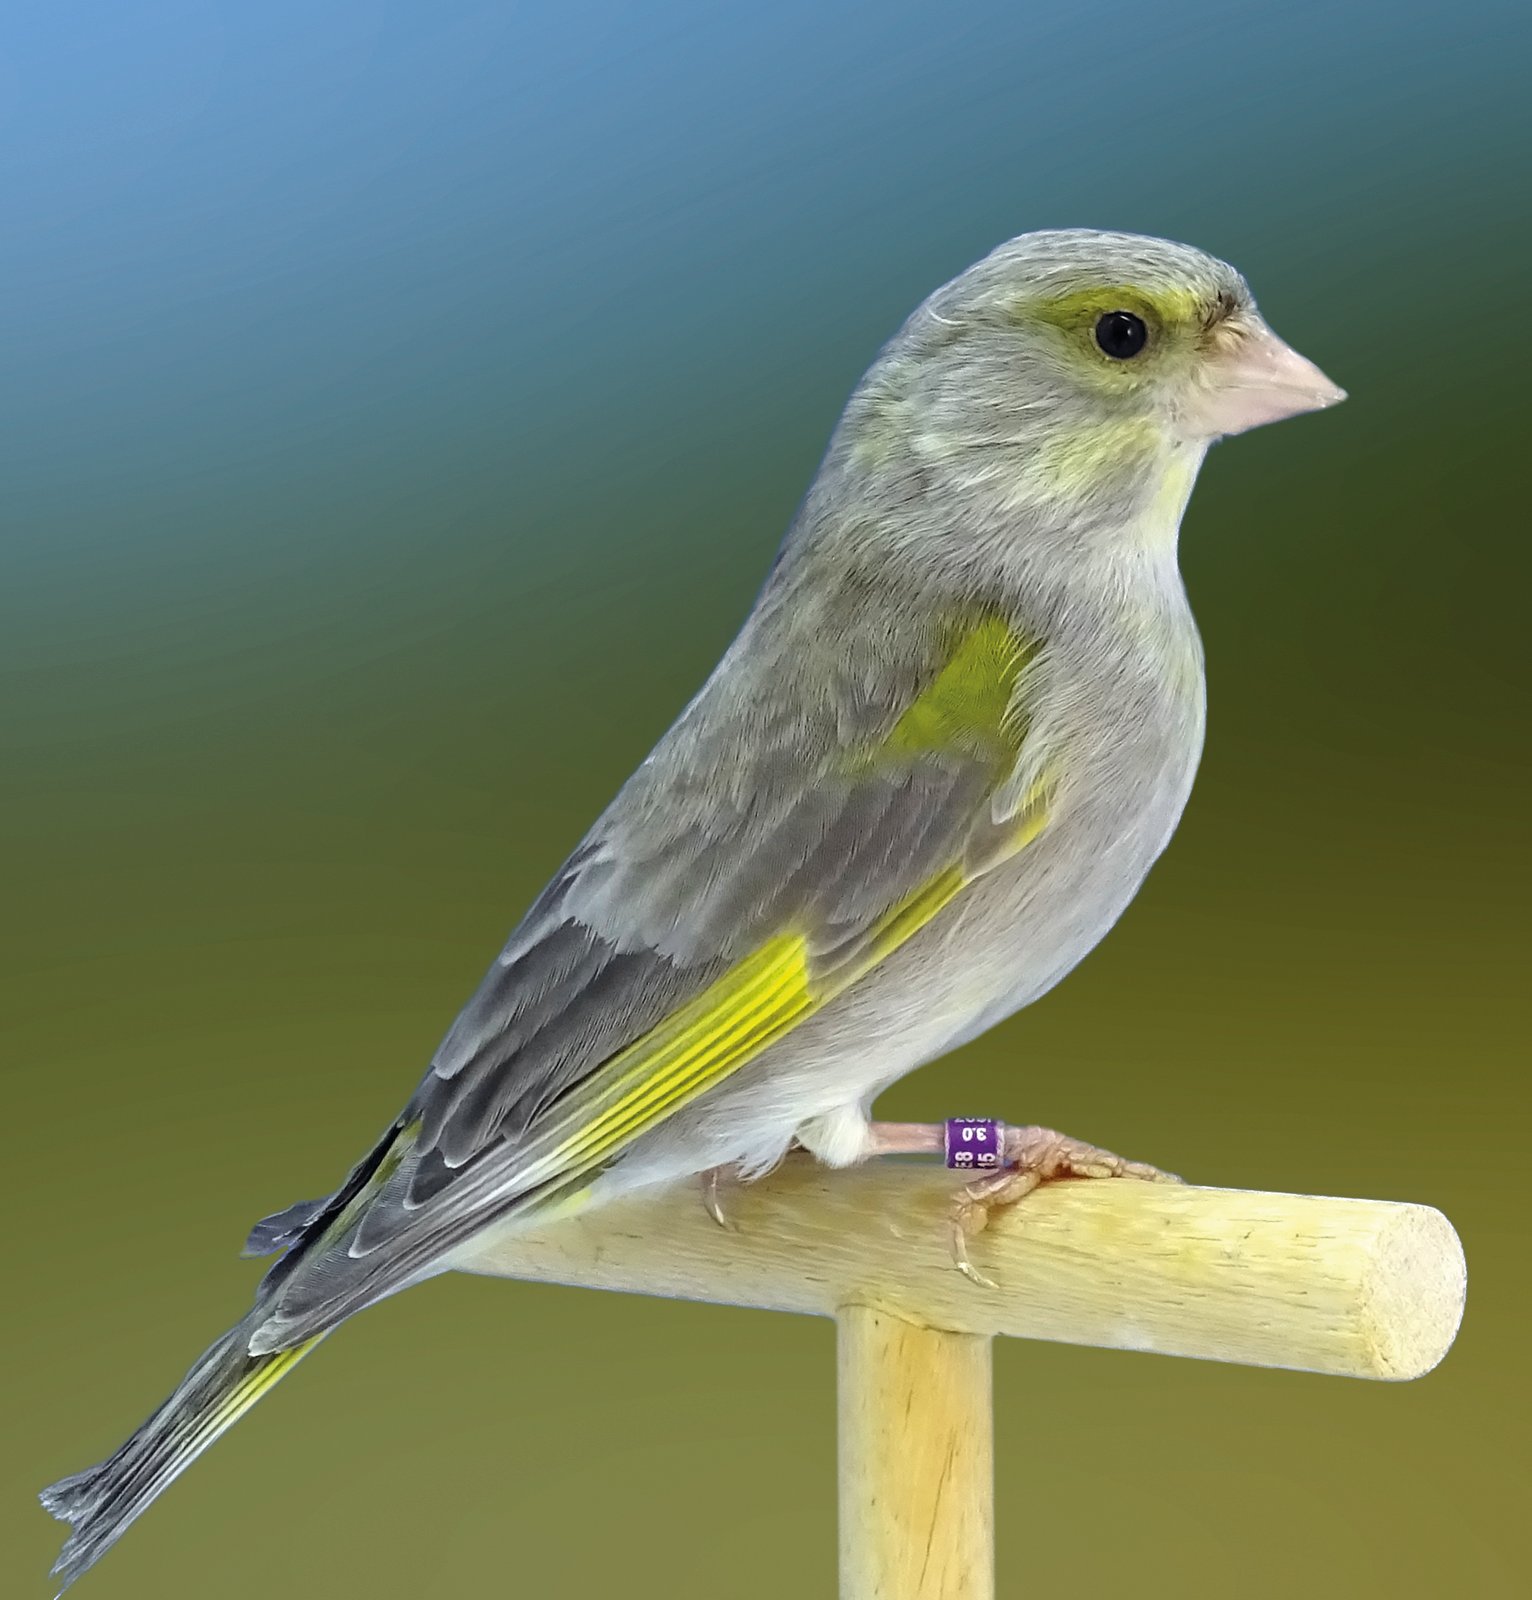
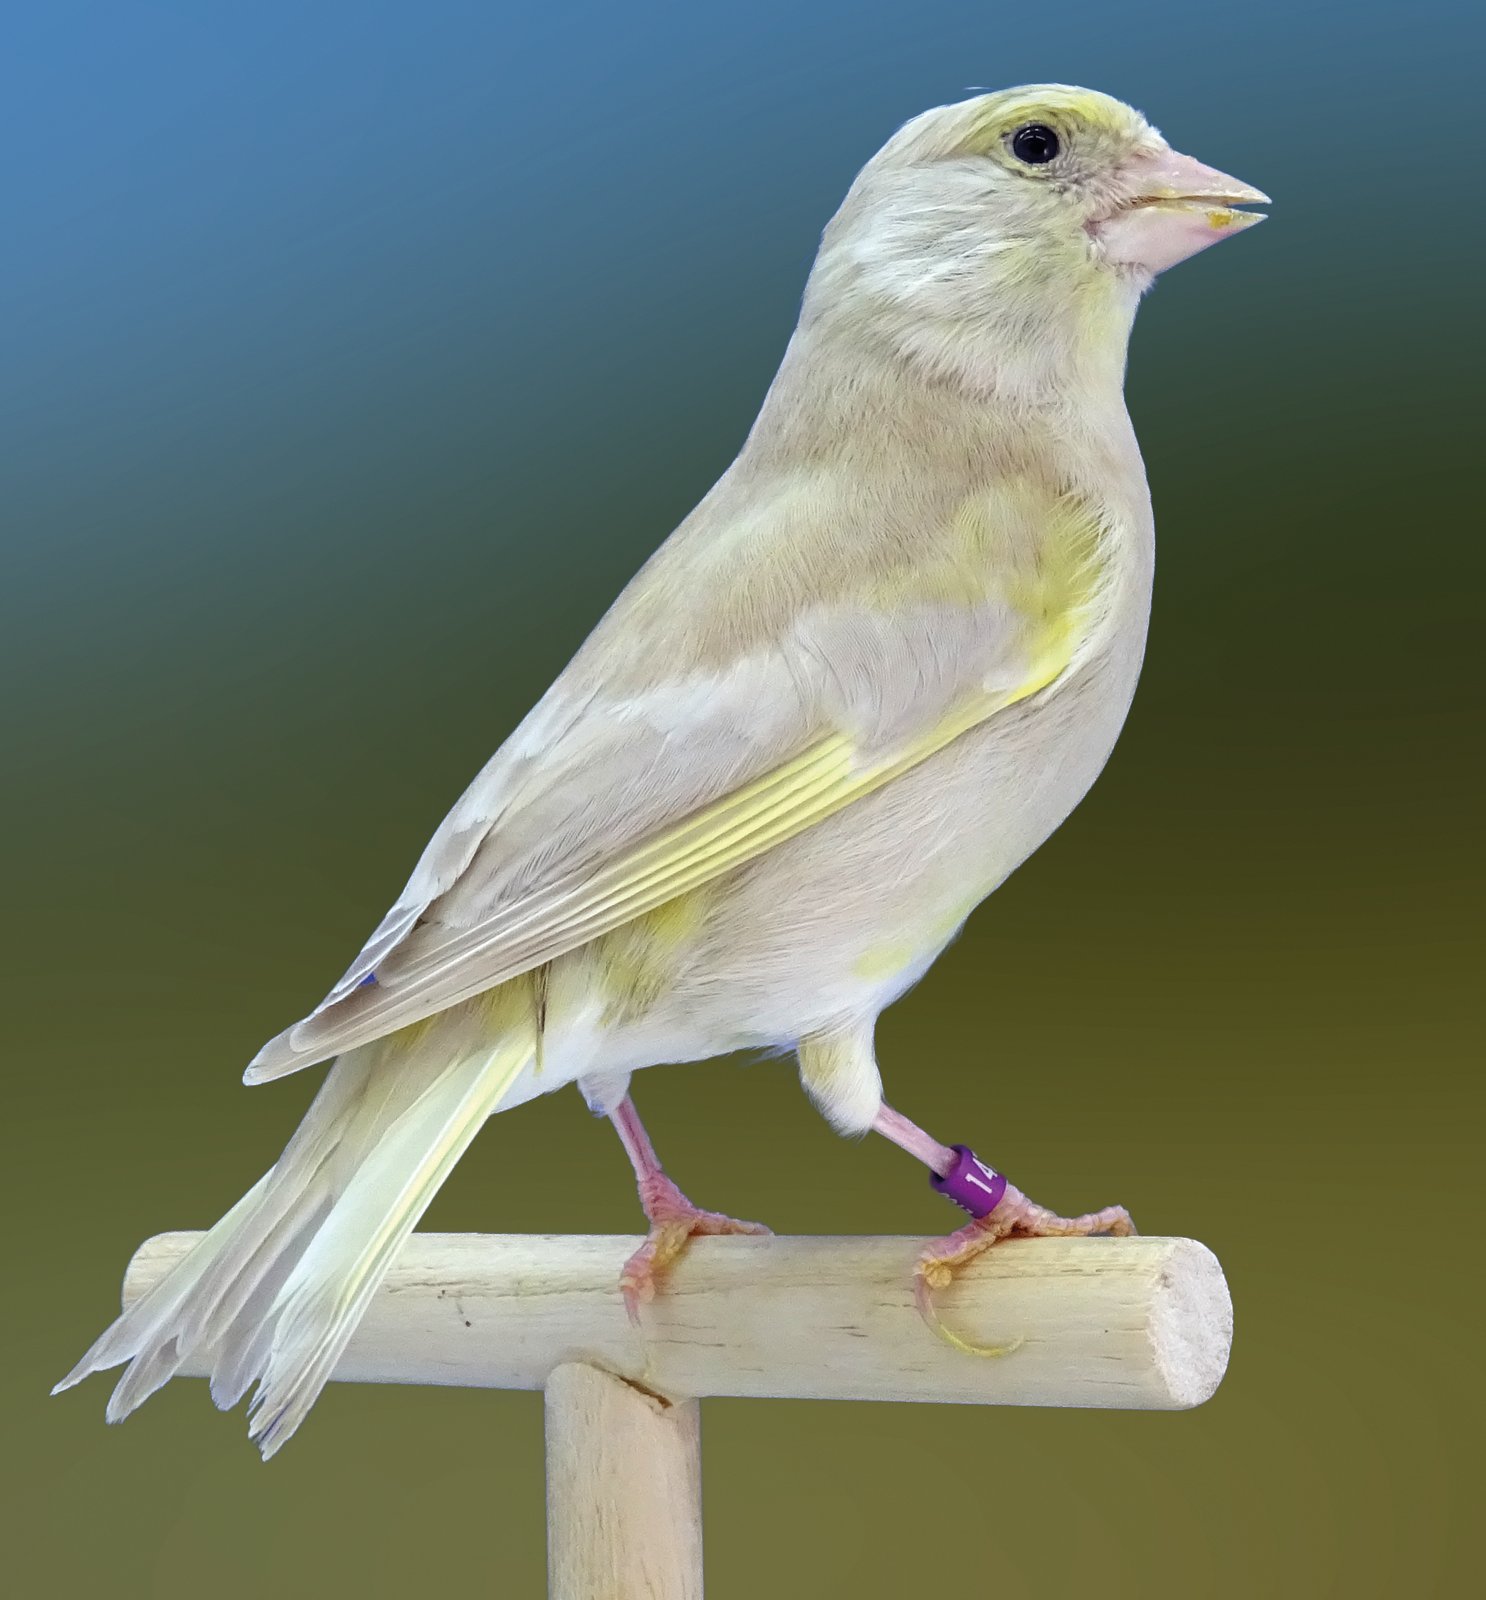
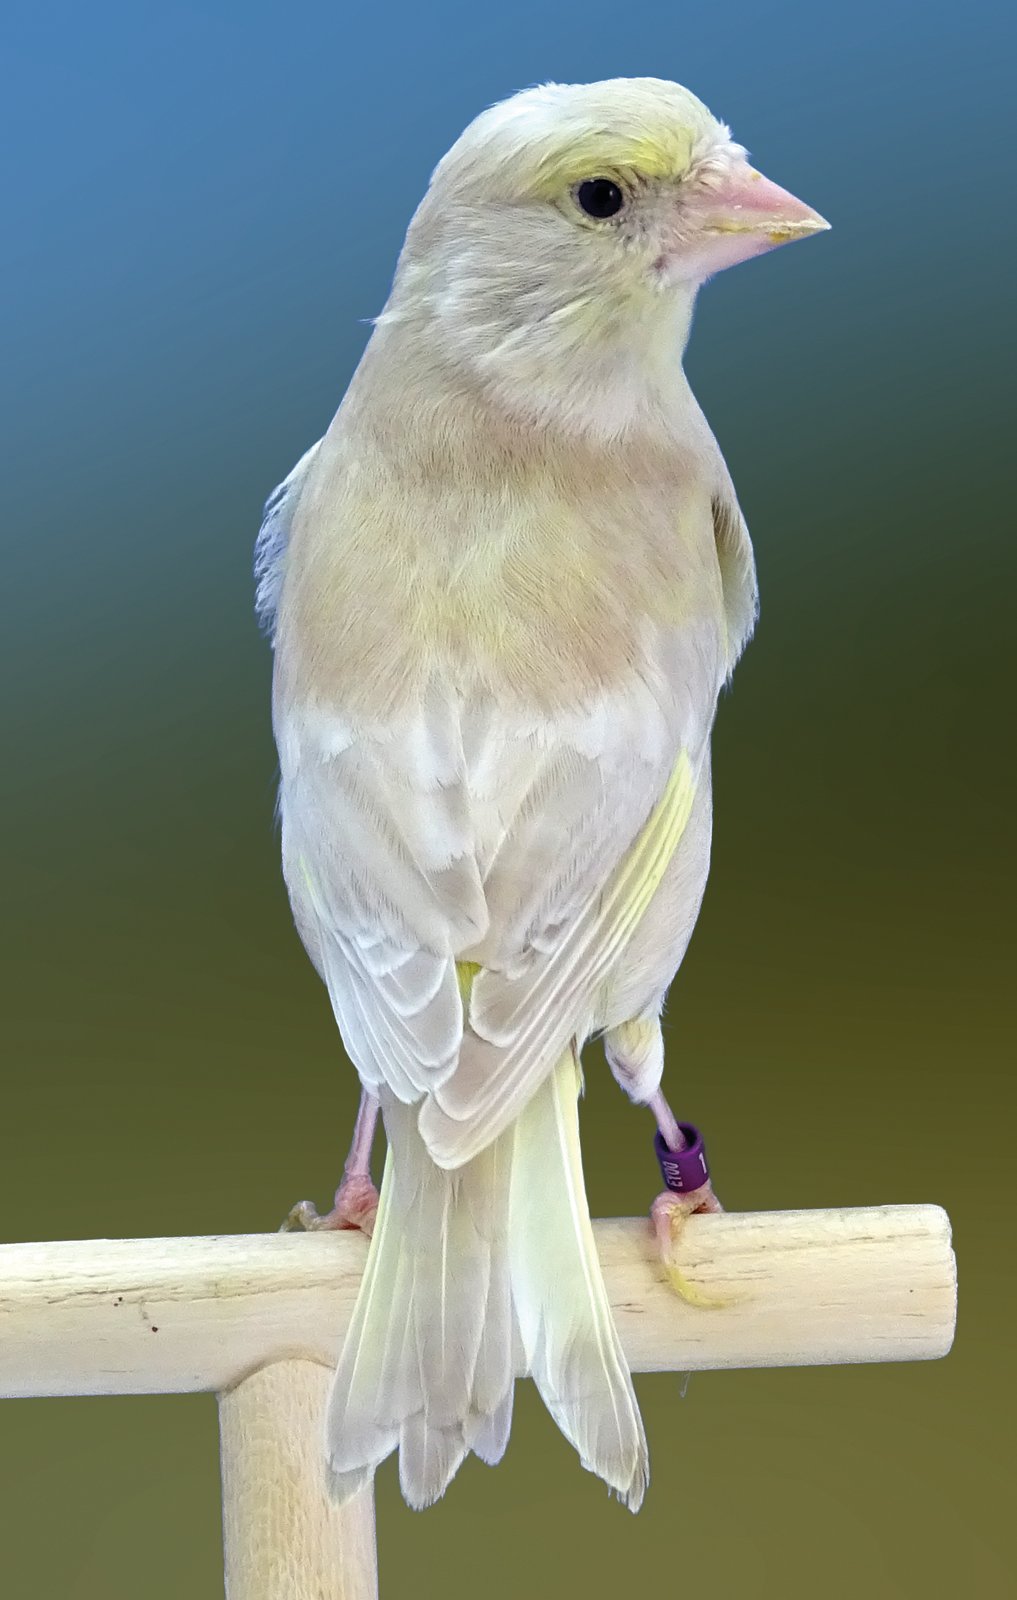
Características de la mutación Se trata de un factor que altera a todas las melaninas, tanto eumelanina como feomelanina. El lipocromo no se ve alterado por dicho factor, aunque será inevitable que la tonalidad verdosa que apreciemos cambie en función de la carga melánica del ejemplar. Aun así en las zonas donde el verderón muestra únicamente al lipocromo como en la lista alar y en el filo de las timoneras se podrá vislumbrar un tono intacto, sin alterar por el factor pastel. Debemos tener en cuenta que el color que observamos en nuestros pájaros es fruto de fenómenos de reflexión y dispersión de la luz. Es por ello que la tonalidad verde olivácea del verderón común tiene su origen en la combinación de los pigmentos melánicos y el lipocromo de fondo. Podremos por tanto encontrar diversos tipos verde en sujetos pastel cuya coloración se verá influida por la oxidación/ dilución de las melaninas. Conjuntamente, la tonalidad resultante estará influida por la carga lipocrómica del ejemplar. Y dicha carga se verá afectada por otro tipo de factores ajenos a los que alteran las melaninas como es el pastel. La eumelanina se presentará diluida en toda la pluma, viéndose más afectada la zona cercana al raquis, donde curiosamente hay mayor carga eumelánica. Sin embargo, en el filo de las plumas a pesar de presentarse diluida no estará tan alterada como en el centro de la pluma. En los mejores ejemplares se apreciará una tonalidad diluida y, sobretodo, muy uniforme en toda la superficie de la pluma. La feomelanina lucirá una tonalidad manifiestamente diluida, siendo casi inapreciable en los sujetos pastel sin combinar. En el caso de las combinaciones sólo apreciaremos con claridad la feomelanina en sujetos bruno pastel e isabela pastel de un tono rojo parduzco claro; más diluido, aunque patente, en los isabela pastel. En cuanto a las partes córneas se ven también afectadas, presentándose ligeramente diluidas. También el raquis de las plumas se verá afectado por dicho factor. Aunque, podremos observar gran variabilidad de tonalidades en función de la oxidación de los ejemplares. Una particularidad interesante de los verderones pastel es que con los años maduran y van a mejor en cuanto a tonalidad melánica. En primer año solemos ver ejemplares con las timoneras excesivamente diluidas, sobretodo en los machos. Estos ejemplares con las sucesivas mudas parecen oxidarse y lograr una tonalidad más homogénea, sobretodo en las plumas de vuelo. Es una particularidad que ya se ha observado en la carga feomelánica también, principalmente en los sujetos ala gris donde la feomelanina es de un tono más saturado en ejemplares de segundo año en adelante, en los más adultos. Es interesante destacar que gracias a estos hechos contrastados podemos deducir que la carga de melanocitos en ejemplares de primer año, con su primera muda postjuvenil, es menor en los dos grandes tipos de melaninas (eumelanina y feomelanina) y que con los años esta carga melánica aumenta significativamente, apreciándose más oxidada.
Transmisión hereditaria En lo que a su herencia se refiere, podemos afirmar que se trata de un factor
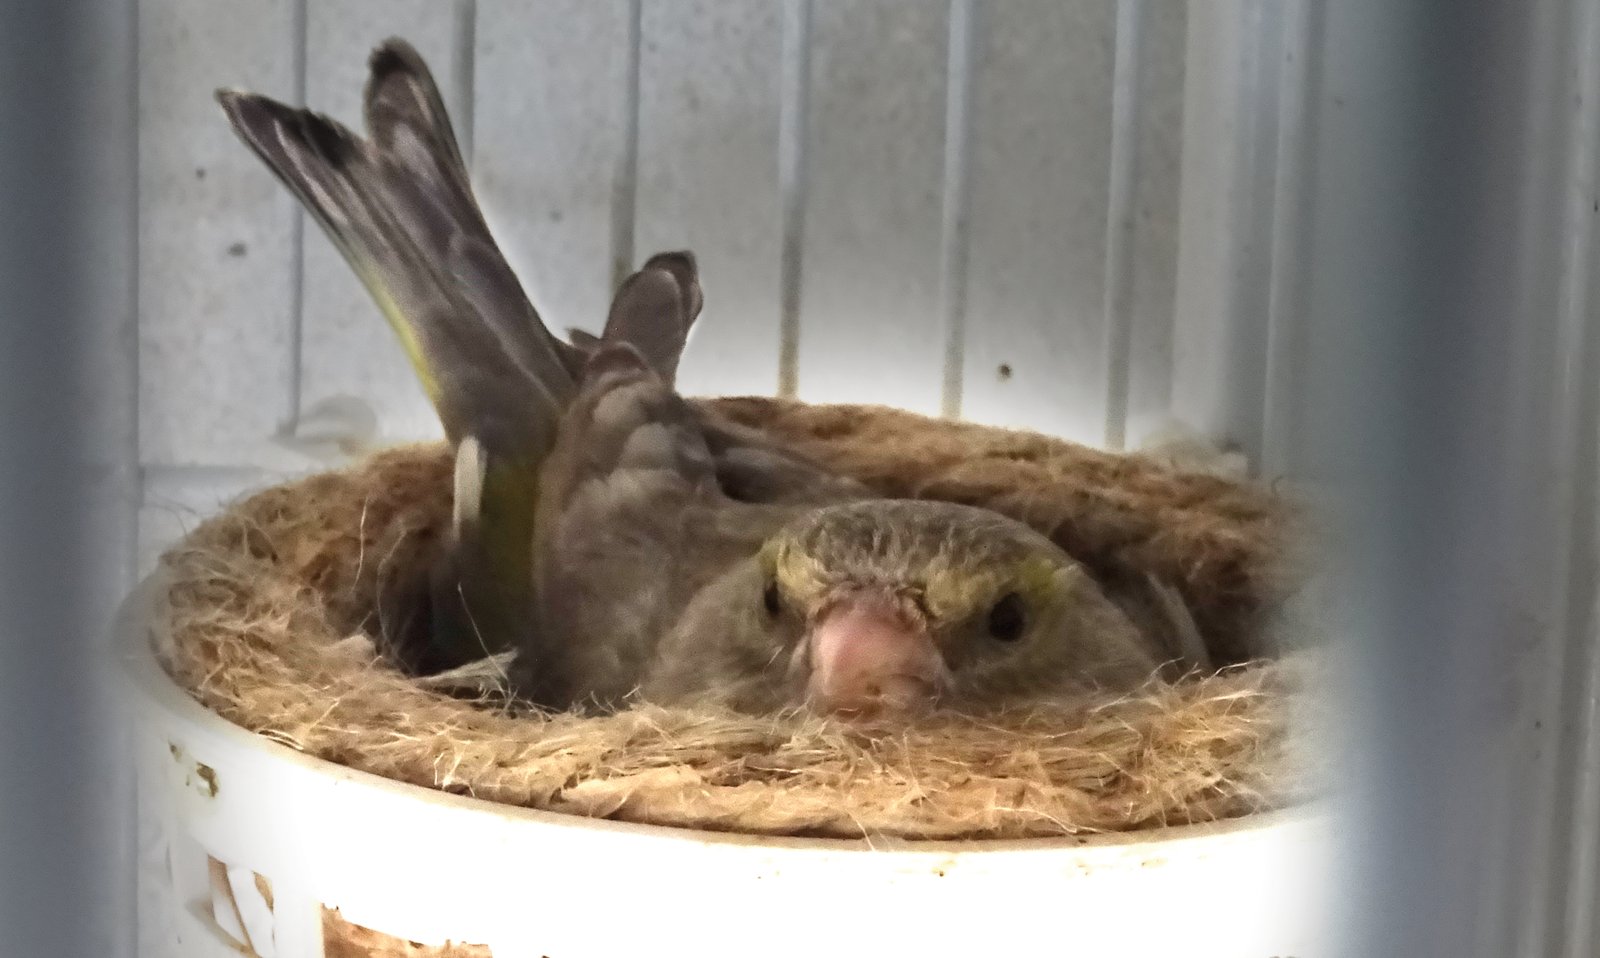
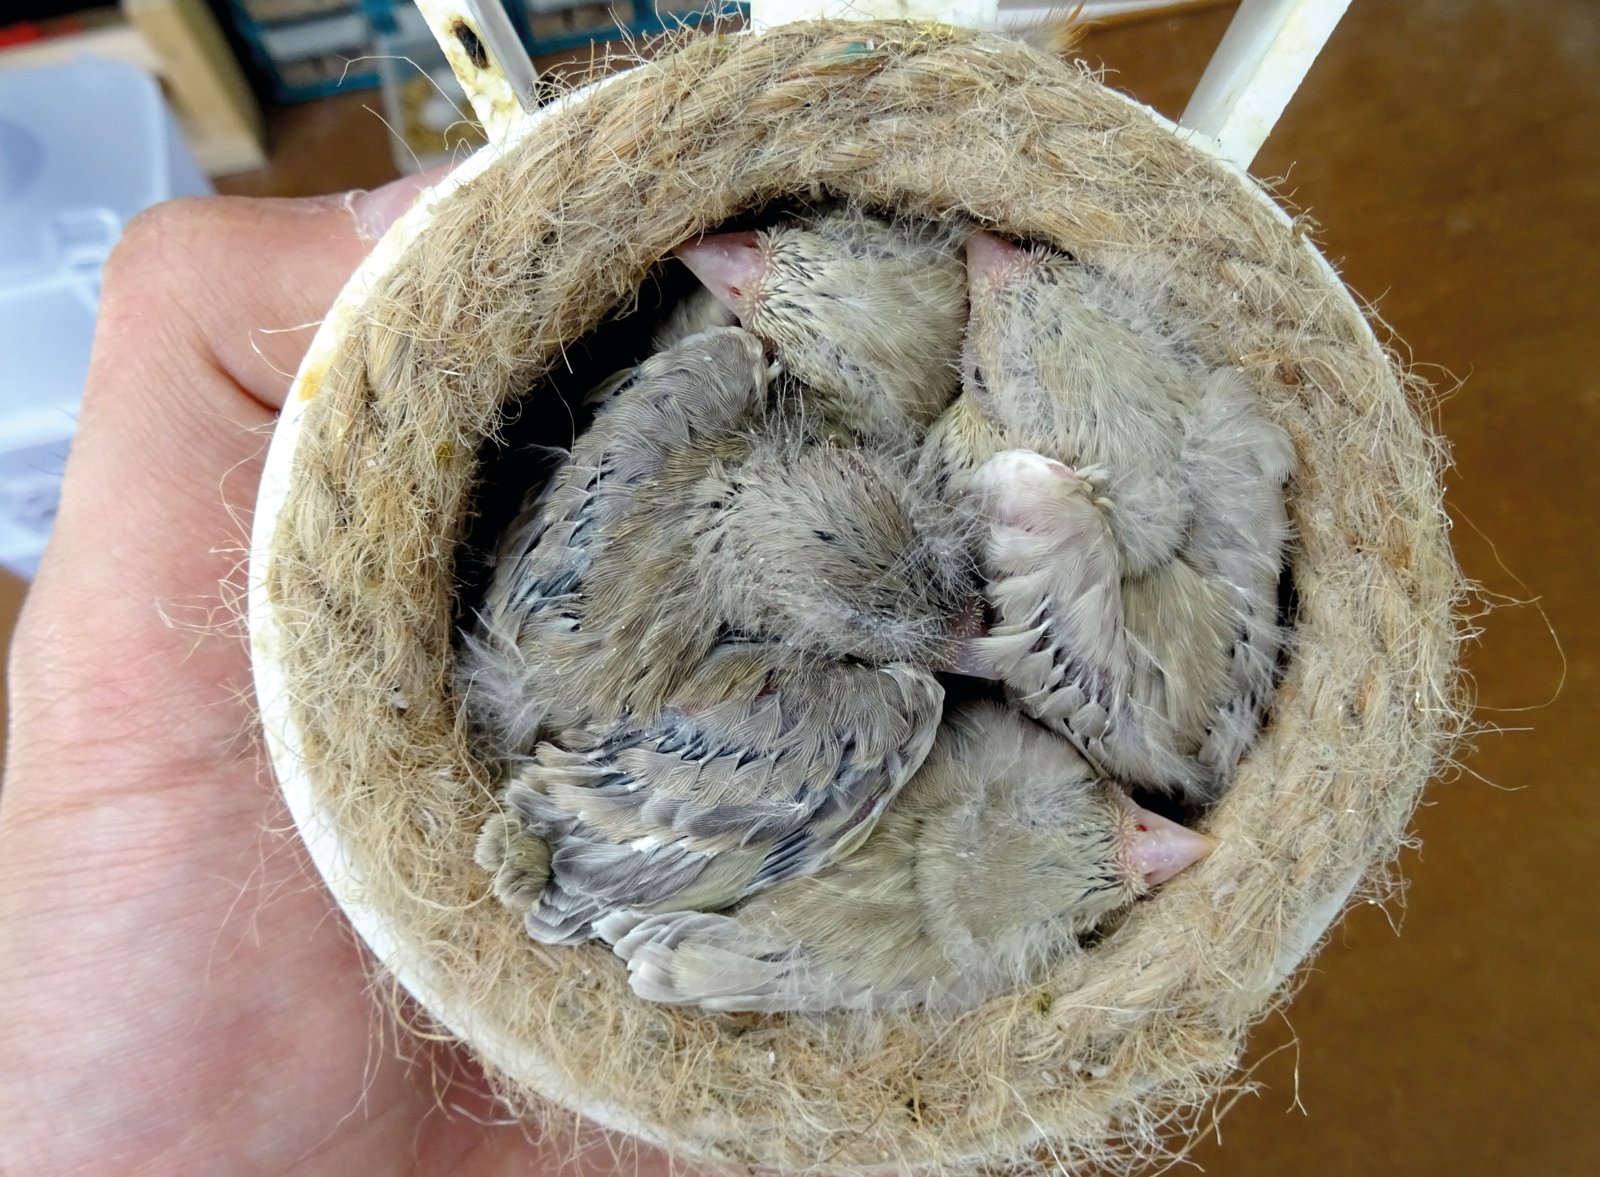
recesivo y ligado al sexo. A pesar de que en su origen viene de la mano del factor ágata, también recesivo y ligado al sexo, presentándose los dos factores ligados en un mismo cromosoma; gracias al fenómeno conocido como “croosing over” o entrecruzamiento cromosómico se han podido desligar los dos genes y podemos observar ejemplares pastel sin combinar, tanto machos como hembras. Su desligamiento se ha podido producir debido a que existe una distancia de varios centimorgan que ha posibilitado el desligamiento. En mi aviario, el pasado año, realicé un cruzamiento entre un macho ágata pastel y una hembra pastel donde pude obtener un macho Pastel portador de ágata y tres hembras ágata pastel. Confirmándose la herencia citada con anterioridad. Desafortunadamente en la segunda postura con cinco huevos pisados la hembra murió en el nido y cuando llegué a verla era demasiado tarde para los embriones, no pudiendo obtener más descendencia de la pareja. En las imágenes que se adjuntan al artículo puede observarse la nidada y sus progenitores.
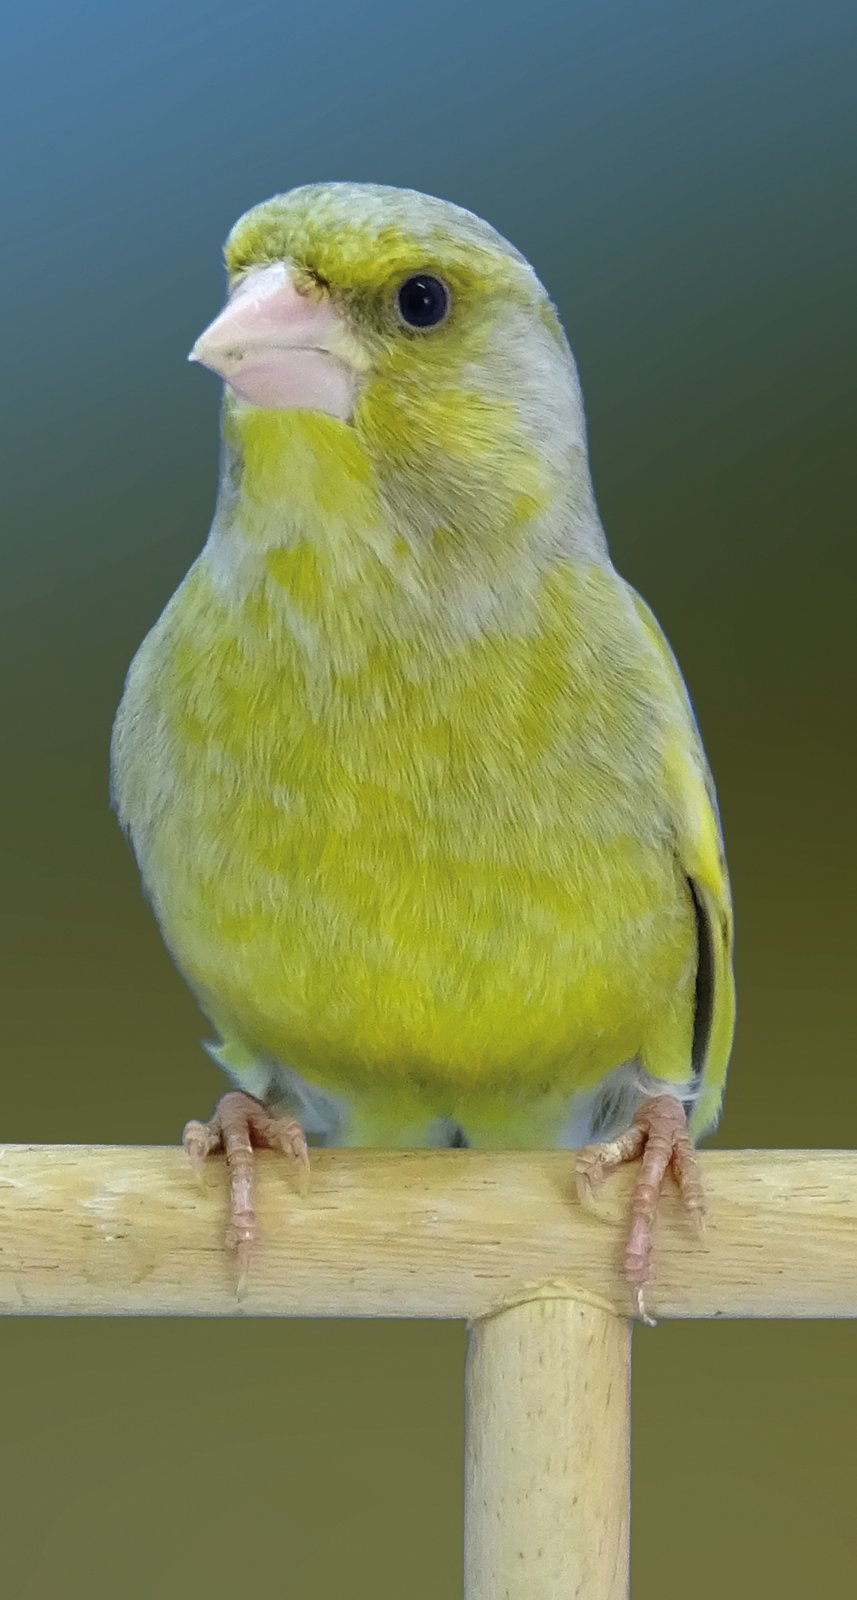

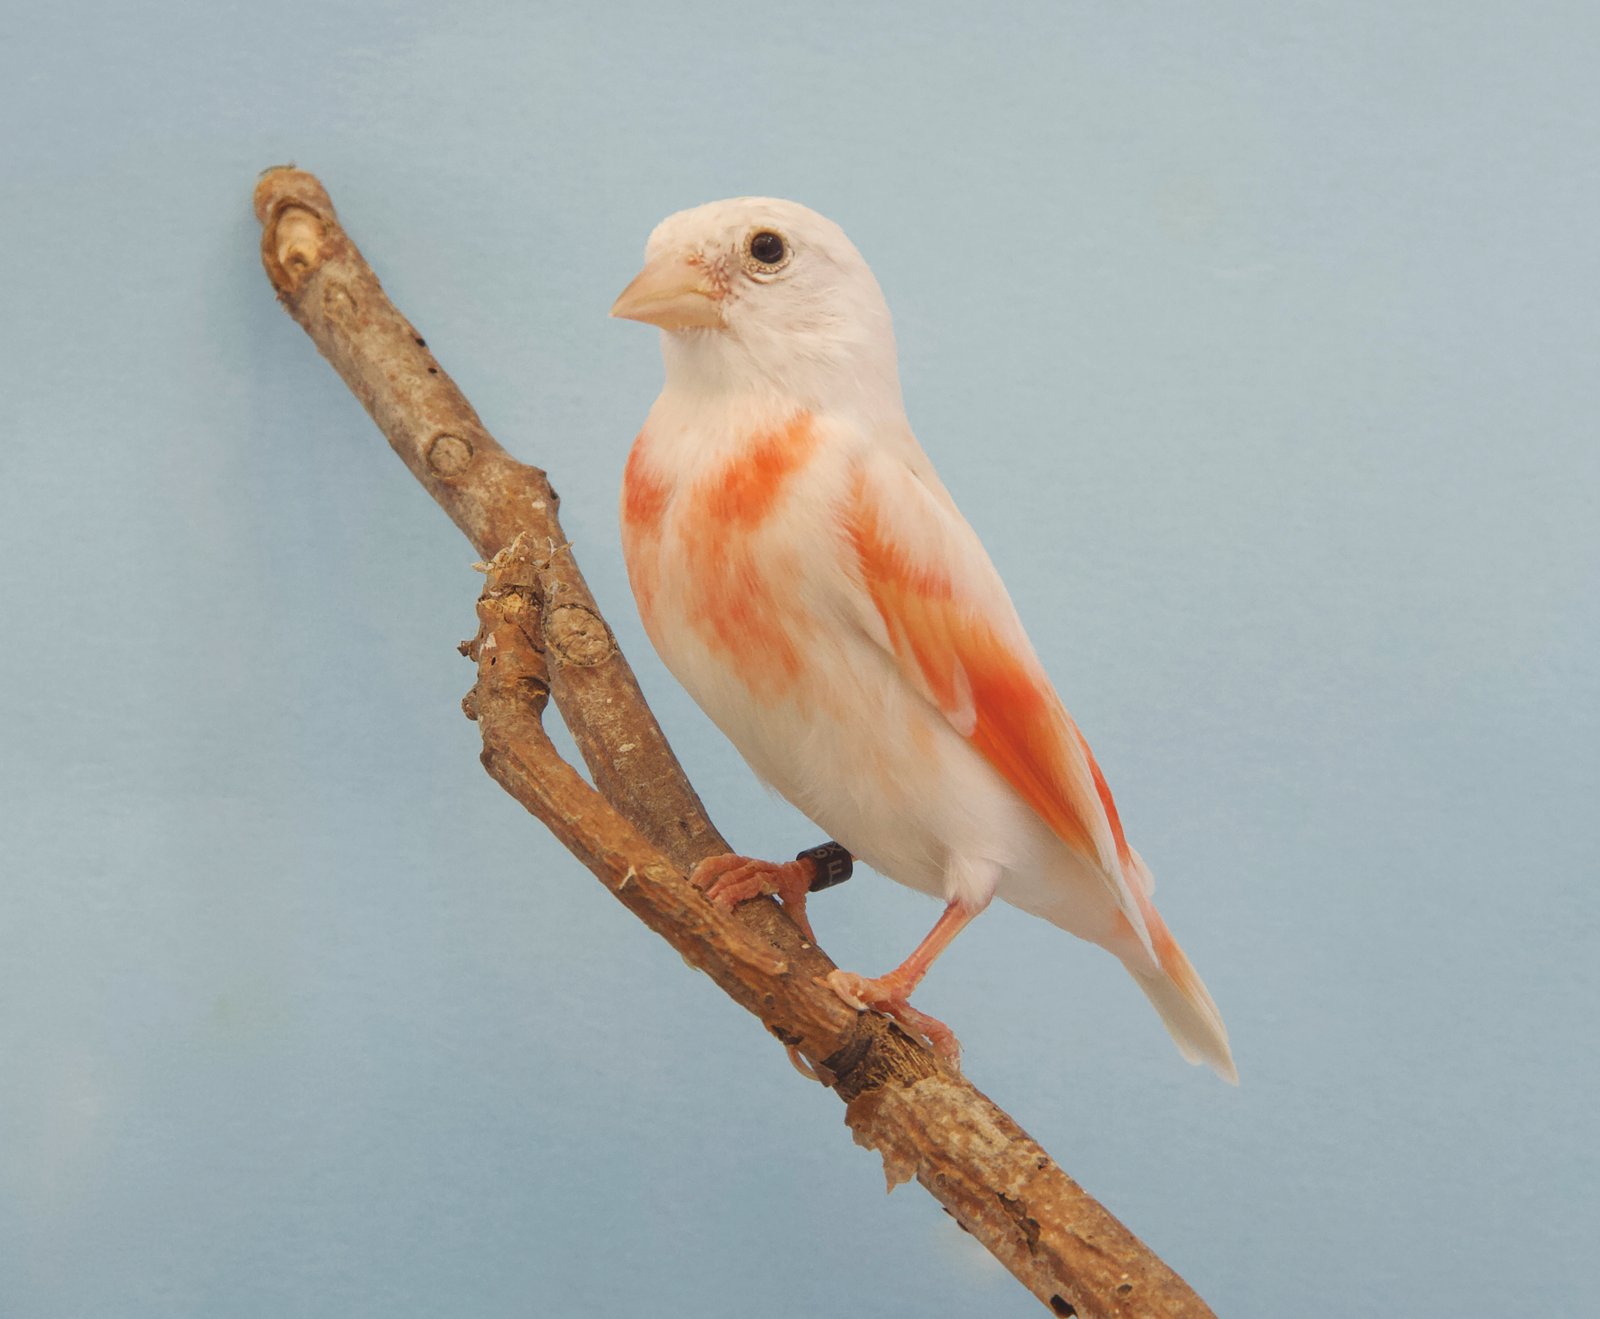
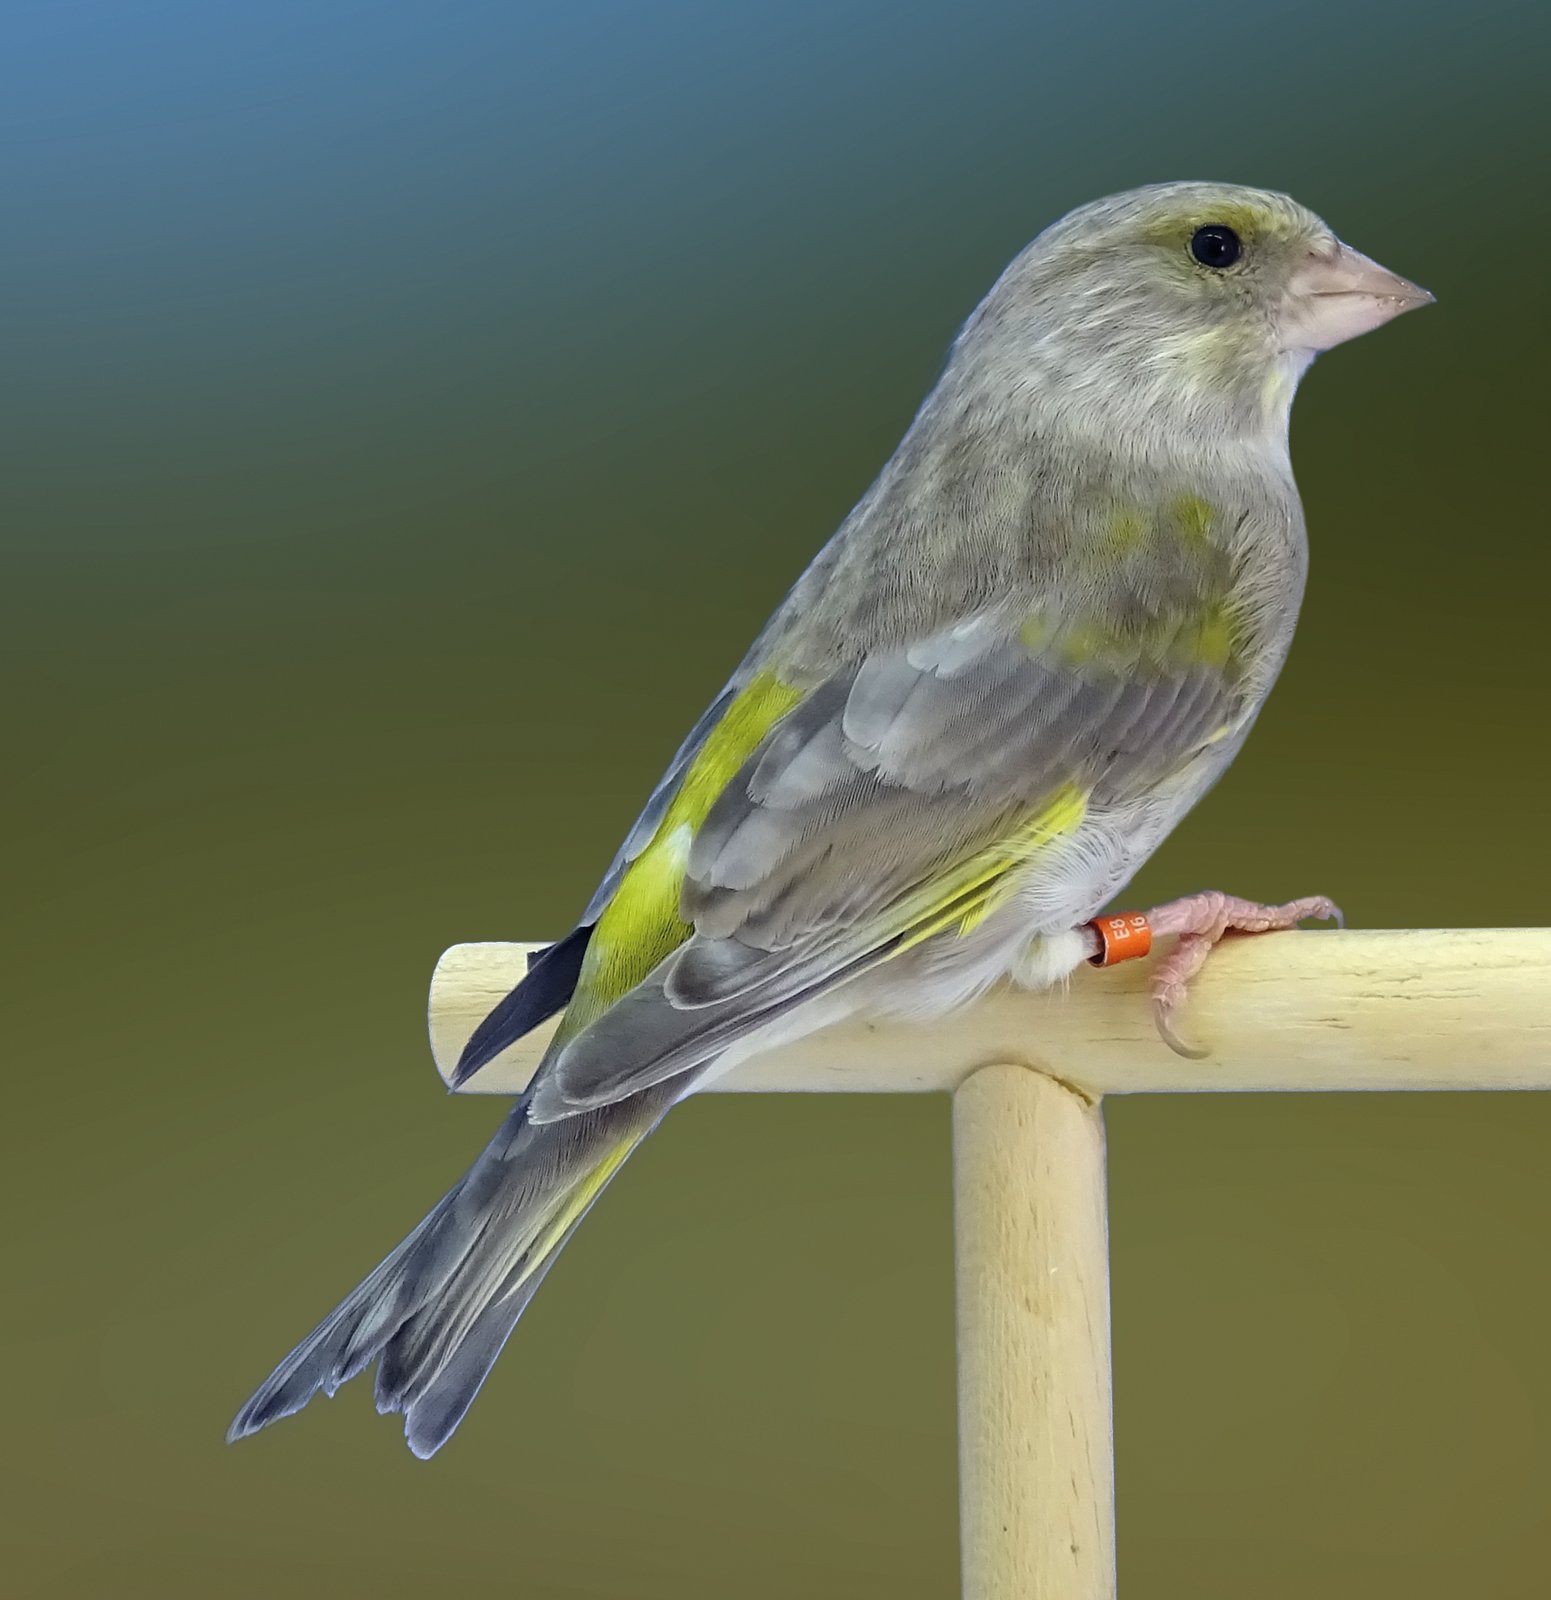
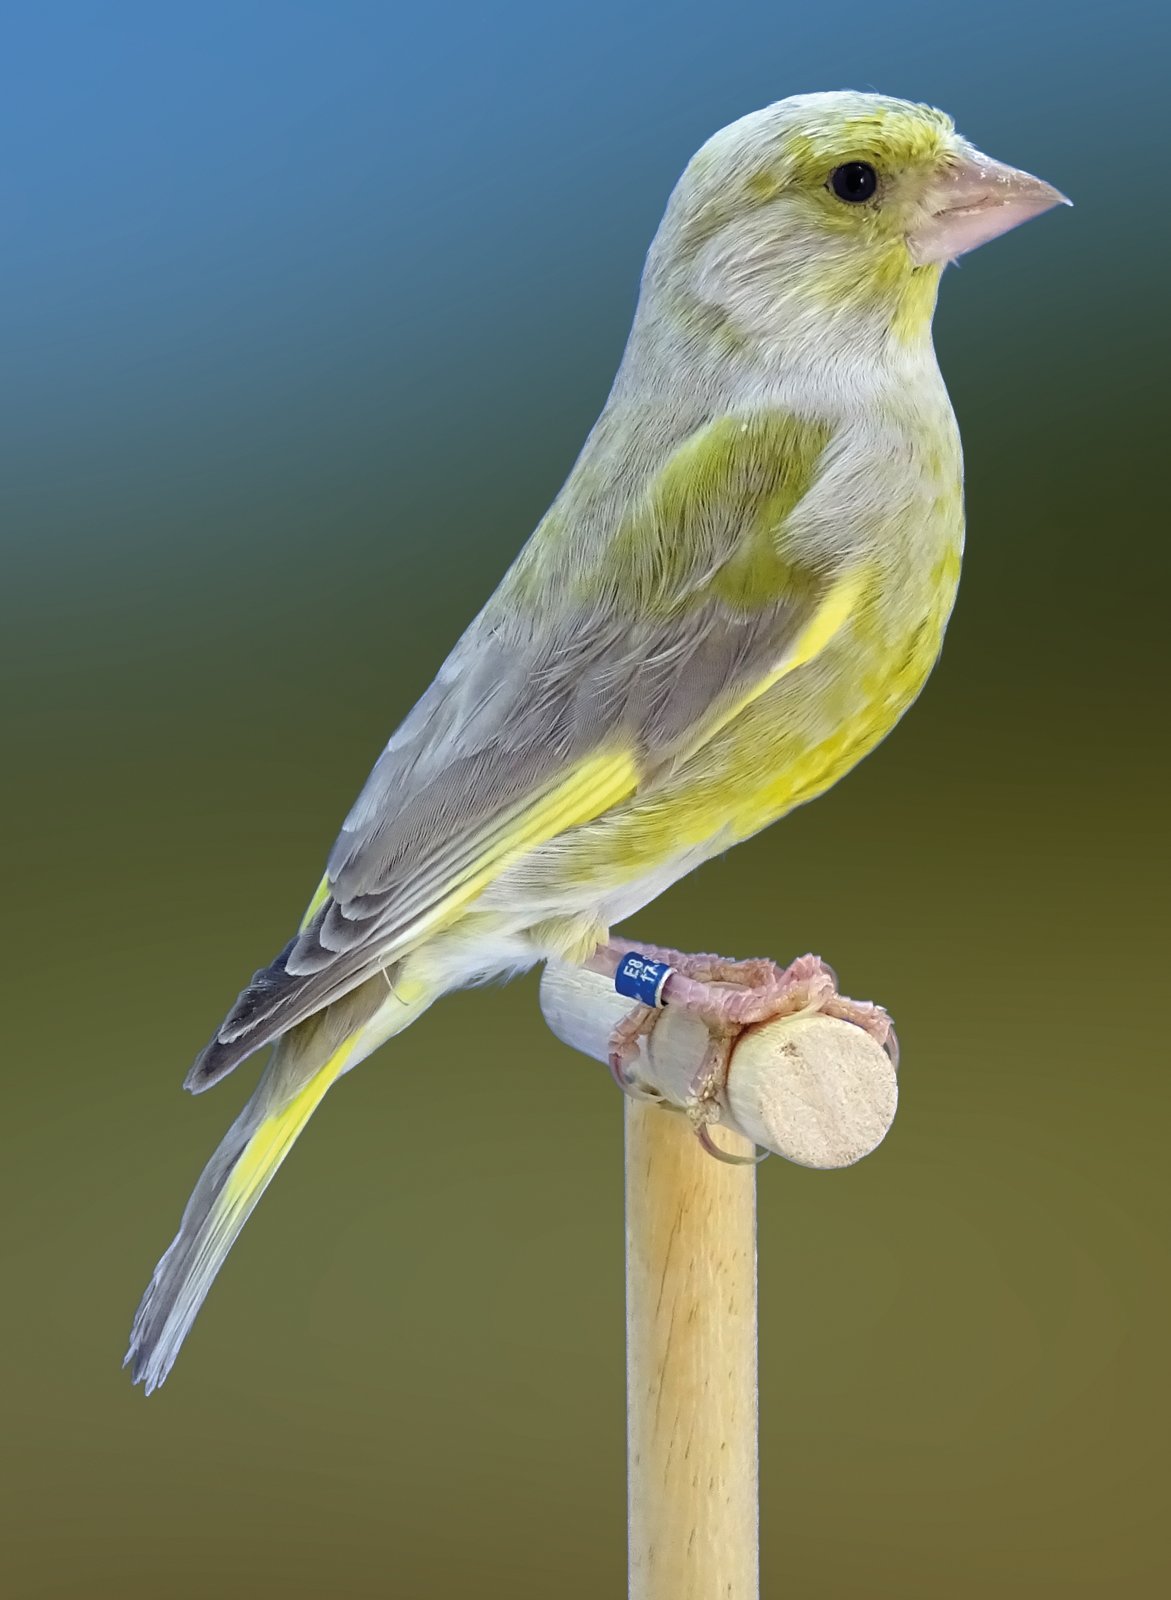
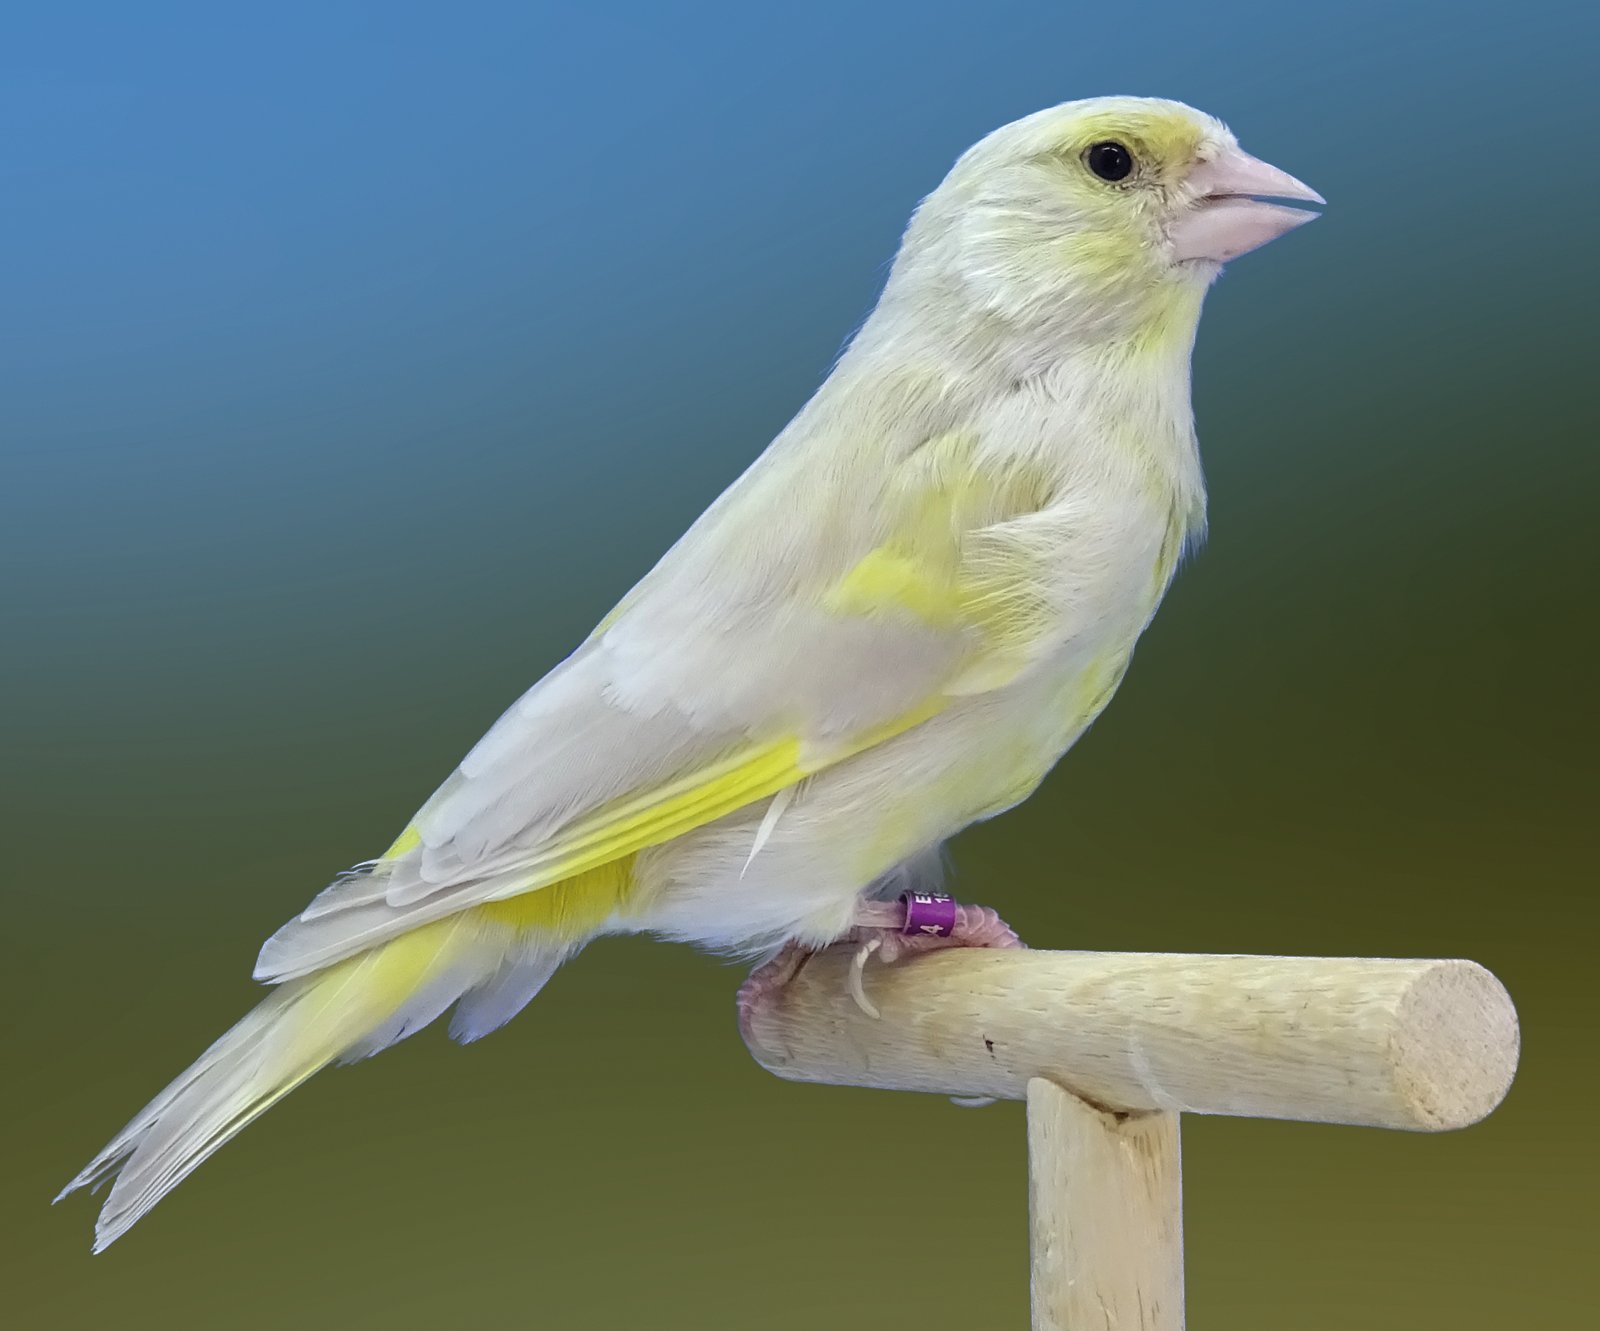
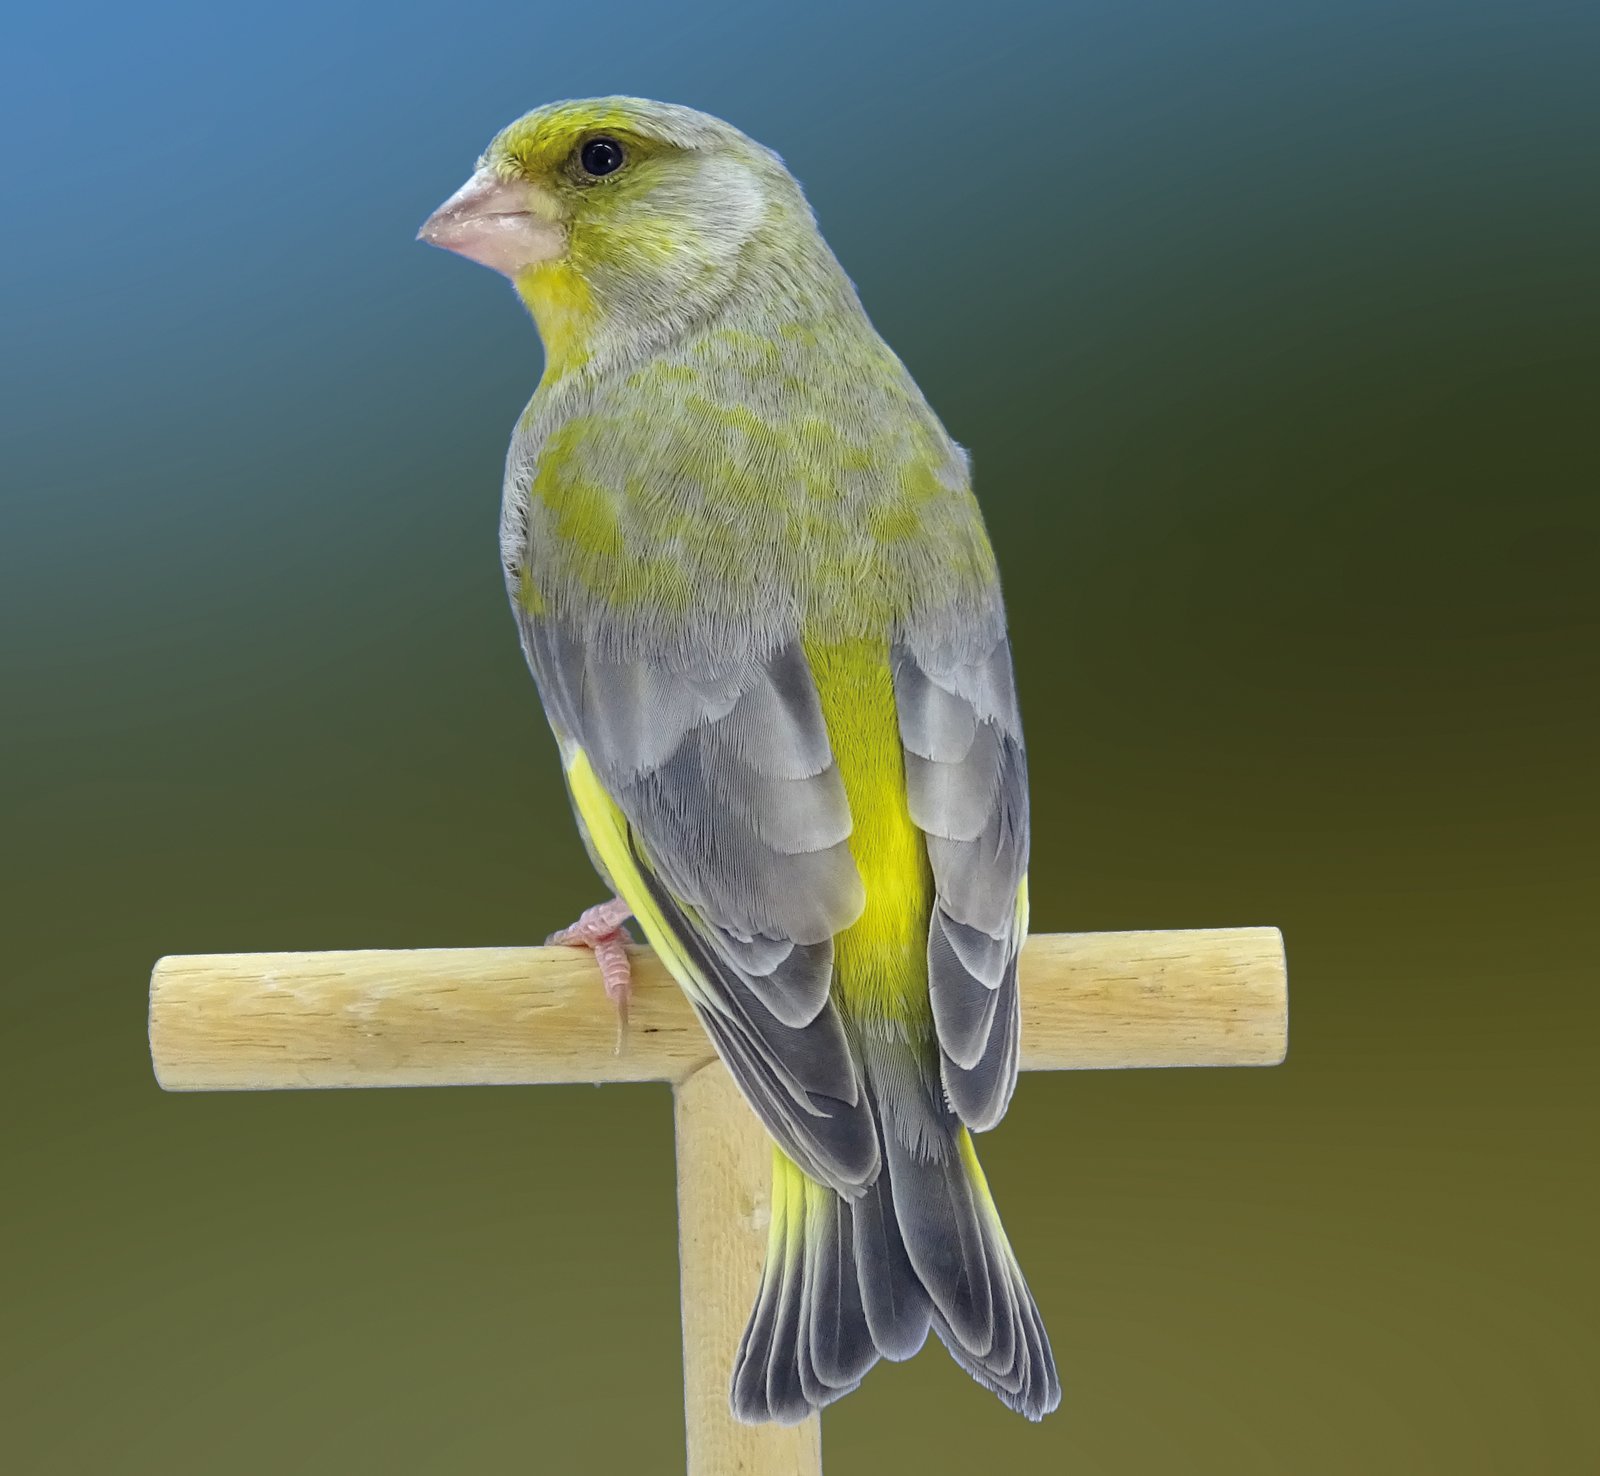
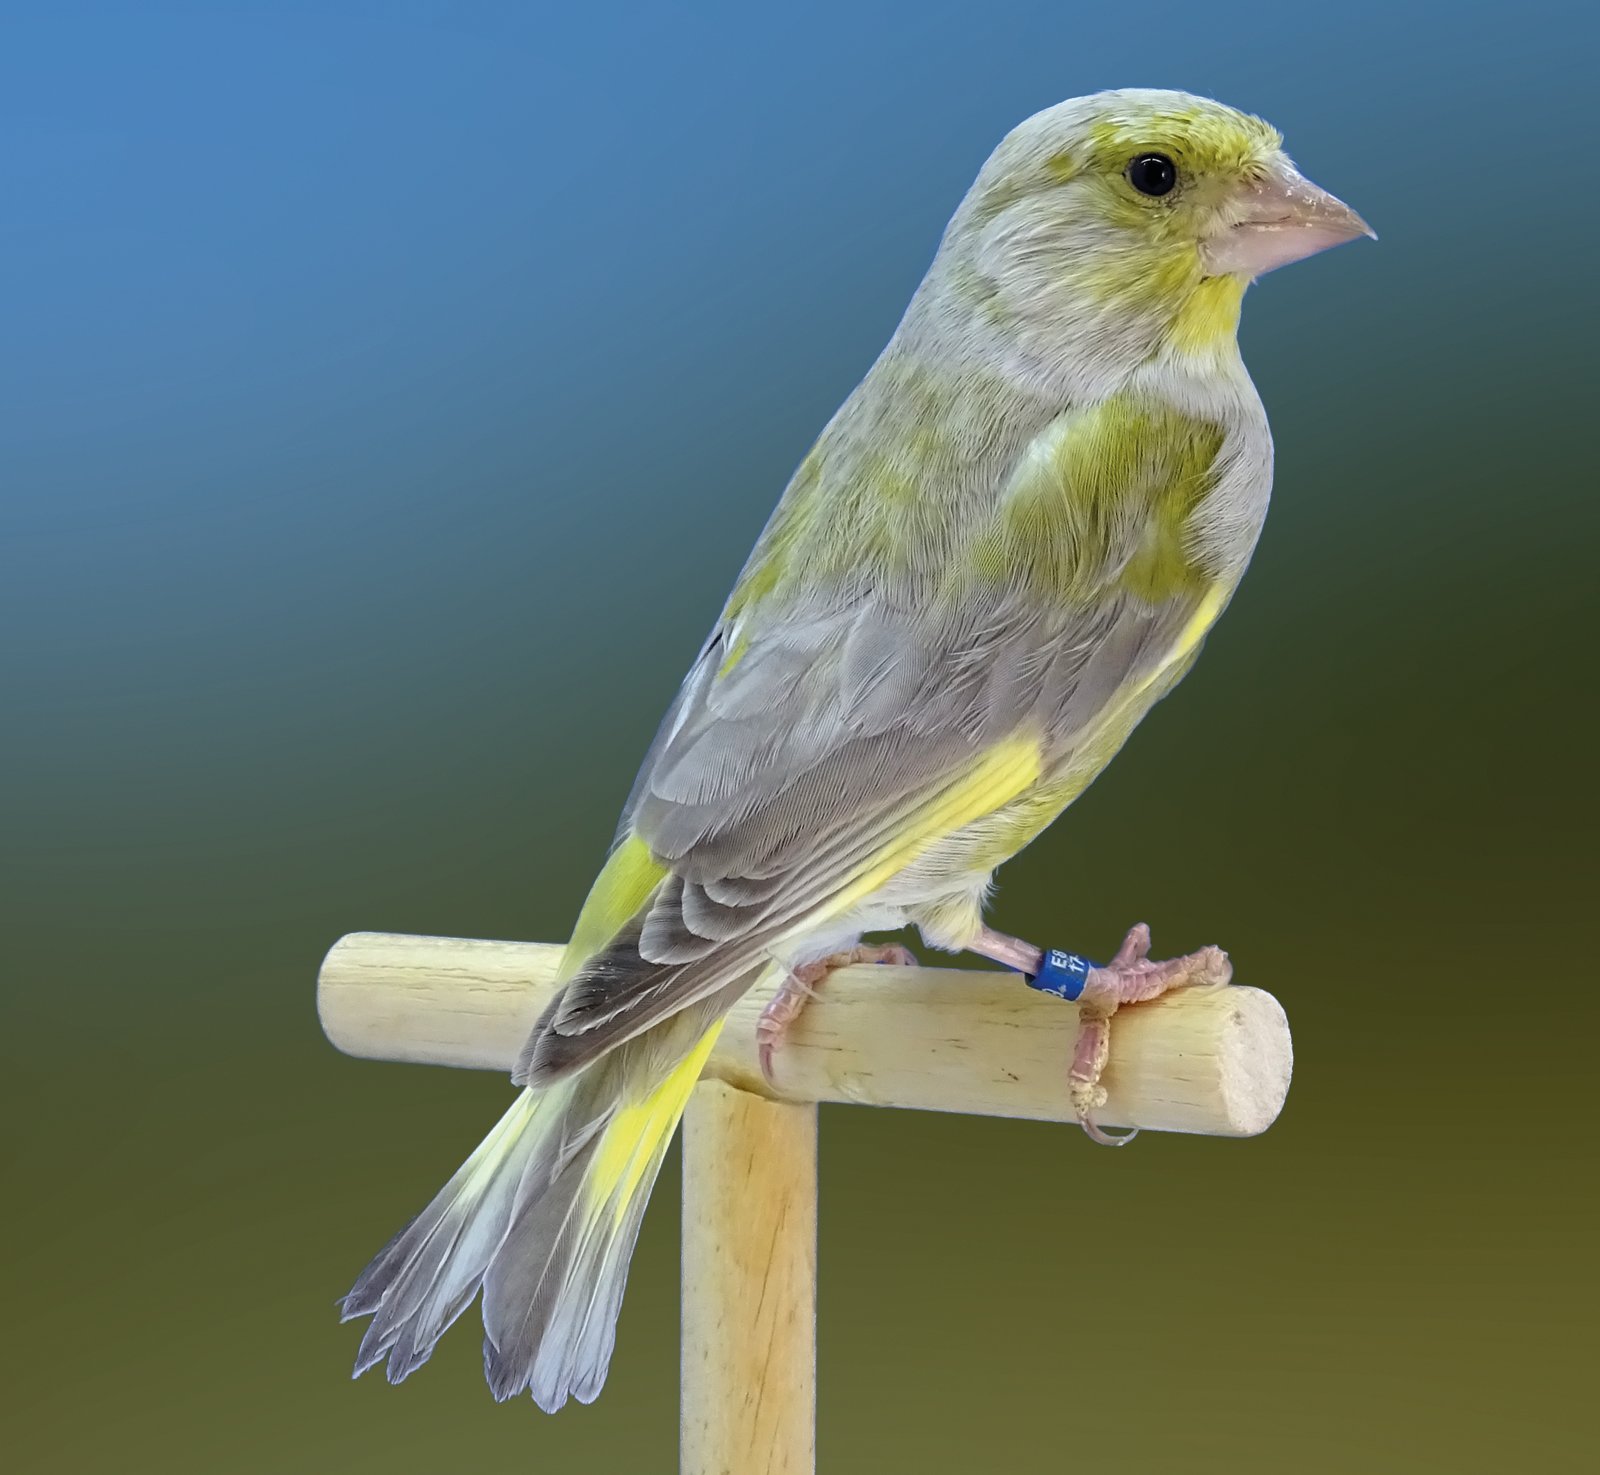
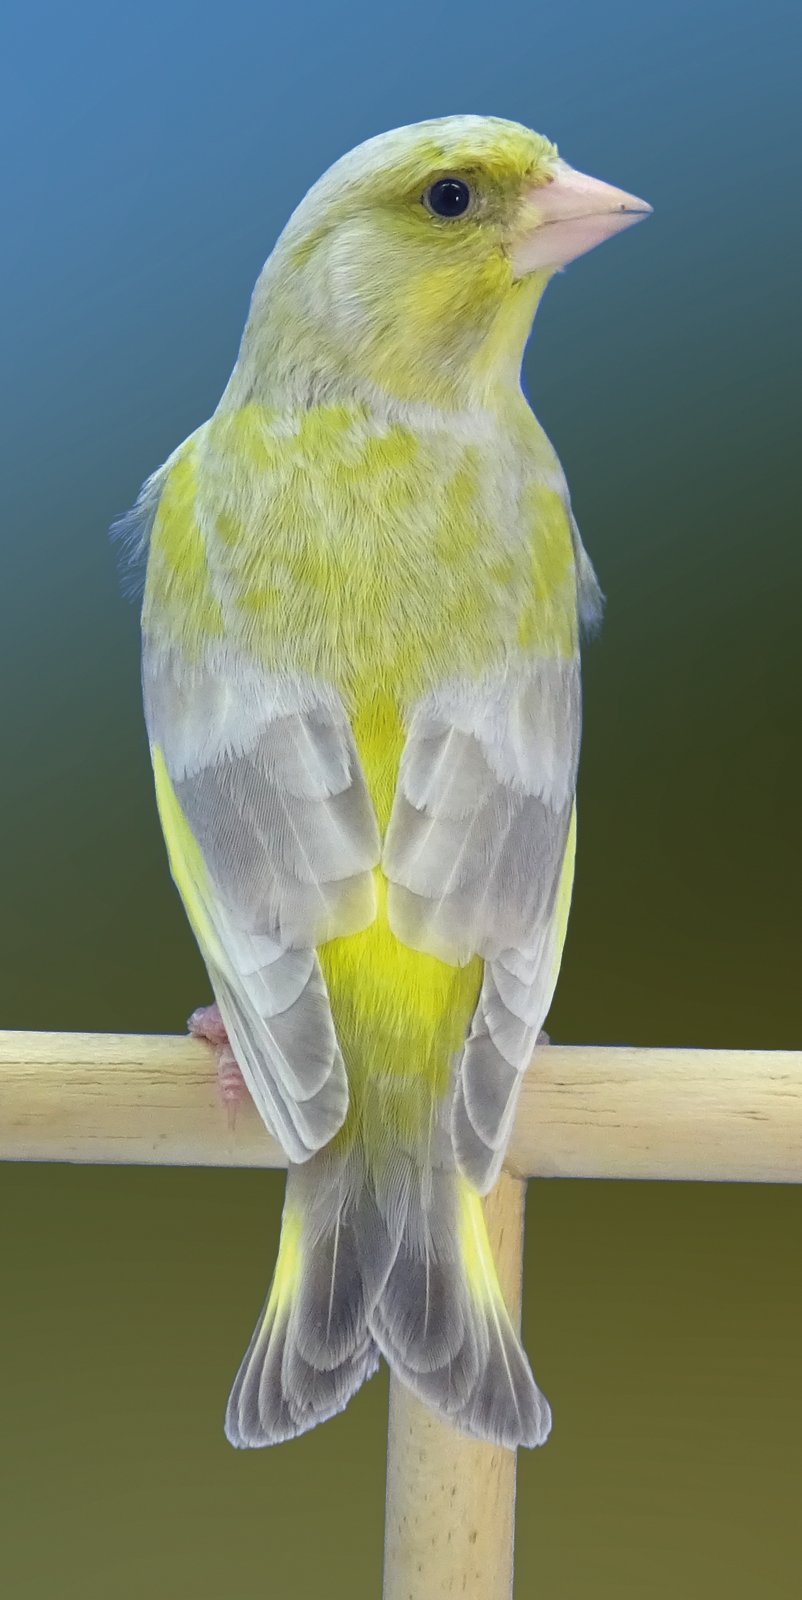
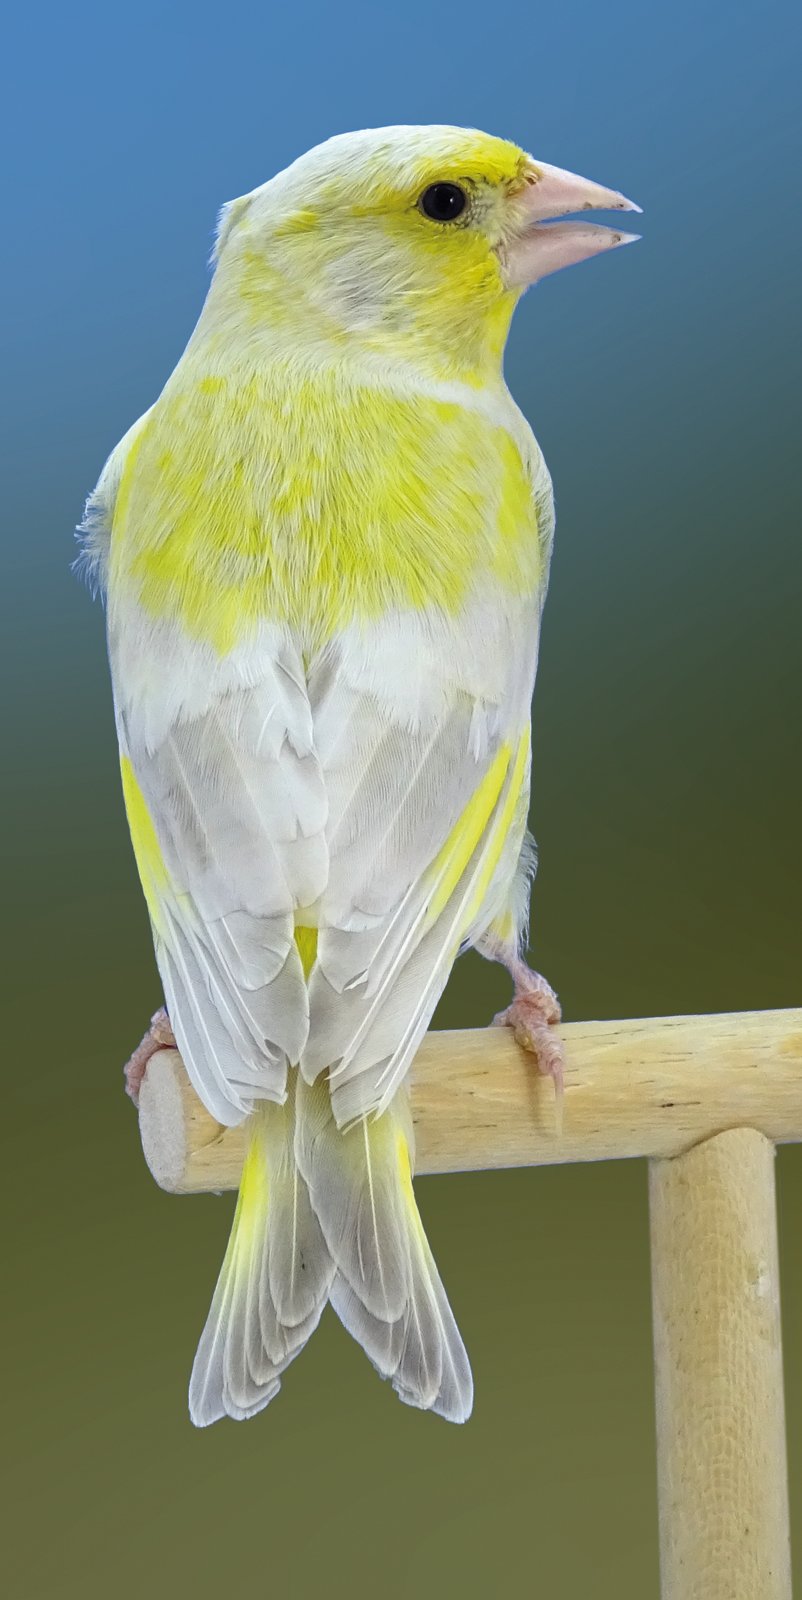
El Ágata Pastel Se trata de la combinación originaria, la más cultivada. Ofrece una tonalidad gris azulada que llama la atención de muchos aficionados. También la combinación más polémica debido a que a llegado a confundir mucho a los aficionados por la variabilidad que ofrece y por la poca probabilidad que existe para desligar el gen pastel del gen ágata. Es muy interesante mencionar que la confluencia del gen ágata que reduce la melanina, ofreciéndonos los filos de las plumas de un tono gris claro, junto al gen pastel que diluye respetando más la melanina de los bordes de la pluma da como resultado una dilución general de la melanina y una casi inapreciable reducción melánica. Es una especie de simbiosis génica en donde uno diluye más severamente (pastel en el centro de la pluma), el otro concentra la melanina (el ágata en el centro de la pluma) y, al contrario, donde el pastel altera muy poco el depósito melánico (el filo de las plumas), el ágata lo reduce. El resultado final es un tono gris azulado que envuelve al ejemplar que junto con el lipocromo inalterado por dichos genes dan como resultado un tonalidad verdosa, influenciada por el grado de oxidación melánica que envuelve toda la superficie de la pluma. En Italia, parece ser que existe una vertiente de aficionados que lo consideran como un sólo factor alélico del ágata (masqué, mascherato en italiano) y no como, lo que realmente es, una combinación de mutaciones debido a la confluencia de dos factores y no de uno sólo. Para comprobar la existencia de dos factores será necesario realizar cruces prueba de verderones pastel con verderones ágata pastel, independientemente de si usamos hembras pastel y machos ágata pastel o viceversa los descendientes serán todos pastel y/o ágata pastel, sin ningún hijo o hija clásica. También deberemos tener en cuenta que podrían salir hijas satiné, lutino o ámbar si el padre resulta ser portador de dicha mutación. Pero en ningún caso obtendremos descendencia clásica, señal evidente de que se tratarían de dos mutaciones distintas y no alélicas. Es inevitable que haya tendencia a poner en duda ciertas denominaciones cuando hablamos de mutaciones que son muy poco cultivadas, es por ello que desde estas líneas se anima a todos los aficionados a cultivar y seleccionar de manera muy rigurosa al verderón pastel. También, tal y como se ha mencionado, el verderón ágata pastel ofrece una gran variabilidad fenotípica en función de la oxidación/dilución del ejemplar. Sobretodo si se combina con el gen satiné. En las fotografías adjuntas podemos observar un verderón ágata pastel portador de satiné con un fenotipo que se sale de lo habitual por su extradilución. Este tipo de sujetos suelen ser confundidos con los ámbar, reciente mutación descrita en el número 86 de la revista de Ornitología Práctica. Para dejar claras las diferencias se adjunta una foto de un ámbar, también bastante diluido, donde podremos apreciar en remeras y timoneras que el efecto de la mutación es distinto. El pastel diluye la melanina que invade toda la pluma casi por igual, siendo más severa la dilución en el centro de la pluma. En cambio el ámbar diluye la eumelanina y la feomelanina, además de reducir la zona de depósito en la pluma, dando lugar a grandes filos despigmentados, apreciándose mejor en las remeras y timoneras. Es por este motivo que el lipocromo de un ámbar aparece más luminoso de un tono más puro, al contrario que el pastel donde la eumelanina al llegar hasta el final de la pluma siempre alterará el tono resultante, dando tonalidades más o menos verdosas en función de la oxidación melánica. La tonalidad típica del ágata pastel es tendente al azul, si a ello le combinamos que estamos seleccionando ejemplares más bien diluidos podemos llegar a obtener un tono que bien podría confundirse con el de un verderón “opal”. Nada más lejos de la realidad, puesto que el verdadero opal tendría el conocido “efecto de opalescencia” donde la melanina de distribuye hacia el envés de la pluma, produciendo un color estructural. También, para cerciorarnos de que se trata de un sujeto opal, éste debería presentar en el raquis de las plumas de vuelo un discontinuo e irregular depósito melánico que provoca que apreciemos una serie de rayas oscuras en el envés de la pluma. Todo lo mencionado son características propias de un sujeto opal que todavía no he apreciado en un verderón común. Aunque espero pronto podamos observar en nuestros aviarios que tal le sienta el vestido opal a un verderón común.
El Bruno Pastel Es la combinación más complicada de ver, la más difícil de obtener. Es una tarea ardua, sólo al alcance de los criadores entusiastas,
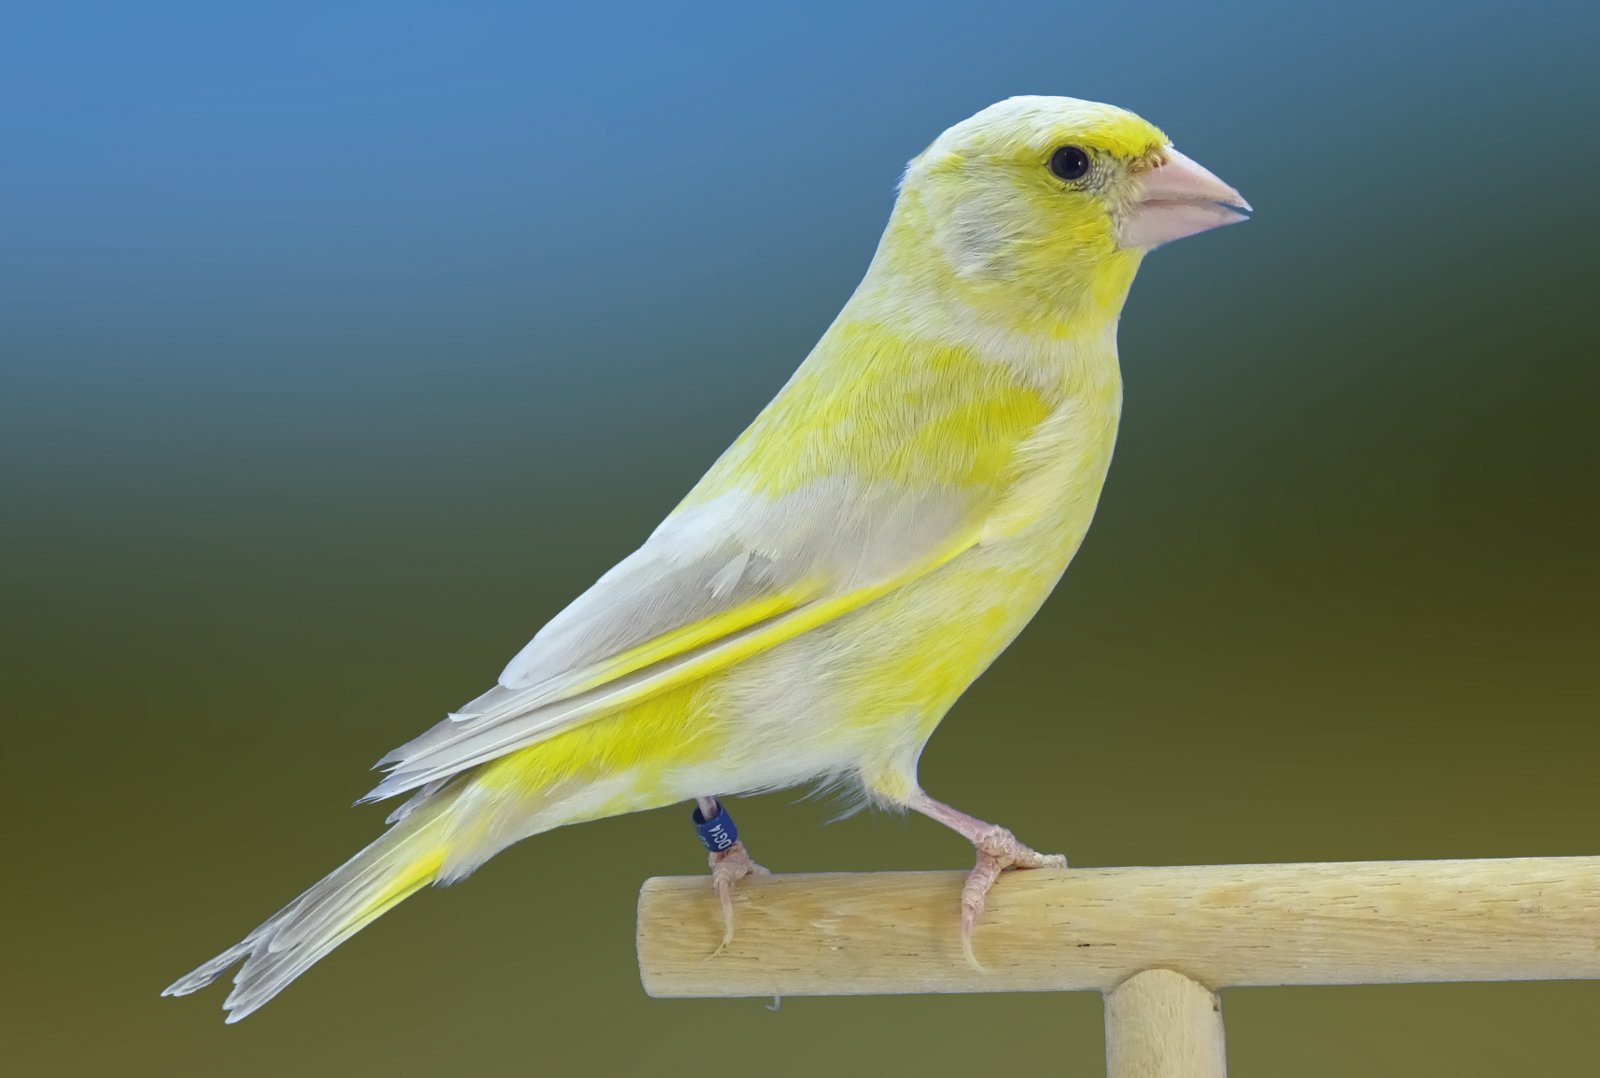
a los más pacientes. Para lograr verderones en bruno pastel primero deberemos encontrar ejemplares pastel sin combinar, la mayoría de los machos poseen el gen ágata incluido en alguno de sus cromosomas. Es por ello que no sólo será un reto encontrar sujetos pastel que no posean rastro del gen ágata sino que deberemos lograr que el gen bruno se ligue, mediante croosing over, con el gen pastel en un mismo cromosoma para poder obtener las primeras hembras bruno pastel y sólo a partir entonces comenzaremos a obtener una preciosa estirpe de verderones en bruno pastel. La unión del gen bruno y la deligación del gen ágata produce en la librea del ejemplar un fenotipo altamente atractivo para los aficionados que gusten de los tonos pardos. En esta alianza, entre el bruno y el pastel, la feomelanina juega un papel muy importante en la selección de esta combinación. El objetivo está en lograr la mayor saturación posible de los pigmentos melánicos, incluyendo la feomelanina que aporta una tonalidad envolvente rica en matices cálidos que deben ser y son los obligatorios en esta combinación de mutaciones, no sólo en el verderón común, sino también en el canario de color o en el jilguero. Al ser tan protagonista la feomelanina en esta combinación es inevitable decir que se aprecia mejor en las féminas. En las fotos que se adjuntan en este artículo podemos ver una pareja de bruno pastel, donde el macho podría pasar desapercibido entre los aficionados por su similitud con los isabela. Sólo la estricta selección logrará dar el protagonismo que realmente merece el verderón bruno pastel. Tratándose, sin duda, de una mezcla de mutaciones que está aún por explorar entre los aficionados al verderón.
El Isabela Pastel Se trata de una triple combinación, conocido entre los aficionados como el “satiné de ojos negros”. Para poder obtener dicho genotipo deberemos lograr que confluyan en un mismo cromosoma Z el gen ágata, el gen bruno y el gen pastel. De nuevo el fenómeno de croosing over deberá actuar a favor para lograr la triple combinación. Es importante señalar que el verderón isabela no es más que una combinación de las mutaciones ágata y bruno. Al estar albergadas en un mismo cromosoma y a una distancia suficientemente pequeña como para que su deligación sea poco probable; la OMJ bautizó a esta combinación como Isabela, otorgándole en el canario de color la categoría de serie melánica. En otros lugares, como por ejemplo en los países Bajos, dicho fenotipo se le llama “Bruin-agaat” que en español significa Ágata-Bruno o, mejor dicho, Isabela.
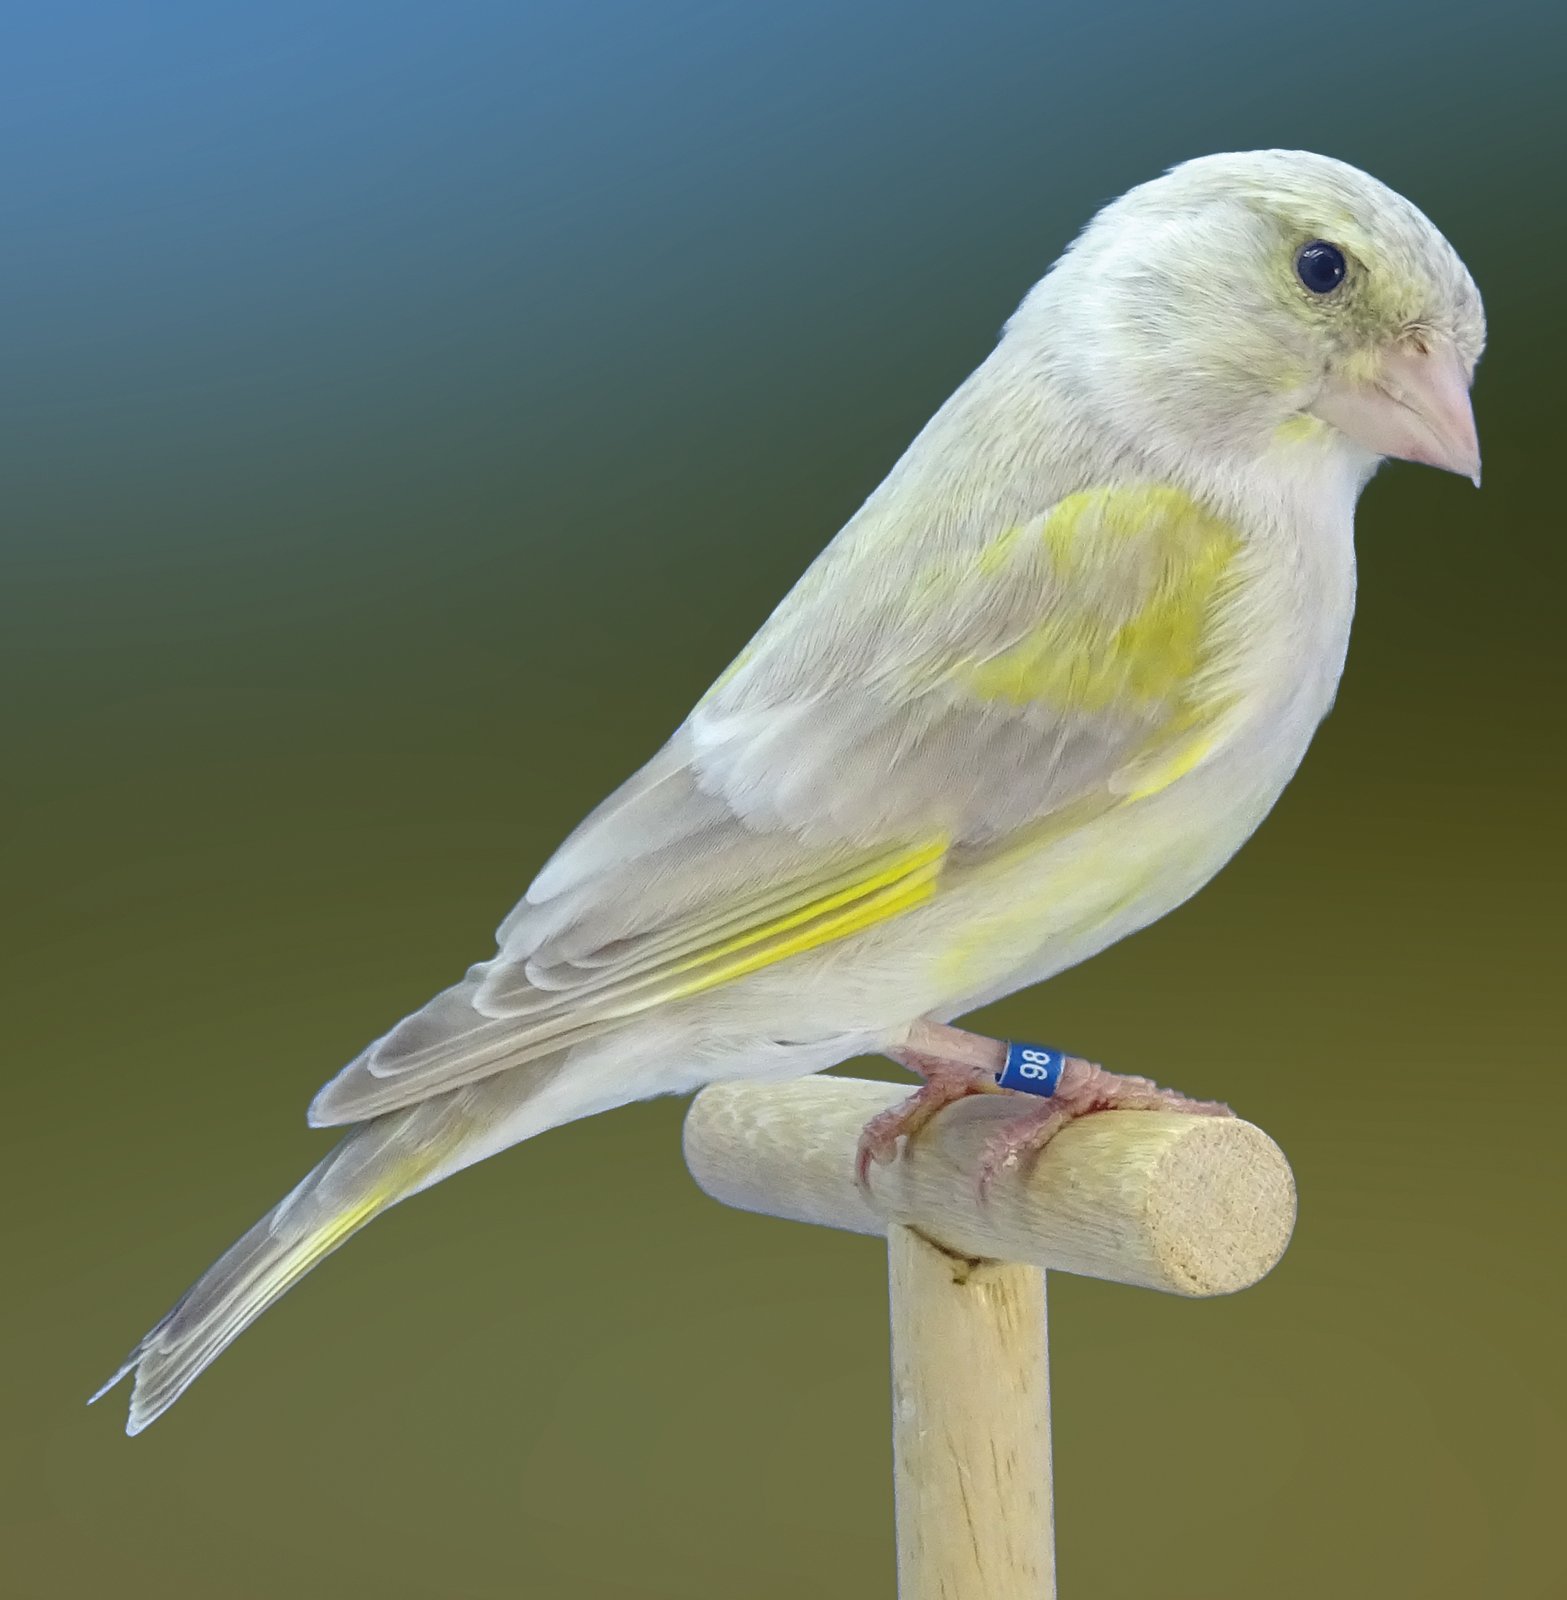
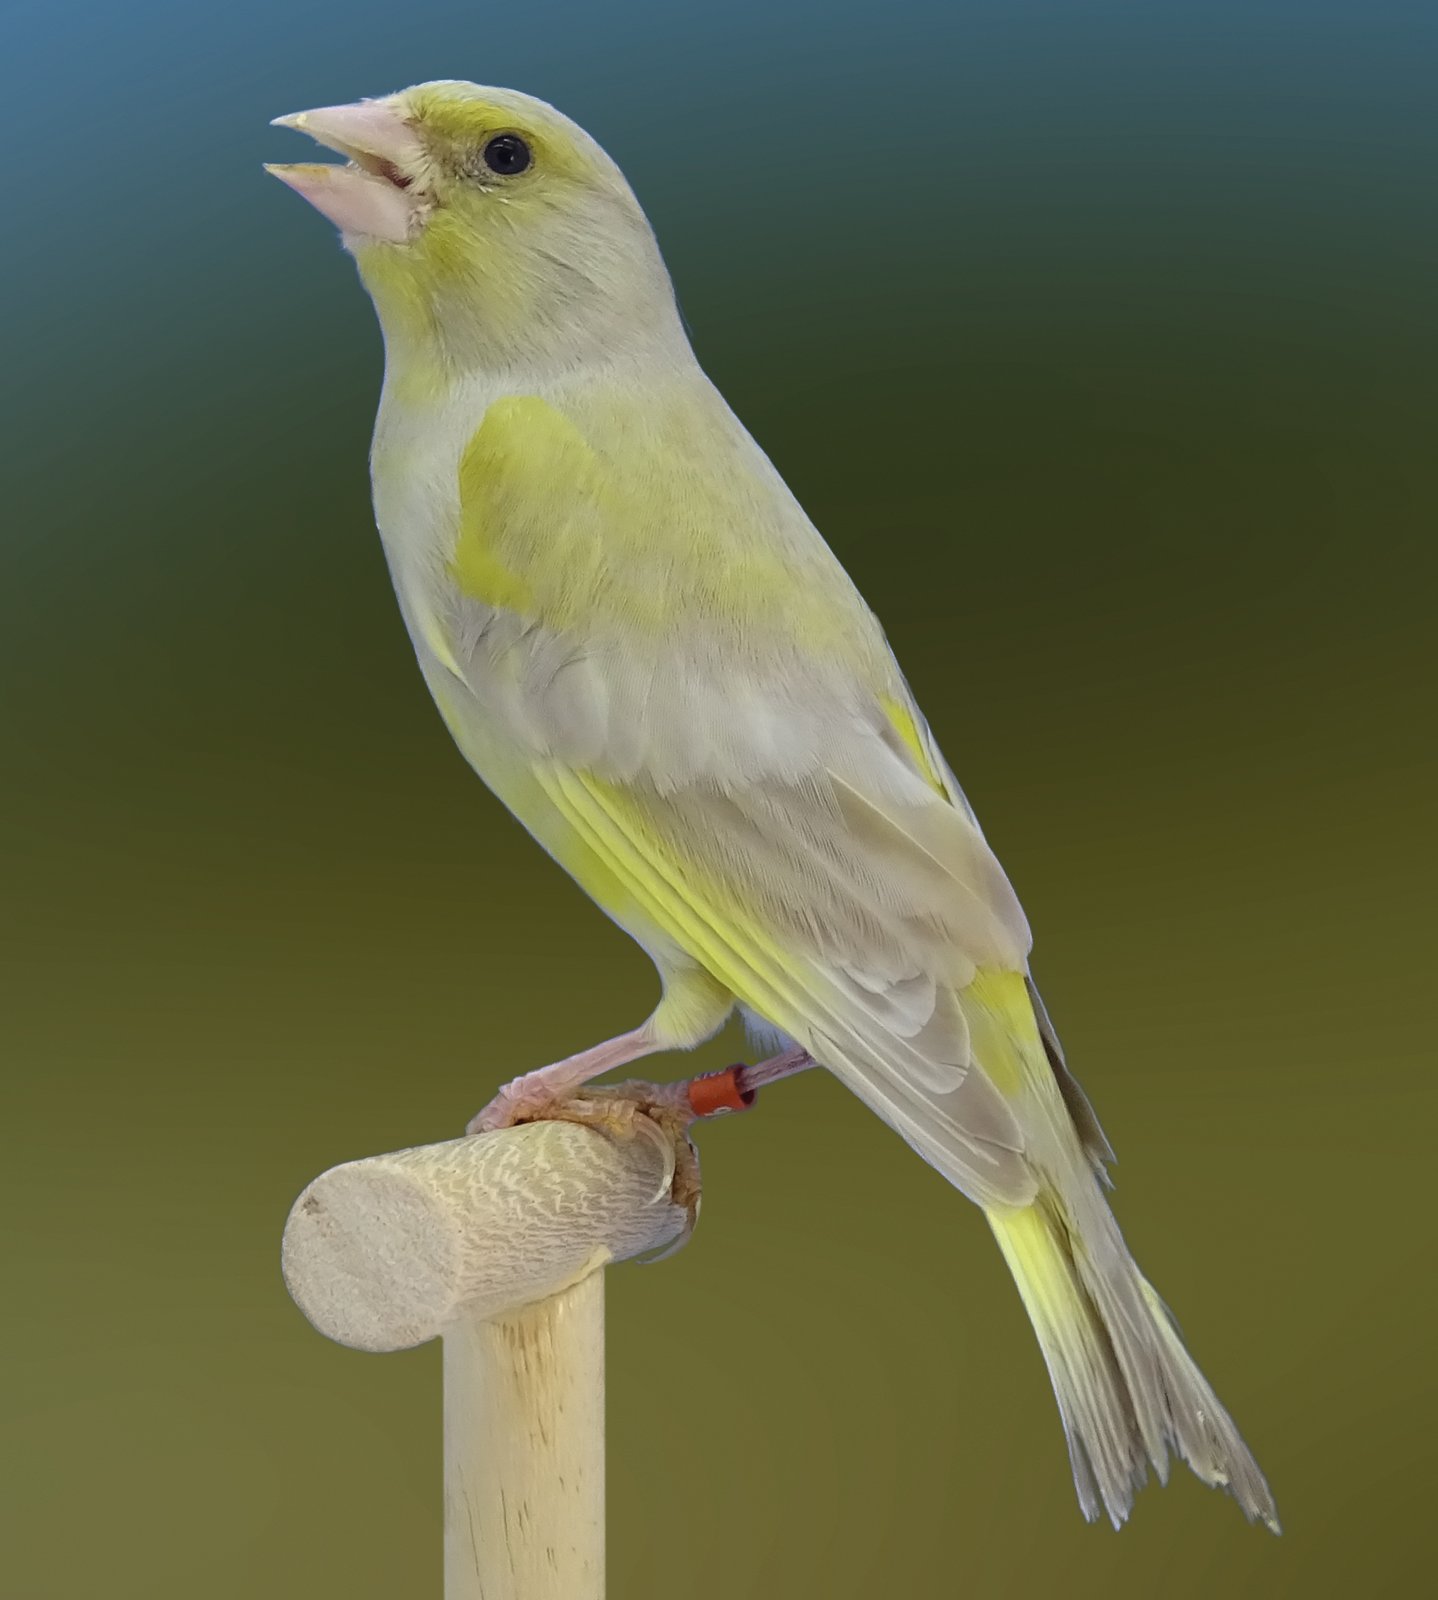
En esta combinación el reto para el aficionado que pretenda seleccionarla estriba en la búsqueda de un tono suficientemente diluido como para dejar claro que se trata de un sujeto isabela pastel pero no demasiado diluido como para parecer un ejemplar casi lipocrómico. Otra combinación que merece la pena mencionar es el satiné pastel donde en un mismo sujeto confluyen el gen satiné, el gen bruno (gen para la eumelanina marrón) y el gen pastel. La simple actuación del gen satiné produce una extradilución. Aunque gracias al gen bruno unido al anterior factor produce un fenotipo ligeramente melánico debido a la tolerancia del gen satiné con la eumelanina marrón. No obstante, al actuar también el tercer gen, el pastel, produciría como resultado un fenotipo prácticamente lipocrómico, similar al verderón lutino, conocido como satiné diluido en canaricultura. En definitiva, la confluencia del gen satiné y pastel producen un fenotipo altamente diluido que el factor para la eumelanina marrón (bruno) no puede contrarrestar dando a la combinación satiné pastel un fenotipo carente de interés. Esto es debido a que no aporta ningún matiz o tonalidad distinta, con identidad propia, a la librea del verderón común.
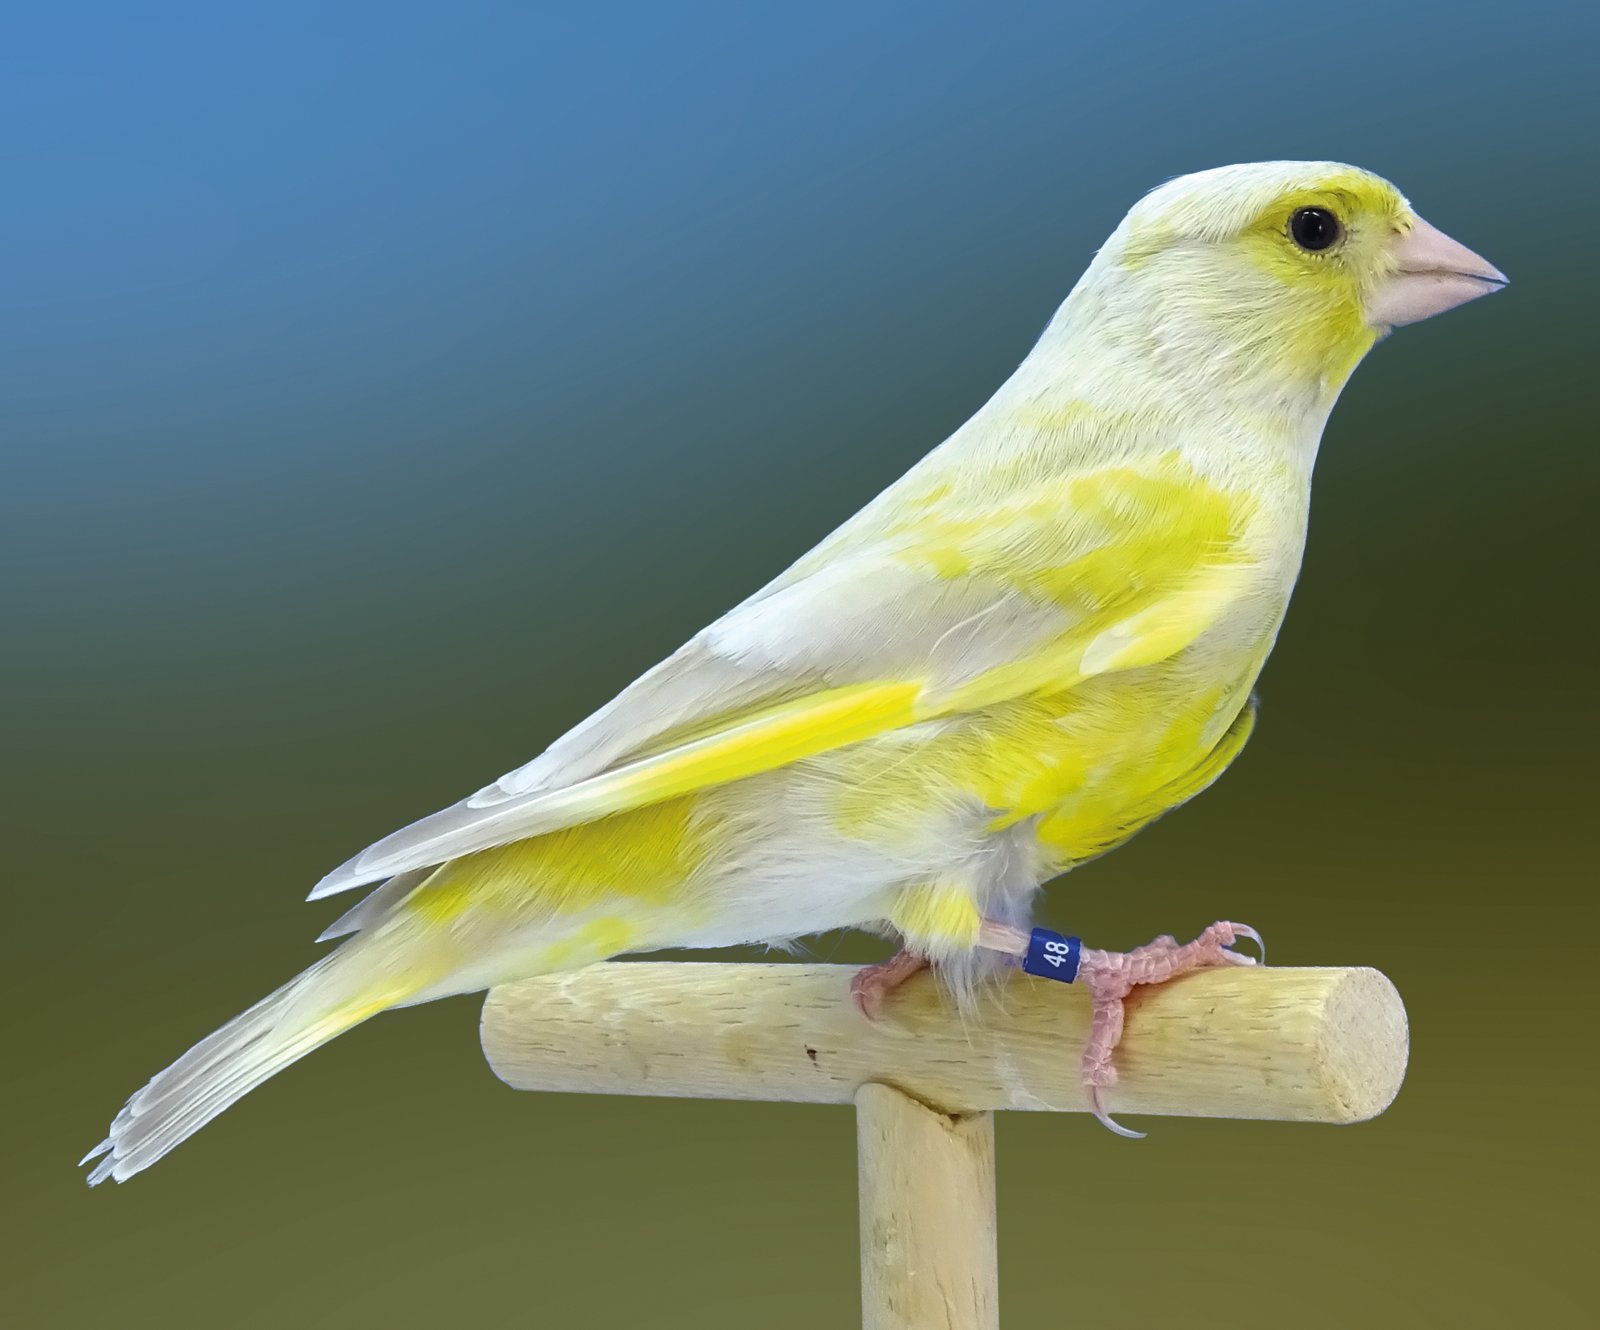
El Verderón Pastel y el Verderón Ala Gris Estas son dos mutaciones que aparecieron casi en el mismo tiempo pero en distintos lugares. Los primeros escritos al respecto insinuaban que era posible se tratara de la misma mutación. La hipótesis inicial era plausible, sin lugar a dudas, ya que se trataban de dos “pasteles”. Sin embargo, con el tiempo y el estudio de los factores las diferencias han dado paso a nuevas hipótesis. El factor “español”, más conocido ahora como ala gris, tiene una dilución más bien irregular que en un primer momento afecta al centro de la pluma pero con bruscas interrupciones de depósito melánico combinadas con líneas o pequeñas barras, perpendiculares a la pluma, altamente oxidadas. Además, en este factor el raquis aparece casi inalterado, sin diluir. Tampoco parece alterar la feomelanina que se muestra en su máxima expresión. Por supuesto, el lipocromo tampoco aparecerá alterado por este factor español. En resumen, el único pigmento que logra atenuar el factor español es la eumelanina, apreciándose como si de un clásico se tratase la feomelanina, la tonalidad del raquis y el lipocromo. Por otro lado, el factor “Belga”, o mejor dicho de los Países Bajos, produce un efecto distinto sobre el plumaje. Este factor si altera la feomelanina que sólo es identificable en sujetos de primer año. En cuanto a la eumelanina se presenta diluida con respecto al sujeto clásico de una manera más regular, siendo más severa la dilución en el centro de la pluma y el raquis de la misma. También en este factor el lipocromo aparece inalterado. Para poder visualizar el efecto de ambas mutaciones y sus diferencias se presentan unas fotografías que ilustran este texto.
Es importante mencionar que el factor ala gris en el verderón común no necesita estar vinculado al factor pastel para expresarse en el fenotipo. En el mundo de la canaricultura siempre se ha asociado que el factor pastel está vinculado y/o unido al ala gris, siendo entre ellos complementarios. De hecho, Giovanni Canali nos habla de que el factor pastel es un “gen mayor” de herencia sexoligada que junto con los genes modificadores de origen autosómico (ala gris) producirían el fenotipo ala gris en el canario (Canali, 2016). Teoría que también avala Diego Crovace (Crovace, 2017). Además hasta hace muy poco al canario ala gris se le denominaba como “Pastel ala gris”. En un futuro espero que podamos observar híbridos machos y hembras de verderón común ala gris x canaria ala gris o viceversa para con ello poder clarificar si existe una sintenia real entre ambos genes y con ello poder extrapolar los estudios y teorías sobre la herencia de citado factor ala gris a ambas especies.
Vías de selección La gran mayoría de aficionados se han encontrado en algún momento desconcertados por que no sabían clasificar o denominar al ejemplar que tienen ante sus ojos. Ni mucho menos hablar de todos aquellos que vemos con frecuencia por fotos, o incluso vídeos, que habitualmente no tienen ni el mínimo de nitidez exigible como para poder identificar que ha captado la cámara. Esta es una incógnita frecuente entre los aficionados a los exóticos o indígenas que, en realidad, no deja de ser un aliciente más para todos estos entusiastas que se aventuran con otras especies distintas al canario. De todas maneras, este singular serinus no está exento de citada peculiaridad. Aunque, en la gran mayoría de los casos, todo ejemplar que crea dudas sobre su denominación es descartado “ipso facto” casi sin dar margen a que dicho ejemplar posea un nuevo factor o mutación. Esta acción de descartar ejemplares fuera de tipo es una virtud que debería potenciarse más entre nuestros indígenas y más especialmente entre los aficionados al verderón común. Desde el punto de vista de un juez, cuando se encuentra varios verderones en un grupo de mutados, más frecuentemente de lo que me gustaría, te encuentras con, al menos, dos o tres ejemplares que son muy difíciles de denominar. En muchos casos, se presentan tan destrozados de pluma y sucios que ni una comisión de expertos podría acertar con su denominación. Sinceramente, considero que es un buen momento para comenzar entre todos a valorar más positivamente la selección, y no la cría “a lo loco”, sobre ejemplares con un tipo cercano al estándar o ideal de belleza. Es el momento de que la prioridad sea criar con parejas donde el macho y la hembra posean la misma mutación, sin que ninguno de ellos sea portador de alguna otra mutación. En definitiva, considero que debemos dar prioridad a la estabilidad en las mutaciones del verderón común. Dar prioridad a una selección muy estricta es aún más importante cuando hablamos de la mutación pastel. La gran cantidad de fenotipos que puede llegar a ofrecer, más aún combinada con otras mutaciones, es un hecho que debemos controlar. Ejemplares excesivamente diluidos son los primeros que deberían ser descartados. En realidad, el factor pastel muestra todo su potencial cuando se expresa en el mayor grado de oxidación posible, es así como la identidad del factor “pastel” muestra su capacidad de diluir de manera uniforme. En canaricultura la búsqueda de un tono más saturado, con contraste, es casi la premisa de todos los factores que posee el canario, años y años de selección han ido en ese camino. A día de hoy no es complejo lograr un tono más oxidado, la complejidad se torna en buscar el tono adecuado, el tono estándar del factor a seleccionar.

Bibliografía Abellán, J.A. (2010). El verderón común y sus mutaciones. Godella (Valencia, España): Ed. Croma press S.A. Canali, G. (2016). Expresiones distintas, un mismo carácter. Nueva Nuestros Pájaros, 34 (4/2016), 8-13. Crovace, D. (2017). El Bruno Pastel. Nueva Nuestros Pájaros, 36 (2/2017), 8-13. Cuevas, R. (2010). Los Canarios Lipocrómicos y Melánicos. Barberà del Vallès, Barcelona, España: Editorial Hispano Europea, S.A. Cuevas, R. (2012). Genética y reproducción aplicadas a la ornitología deportiva: Capitulo 7 genética del sexo. Godella (Valencia, España): Ed. Croma press S.A. del Hoyo, J. & Collar , N.J. (2016). HBW and Birdlife International Illustrated Checklist of the Birds of the World. Volumen 2: Passerines. (Barcelona, España). Lynx Edicions. del Hoyo, J., Elliot, A. & Christie, D.A. eds. (2010). Handbook of the Birds of the World Vol. 15. Weavers to New World Warblers. (Barcelona, España). Lynx Edicions. Jobling, J. A. (2010). The Helm Dictionary of Scientific Bird Names. p. 232. Londres, Reino Unido: Christopher Helm. Van Mingeroet, A. (2009). Pájaros de fauna europea. Godella (Valencia, España): Ed. Croma press S.A. Van Mingeroet, A. (2010). Europese cultuurvogels en hun mutaties. Nunspeet (Güeldres, Países Bajos): Vogelboekhandel J&J. m

Texto: Roberto Jurado Medran. Créditos fotográficos conservados en el artículo.