
La denominación Melánicos clásicos se deriva de los criterios de enjuiciamiento internacionales, aunque a menudo, para denominar a los Canarios pertenecientes a este grupo, los expertos y los aficionados utilizan también definiciones diferentes como “tipos base” o “viejos tipos”. Considero que la primera denominación es correcta porque los Canarios de color que tratamos constituyen propiamente la base sobre la que se van a ir sumando todas las mutaciones genéticas que inciden sobre la expresión cromática de la librea, de las partes córneas y de los ojos. En resumen todo aquello que es visible para el hombre, es decir el fenotipo. Los genes mutantes presentes en el genotipo intervienen de formas diversas sobre las melaninas y determinan la obtención de otros tipos, los llamados “tipos adjuntos”. La segunda acepción “viejos tipos”, está ya desfasada y creo que no se ciñe mucho al contexto en el que se usa porque de viejo no hay nada en absoluto, salvo la época en la que los tipos en estudio hicieron su aparición.
Entre las siete voces contenidas en la planilla de enjuiciamiento, aquella que más que las otras requiere una elevada experiencia por parte del juez es, sin duda, la voz melaninas. El profundo conocimiento de los factores que concurren a formular la correcta puntuación a atribuir a este factor de evaluación es la única condición para expresar un juicio lo más próximo posible al valor efectivo de un Canario de color melánico. La complejidad de los elementos que es necesario contemplar para determinar la puntuación sobre las melaninas de un melánico es, como veremos, indudable. Por esta razón, tanto jueces como criadores no pueden dejar de tener muy claro el concepto de melaninas contenido en los criterios de enjuiciamiento. El ajuste exacto de las melaninas a los dictámenes del estándar es siempre motivo de discusión en las manifestaciones ornitológicas. Por este motivo, he desarrollado una particular modalidad de aproximación a la comprensión de este fundamental factor, en la que es necesario diferenciar dos elementos fundamentales: el diseño y la tonalidad.
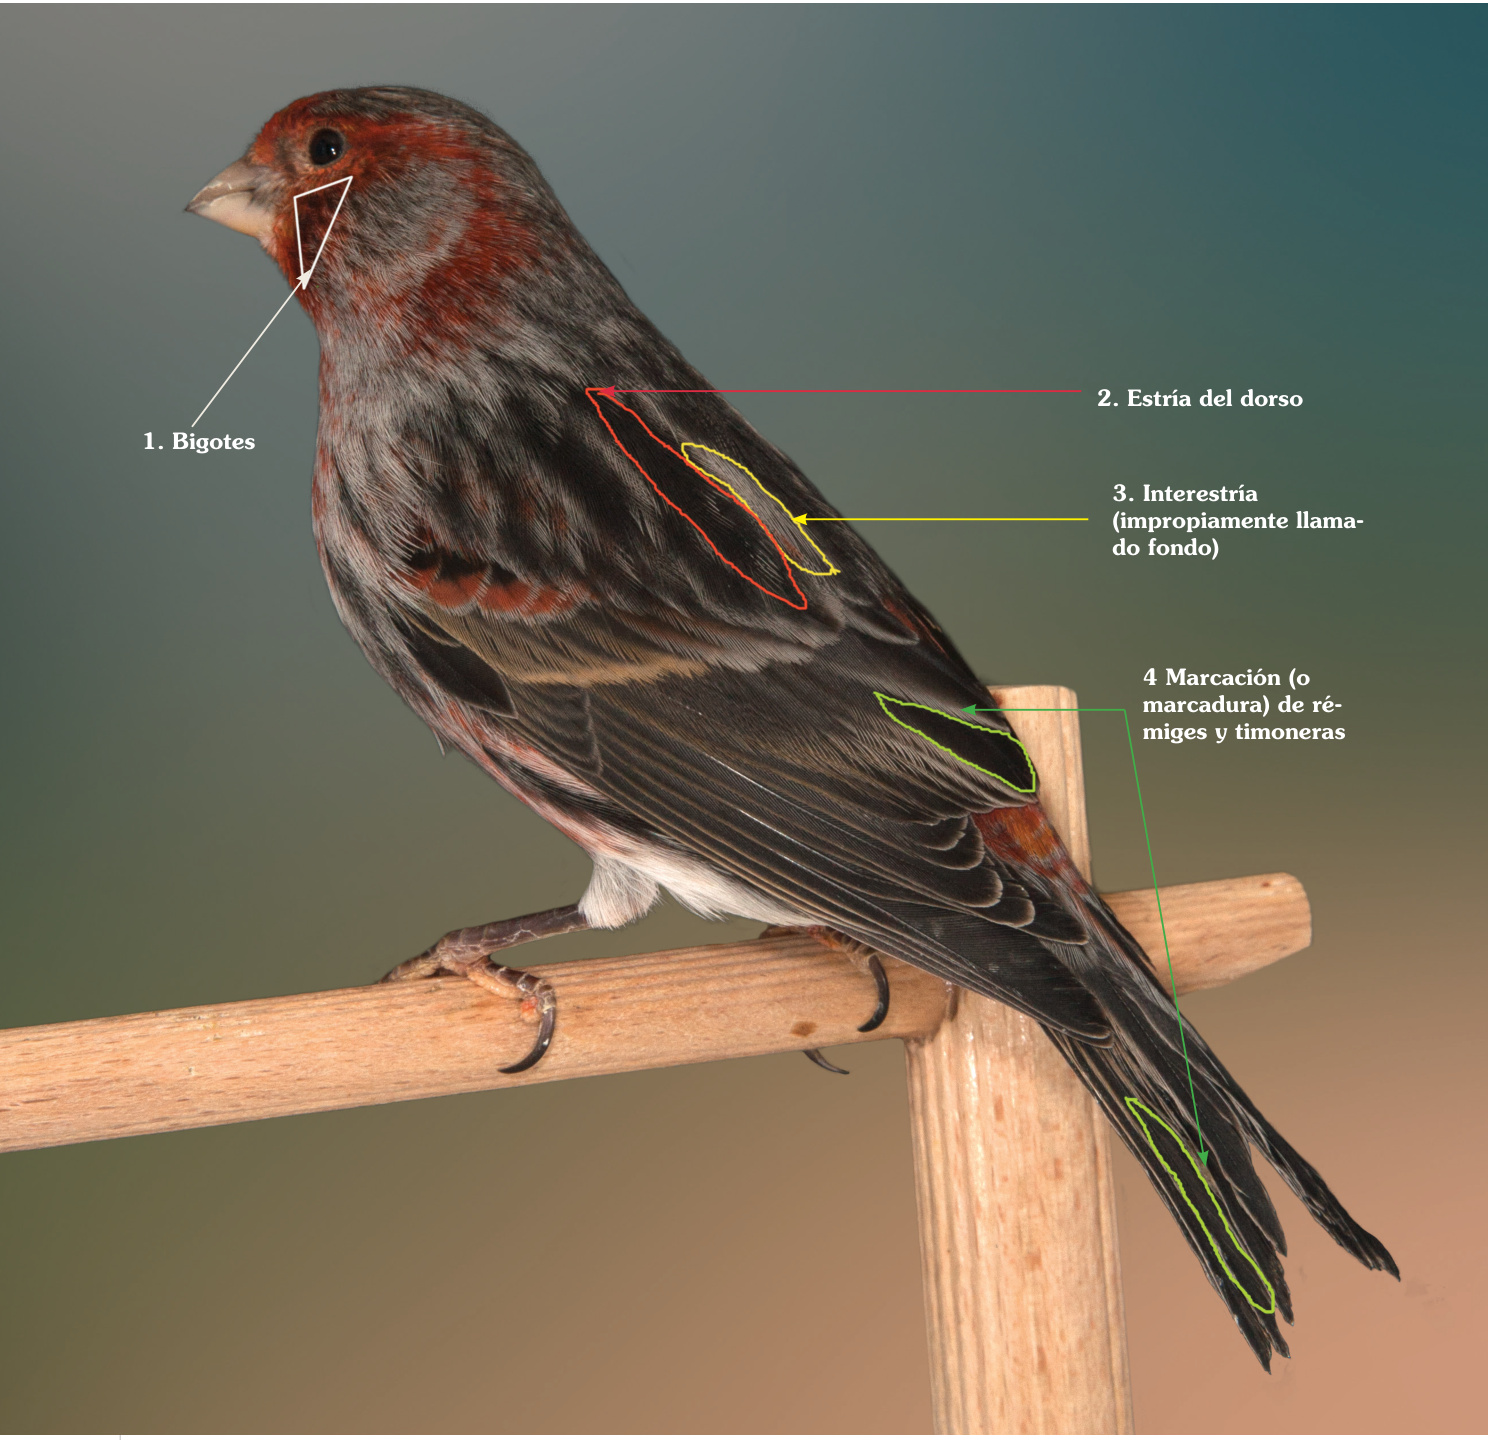
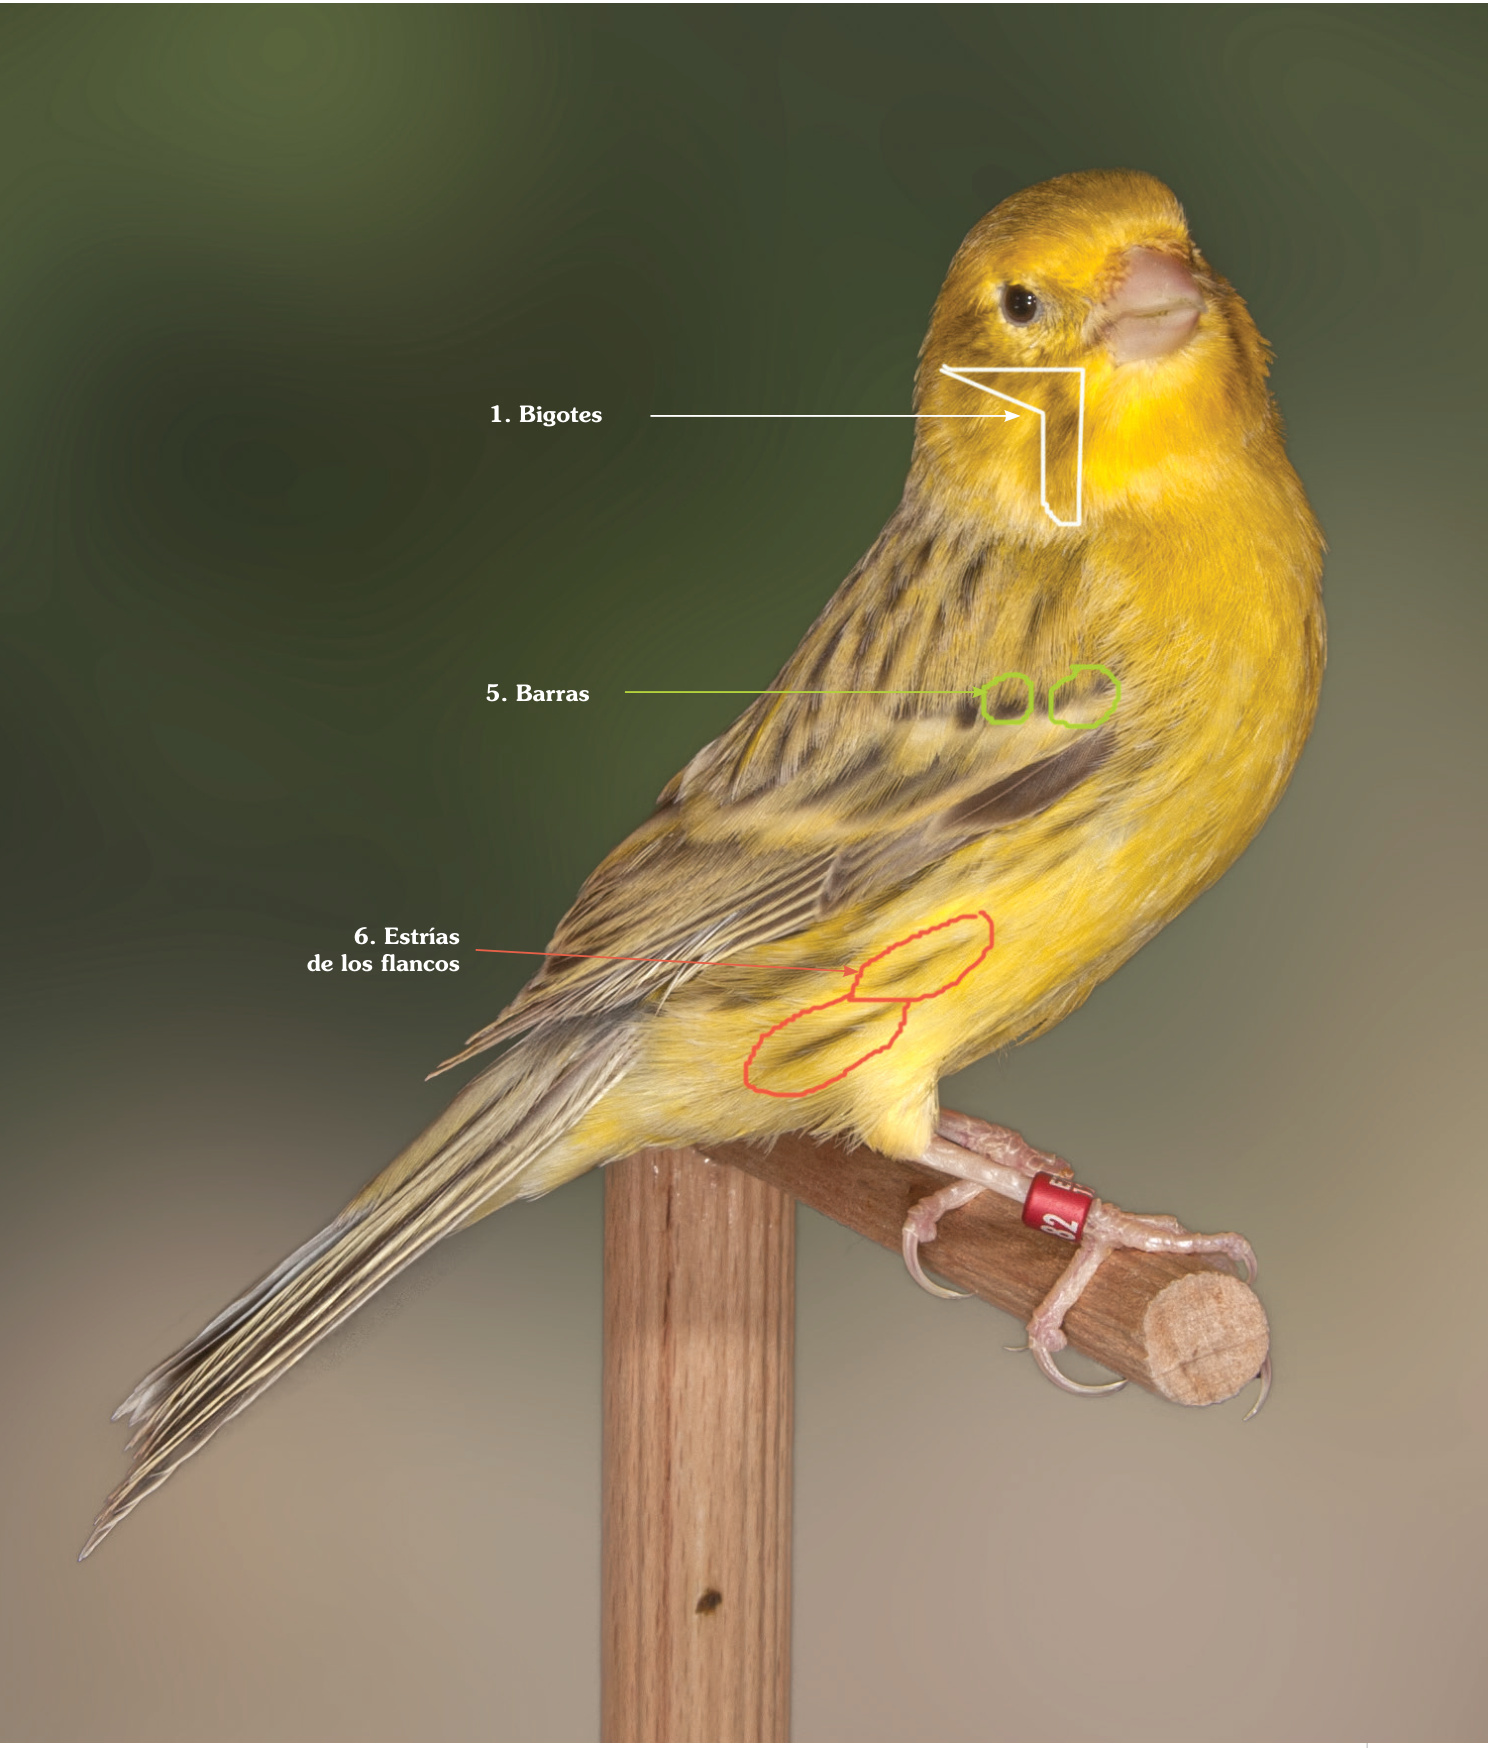
Ambos sufren las variaciones determinadas por el agente mutante que interviene en la modificación de las dinámicas de manifestación cuantitativa/cualitativa de las melaninas sobre el plumaje y/o sobre la piel y/o sobre las partes córneas y/o sobre los ojos de los pájaros. El factor que diferencia a los melánicos de los lipocrómicos está constituido por las melaninas que pigmentan las plumas y, en algunos casos, las partes córneas (patas, pico y uñas). También el ojo se ve más o menos afectado por pigmentos de origen melánico, pero no siempre. En la Canaricultura de color, se ha adoptado el término melaninas para indicar la voz de evaluación de las melaninas que se manifiestan de forma visible sobre el Canario (el subplumaje o el color de la piel no constituyen objeto de evaluación, pero pueden constituir un instrumento válido de indagación por parte del criador y del mismo juez, especialmente frente a ejemplares típicos). Las melaninas que se disponen sobre la librea determinan el diseño, que está compuesto por cuatro elementos: - estrías; - bigotes; - barras; - marcaciones (marcaduras).
Es importante conocer la exacta colocación y composición de cada uno de estos componentes del diseño, porque de ello depende una parte del mérito del Canario melánico.
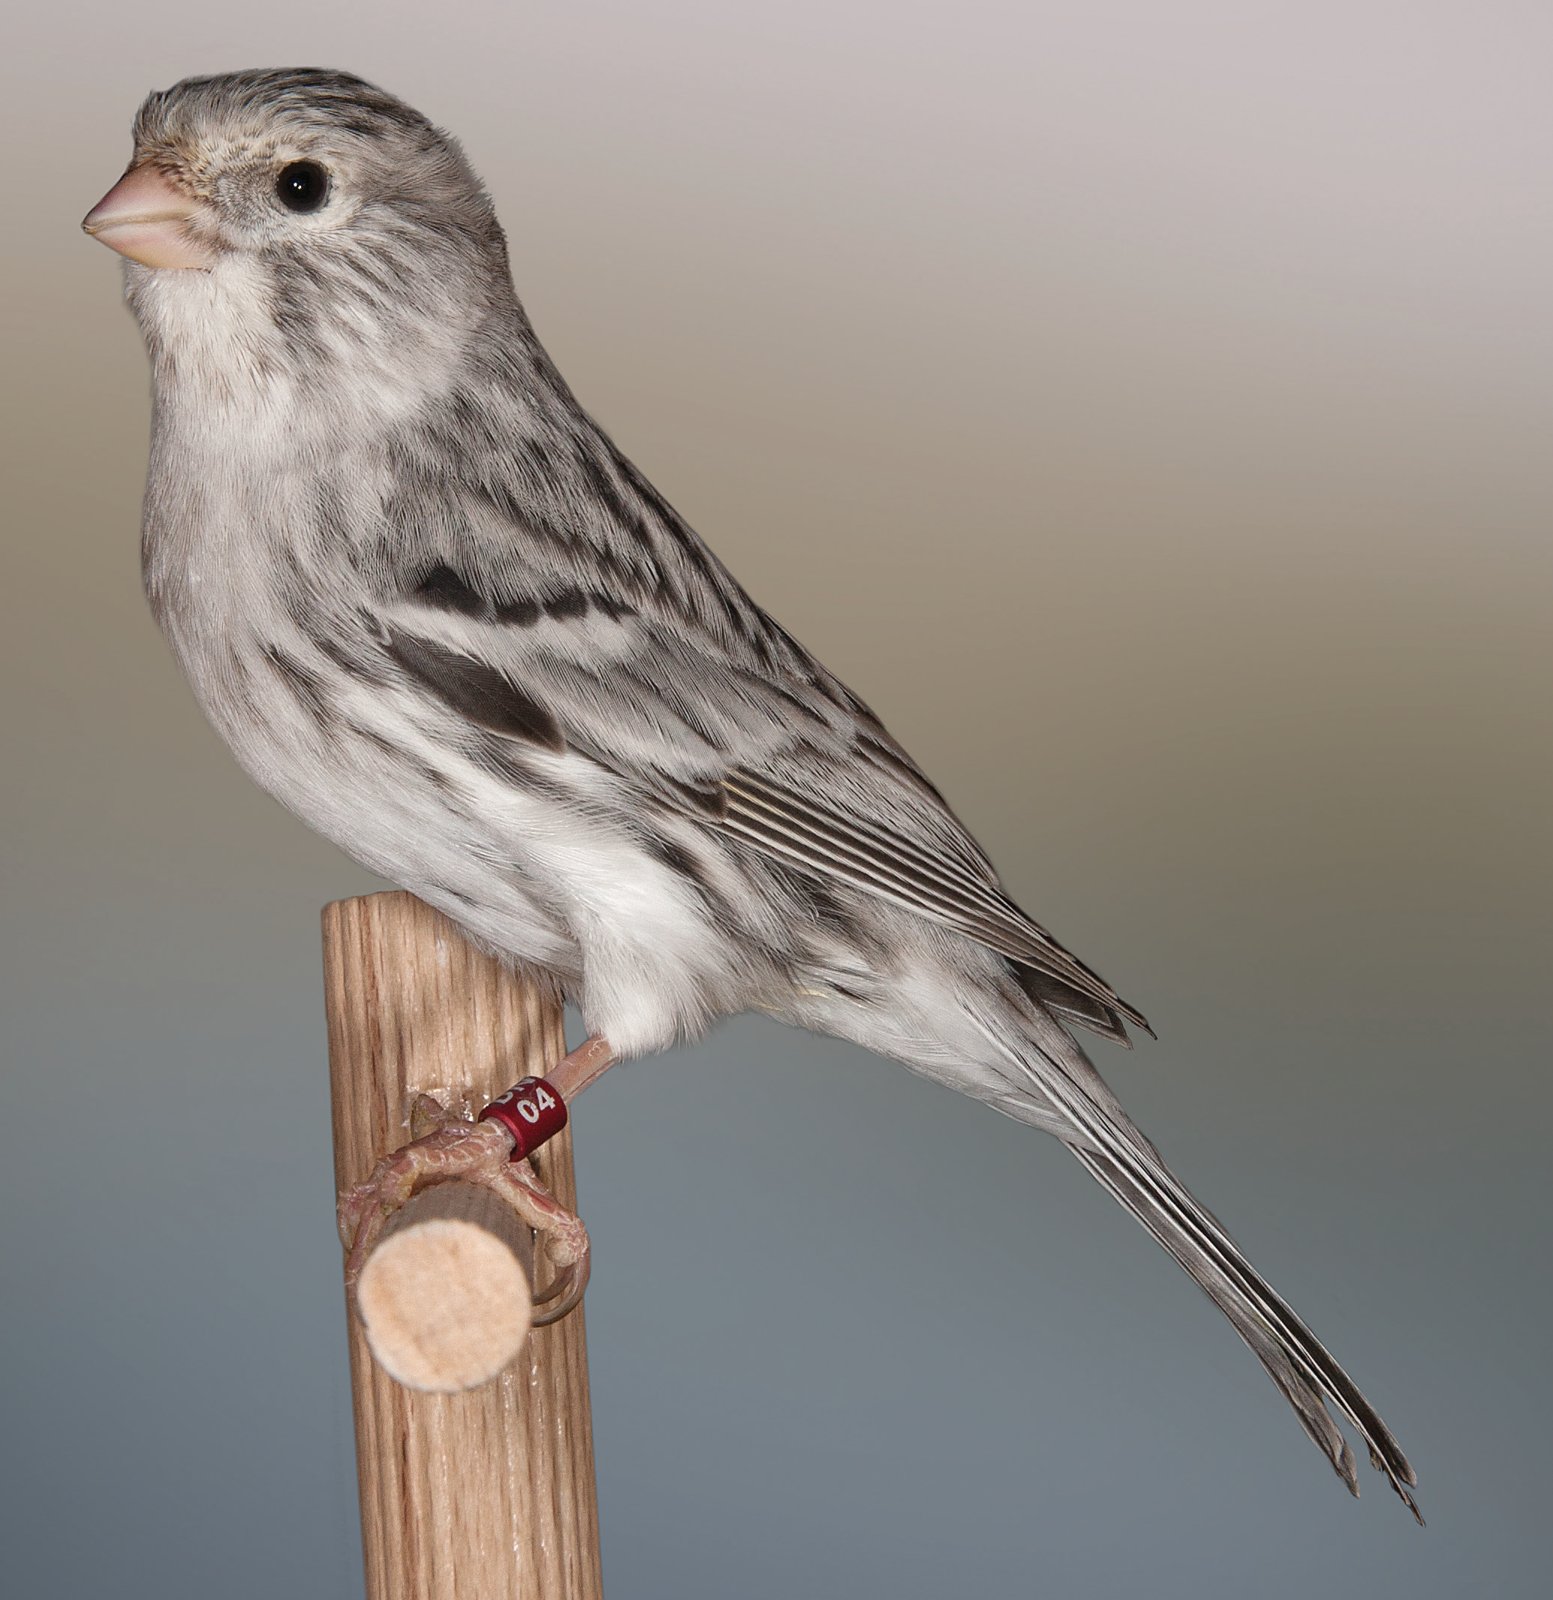
Las estrías se localizan sobre la cabeza, sobre el dorso, sobre el pecho y sobre los flancos. Por lo general, las hembras tienen una mayor dotación de estrías con respecto a los machos, lo que es especialmente evidente sobre la cabeza y los flancos. La diferencia se debe a factores de mimetismo ambiental heredados de los progenitores silvestres del canario. Las hembras tienen una mayor necesidad de esconderse entre la vegetación, especialmente durante el periodo reproductivo, en el que permanecen inactivas en el nido, incubando, camufladas entre las hojas. También la categoría influye en la manifestación de las estrías. Los intensos tienen diseños de dimensiones más reducidas con respecto a los que manifiestan los nevados y, más aún, los mosaicos. Estas diferencias se deben a la distinta conformación de las plumas, que en los intensos tienen un vexilo más pequeño que en los nevados o en los mosaico. Los bigotes se sitúan a los lados de las mandíbulas. Técnicamente son estrías particulares típicas de los Serinus, de los que desciende el Canario. Son más evidentes en los machos que en las hembras.
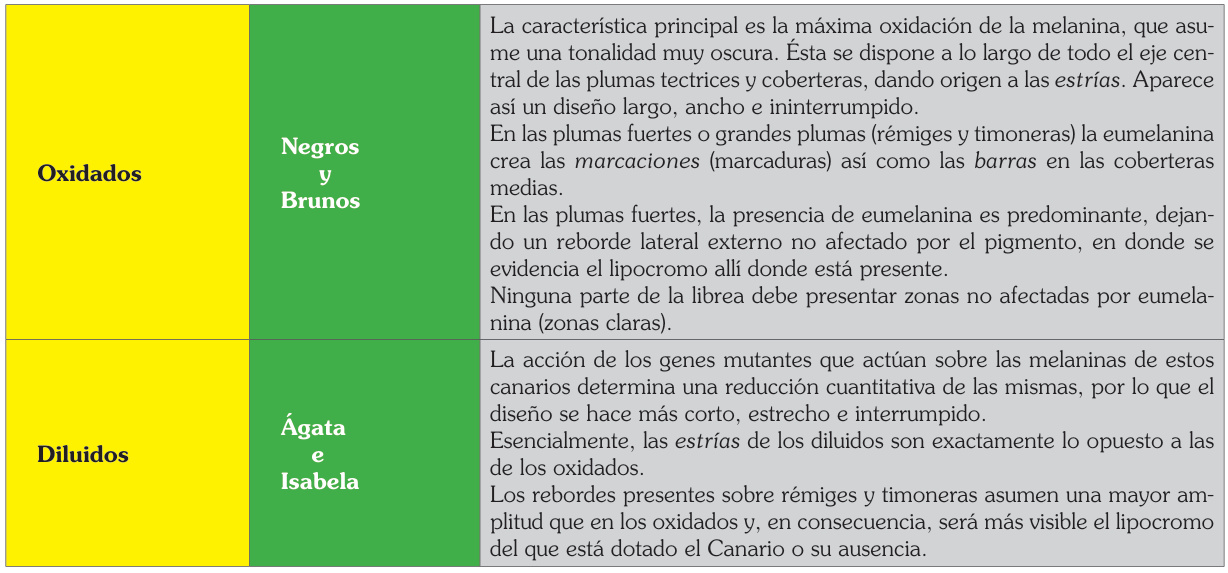
Las barras afectan a las coberteras medias (o coberteras secundarias) y tienen el aspecto de gruesas “comas”, cuya punta se levanta hacia el dorso. Las marcaciones (también llamadas marcaduras, aunque más limitadamente) afectan tanto a las plumas fuertes, es decir rémiges y timoneras, como a las grandes coberteras. Entre estas plumas se incluye también el álula. Las marcaciones son los componentes del diseño que tienen las mayores dimensiones (mayores que estrías, bigotes y barras). Este particular puede ser útil para evaluar mejor la calidad de las melaninas, por lo que la observación de la tonalidad y de la extensión de las marcaciones debe realizarse con mucha atención. Diluidos y oxidados La forma en la que el diseño se expresa sobre la librea genera la distinción, en los cuatro tipos clásicos, entre oxidados y diluidos, cuyas características se recogen en la tabla adjunta.
Las melaninas
Las melaninas son pigmentos de origen proteico, producidos por el organismo de los pájaros, que transforman químicamente el aminoácido fenilalanina, contenido en la proteínas de las que están compuestos muchos alimentos ingeridos por los canarios a través de la dieta (semillas, huevo, leche, soja, fruta, etc.). Su elaboración se produce en el interior de células dedicadas a ello: consiste esencialmente en reacciones químicas de oxidación y está regulada por enzimas específicos, cuya acción de síntesis está controlada por el ADN. Si se ingiere una mayor cantidad del aminoácido en cuestión, no se consigue una mayor oxidación de los pigmentos melánicos puesto que éstos se manifiestan en función de factores genéticos, independientes de la dieta. Obviamente, una carencia del aminoácido en cuestión puede reflejarse en la coloración, pero los alimentos normalmente suministrados a los canarios contienen suficiente fenilalanina para evitar que esto ocurra. Las melaninas se depositan preferentemente en las barbas de las plumas y se denominan de forma distinta según su color y la posición que ocupan en el interior de la pluma.
En los Canarios de color se diferencian en eumelanina negra, eumelanina bruna y feomelanina bruna. Por lo que se refiere a la tonalidad asumida por las melaninas podemos decir: - la feomelanina produce el bruno y toda una gama de colores próximos al bruno claro, como el beis, el avellana, café con leche, etc.; - la eumelanina negra genera el negro y el gris, con diversas tonalidades como el gris hierro, el gris antracita, el negro sepia, etc.; - la eumelanina bruna da origen al bruno. Todas estas expresiones cromáticas tienen naturaleza química y se diferencian de los colores que tienen origen físico. Estos últimos vienen determinados por los particulares efectos de luz generados por las estructuras microscópicas que componen las plumas. Un ejemplo lo tenemos en el color verde visible en, por ejemplo, el Negro de factor amarillo. En este caso, la asociación del pigmento amarillo con las estructuras de difracción contenidas en las plumas, permite la expresión del verde. Los pigmentos de naturaleza química, a través de las particulares estructuras de las plumas, pueden producir otros colores de naturaleza física como el azul, el violeta, etc., si se producen sobre base melánica.
Los estudios desarrollados en estos últimos años sobre las melaninas que pigmentan las plumas han permitido
Considero importante profundizar sobre el tema de las melaninas, dada la relevancia que estas asumen en el contexto evaluativo del tipo. Separar este apartado de aquel en el que hemos tratado de una forma más general las melaninas estriba en un motivo fundamental: durante años, en la canaricultura de color se han aceptado principios que no han sido comprobados científicamente, sino basados en estudios e investigaciones desarrollados sobre las melaninas del hombre y de los mamíferos en general así como sobre el plumaje de aves de talla grande, como el pollo New Hampshire o la Paloma silvestre. Por ello, la aproximación a esta temática hay que desarrollarla con directrices distintas a las seguidas en el apartado anterior. En los últimos años, se ha movido algo en el campo de los papagayos, especialmente en aquellos de gran talla. Pero nada, absolutamente nada se ha estudiado concretamente sobre los pájaros de pequeña talla, Canarios de color comprendidos. Por esta razón, se han trasladado a los fringílidos conceptos extraídos de los estudios desarrollados sobre otras especies.
Con el tiempo, las teorías se han transformado en dogmas y, como tales, no sujetas a discusión salvo decretar su obsolescencia mediante argumentos científicos de nueva adquisición o comparaciones objetivamente irrefutables. Hoy, basándonos en nuevos conocimientos, en la aparición y fijación de nuevas mutaciones, incluso en otros fringílidos, es posible llegar a conclusiones que nos permiten desautorizar conceptos apoyados únicamente en teorías que, por su duración en el tiempo, habían llegado a convertirse en verdades. Mi intención es, por tanto, refutar algunos de los principios sobre los que se ha basado, durante años, la canaricultura de color, pero para ello es necesaria una breve pero útil disgresión previa sobre la génesis de las melaninas Las melaninas son producidas por células de la piel llamadas melanocitos, situadas en la dermis, en contacto con el sustrato germinativo epidérmico y en las papilas de las plumas. De aquí pasan a la epidermis y a las plumas en formación, coloreándolas. Los melanocitos están presentes en todos los pájaros, incluso en los albinos.
Sin embargo, en estos últimos, una mutación genética determina un déficit de tirosinasa que permite el proceso oxidativo. En el hombre, se ha estudiado que el color negro en la piel de los negros o de las pieles expuestas al sol no depende de un mayor número de melanocitos, sino de su mayor actividad. Y esto se puede pensar, hipotéticamente, en hacerlo extensivo a los pájaros. El interior de los melanocitos contiene un aminoácido llamado tirosina, sobre el que actúa un fermento que promueve dos reacciones: la primera, transforma la tirosina en dopa y la segunda, oxida la dopa transformándola en dopaquinona. De lo expuesto, se desprende un primer concepto que se encuentra en la base de la evaluación del tipo: la oxidación. De hecho, el metabolismo de las melaninas es esencialmente de carácter oxidativo. Es éste un aspecto recurrente para establecer el valor del tipo porque de la mayor o menor oxidación de las melaninas deriva una gran parte de la tipicidad o no de un ejemplar melánico.
La mayor oxidación depende substancialmente de la cantidad de tirosina sometida al proceso oxidativo y la dosis viene determinada por los genes que definen la dirección metabólica conectada a la melanogénesis. Por tanto, no tiene importancia la cantidad de tirosina suministrada con la dieta sino el patrimonio genético poseído por el Canario, fruto de la selección. Los melanocitos disponen de una cierta cantidad de dopaquinona, que puede canalizarse en dos direcciones metabólicas: una, que lleva a la formación de dopacromo y, consiguientemente, de eumelanina, y otra que lleva a la formación de feomelanina. En este segundo caso, es indispensable la presencia de cisteína, que se une a la dopaquinona para formar la cisteinildopa. La modalidad con la que actúan los genes sobre la formación y posterior deposición de las melaninas es muy compleja. Basta pensar que en una misma pluma se pueden localizar, alternativa o conjuntamente y en áreas diferentes, bien eumelanina, bien feomelanina. La primera, además, puede asumir diferentes grados de polimerización, mientras que ambas pueden expresarse en modalidades cuantitativamente diferentes.
Para hacernos una idea de lo compleja que es la obra de coloración de una pluma basta con ver cómo los pigmentos se sitúan sobre ella, formando expresiones que parecen pintadas por un artista, por lo bien organizadas que se presentan y por su arquitectura. Un ejemplo de impacto inmediato nos lo proporciona el Jilguero. Observemos la secuencia de colores que manifiestan las plumas en su conjunto -el amarillo, el rojo, el negro y el bruno- y en detalle en la pluma en concreto (las rémiges reuniendo el amarillo, el blanco y el negro y cada uno de estos pigmentos afectando a espacios bien delimitados). Podemos intuir que en la base de este complicado mecanismo se de el concurso de diversos genes, que en tiempos y modos diferentes intervienen en la composición del complicado puzzle de colores que hacen tan fascinante la librea de los pájaros. No conocemos cómo actúa en realidad este mecanismo, pero es sumamente probable que pueda alternar su acción, siempre gestionada por genes, produciendo exclusivamente eumelanina o feomelanina o bien un porcentaje de una y otra.
En cualquier caso, el melanocito es capaz de modular la cantidad de eumelanina o de feomelanina, reduciéndola o aumentándola, siempre en función de los impulsos provenientes de los genes que componen el patrimonio genético de cada pájaro. Sigamos ahora separadamente los dos recorridos oxidativos de las melaninas. Por lo que se refiere a la eumelanina, la dopaquinona se transforma en dopacromo, que sucesivamente pasa a ácido 5,6 dihidroxindólico 2 - carboxílico (DHICA), después a 5,6 dihidroxíndolo (DHI), llamado también índolo 5 6 quinona. Este último compuesto, al polimerizarse, se transforma en los gránulos más pequeños de melanina de color bruno, visibles sólo bajo el microscopio electrónico y destinados o posteriores formas de polimerización, con formación de gránulos cada vez más gruesos, que finalmente pueden asumir la forma de bastoncillos, visibles incluso con microscopio óptico. Pero se ha observado que el proceso de polimerización puede iniciarse a partir de dopaquinona, de DOPA o de DHICA, sin alcanzar el DHI, constituyendo aun así y todo gránulos de melanina más o menos polimerizada.
No hay que asustarse tras la lectura de este complicado recorrido metabólico, cuyo único fin es hacer comprender lo compleja que es la realidad de las melaninas y que no todo es tan sencillo y previsible como podría parecer y como se describe de forma simplificada en muchos textos. Lo único cierto es que el color de la eumelanina va del bruno al negro, según las dimensiones de sus gránulos y de la cantidad de pigmento que lo componen. Más articulado es, sin embargo, el análisis de la feomelanina porque a la “tropa” de este pigmento pertenecen al menos 9 compuestos, muy similares entre ellos, por lo que sería más correcto hablar de feomelaninas, en plural. El análisis de estos compuestos, desarrollado esencialmente sobre embriones de pollo, ha permitido constatar que los gránulos de feomelanina son mucho más pequeños que los de eumelanina. No se sabe cuantos o cuales de estas feomelaninas pueden afectar a los Canarios de color. Tras haber examinado los diferentes recorridos de la formación de las melaninas, veamos cómo se transfieren éstas sobre las plumas y cómo se disponen sobre las mismas.
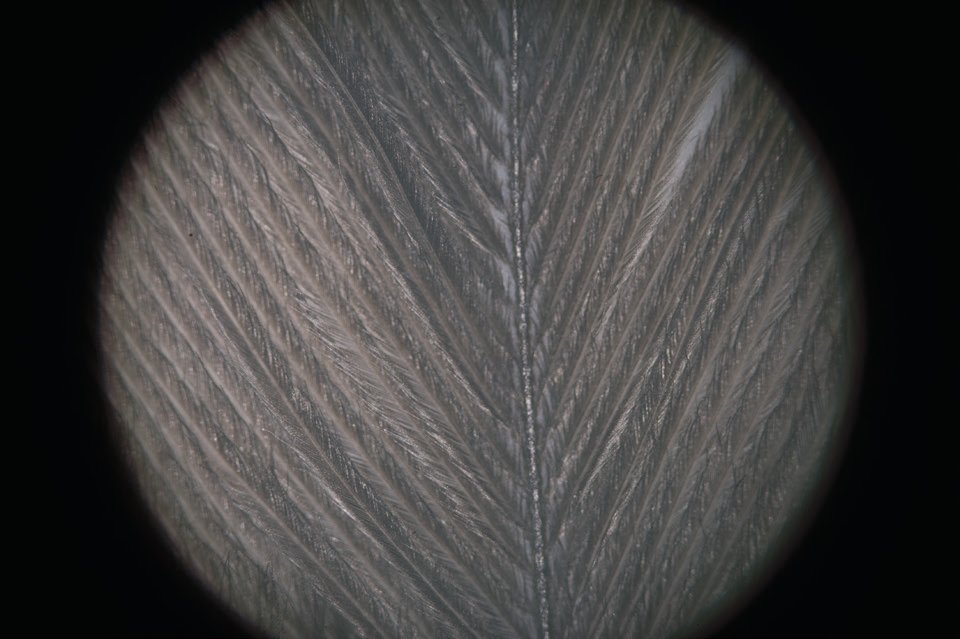
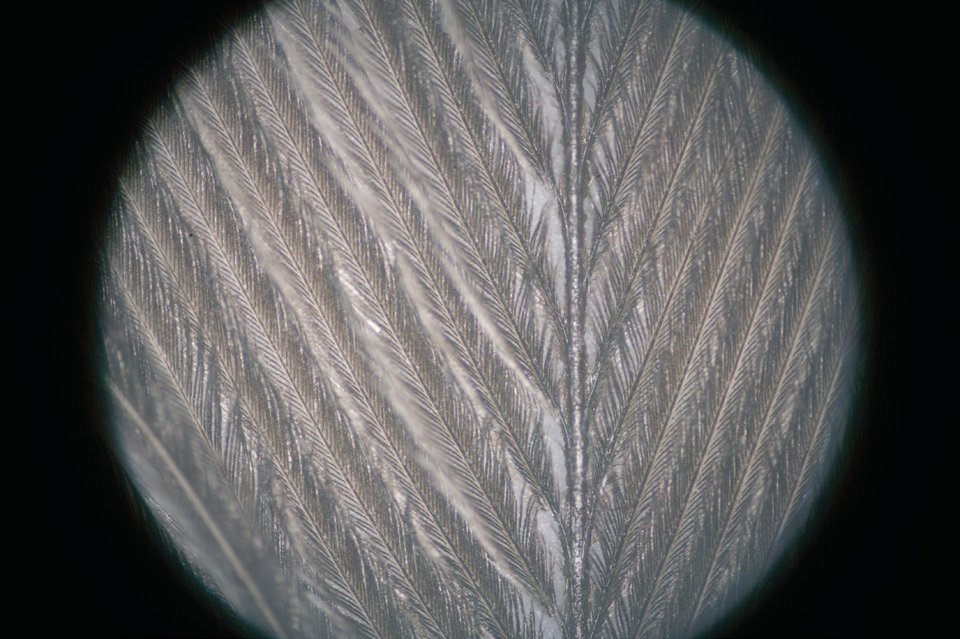
En la última fase del complejo proceso, se forman gránulos de melanina muy pequeños, llamados melanosomas. Estos se agregan entre ellos, formando gránulos cada vez mayores. Conjuntamente con los melanocitos actúan los queratinocitos, células encargadas de la formación de la pluma, compuesta por queratina, las cuales, durante su existencia sufren citomorfosis córnea o queratinogénesis, pasando de células vivas dotadas de núcleo, a células muertas sin núcleo y formando simples láminas córneas, que determinan la queratinización de las plumas. La acción coordinada de melanocitos y queratinocitos permite la obtención de plumajes coloreados en las muy numerosas variedades cromáticas que conocemos. En líneas generales, las melaninas se concentran principalmente en las barbas y en menor medida en las bárbulas, estando estas últimas afectadas esencialmente por lipocromos. Como ya sabemos, en la pluma que ha terminado su proceso de constitución, las melaninas se encuentran siempre en su zona cortical, mientras que en el interior pueden encontrarse gránulos pequeñísimos, que en conjunto determinan colores físicos, como el efecto azul en el Canario Opal.
Para concluir este examen de la génesis de las melaninas y de su estructura y colocación en el interior de la pluma, considero útil mencionar algunos estudios desarrollados sobre palomos porque de ellos derivan cuestiones válidas para explicar algunos aspectos de las melaninas en los Canarios de color. Así, se ha comprobado que no es verdad que allí donde está presente la eumelanina no haya feomelanina y viceversa. Esencialmente, en las zonas donde aparece el negro (allí donde en teoría hay eumelanina negra) hay también, aunque en un porcentaje mínimo, feomelanina. De la misma forma que se han descubierto trazas de eumelanina en lugares de la pluma en las que se da una intensa presencia de bruno (entendido como feomelanina). A día de hoy, además, no hay ninguna investigación capaz de asociar el color de la pluma visible a simple vista con una determinada composición química, sobre todo eumelánica, porque el proceso de polimerización es capaz, con una misma composición química, de dar todos los tonos intermedios entre el bruno claro y el negro que nuestros ojos pueden apreciar.
Después de haber hablado de todo esto, para hacer más útiles los conceptos expuestos es necesario recurrir a ejemplos prácticos, con el fin de hacer asequibles las cuestiones que quiero transmitir. Uno de los dogmas de la canaricultura de color, al menos hasta hace poco tiempo, afirmaba que la eumelanina se coloca en el centro de la pluma, determinando el diseño (es decir las estrías) mientras que la feomelanina se dispone en la periferia de la pluma. Por consiguiente, todo lo que se manifiesta a nivel de interestrías en términos de pigmentos melánicos, se atribuía a las feomelaninas. Demostraré que esto no se corresponde con la realidad. Para ello me referiré a la mutación Satiné, aunque podría utilizar otros ejemplos, ya que podría llegar a las mismas conclusiones basándome en otras mutaciones. Sabemos, que en los Canarios de color, el gen mutante llamado satiné causa la inhibición total de la eumelanina negra y de la feomelanina, mientras que la eumelanina bruna queda diluida, por lo que su tonalidad se transforma en beis. Esto es lo que nos dice el estándar C.O.M./O.M.J. y lo que a la vista se apercibe sobre el manto de un Satiné.
Sabemos que lo que en canaricultura de color llamamos Satiné es genéticamente un Bruno sobre el que actúa la mutación que nos ocupa. Para exponer lo que pienso, necesitaría comparar un Negro Satiné con un Bruno Satiné. Pero dado que los Negros Satiné son difíciles de localizar, voy a utilizar como ejemplo el Jilguero, sobre el que se ha demostrado que actúa la misma mutación, como se constata a través de la hibridación realizada entre Jilguero Lutino y Canaria Satiné (nosotros, canaricultores, diríamos Jilguero Negro Satiné por Canaria Bruno Satiné). La prole obtenida incluía machos Lutino (por consiguiente Negro Satiné) portadores (teóricos, por cuanto son estériles) de Bruno Satiné. La obtención de machos mutados confirma que la mutación es la misma por cuanto los dos genes se han “complementado”. De otra forma no hubiesen nacido los machos Lutino y sólo las hembras hubiesen podido manifestar esta mutación. También en el Verderón se han realizado tests de complementación, que han confirmado que se trata de la misma mutación Lutino presente en el Jilguero y en el Canario.
Con la certeza de que estamos ante el mismo agente mutante es ya posible desarrollar comparaciones que nos permitirán comprender cómo, en realidad, la mutación Satiné actúa sobre las melaninas y la verdadera naturaleza de las manifestaciones eumelánicas presentes en el Canario satiné. Comparando un Jilguero ancestral con un Jilguero Lutino es evidente cómo la feomelanina aparece completamente inhibida, mientras que la eumelanina sufre una drástica reducción, pero no se ve de hecho inhibida. En el Verderón es más visible la acción de reducción de la eumelanina negra ejercida por la mutación, hasta tal punto que el Verderón Lutino es casi un lipocrómico, con trazas de melanina sobre el borde de las rémiges y timoneras. Espontáneamente surge la pregunta ¿por qué en el Jilguero la eumelanina negra no desaparece del todo mientras que en el Canario esto sí ocurre? Pienso que las indicaciones dadas sobre el Canario pueden adscribirse a condiciones fenotípicas antiguas y a una errónea interpretación de algunas manifestaciones expresadas por la condición del fondo de los ejemplares menos típicos. Me explico.
- Por lo que se refiere a la eumelanina, es absolutamente evidente que la eumelanina negra del Jilguero es mayor que la del Verderón. No hablo sólo en términos cuantitativos, sino también cualitativos. Un nivel de oxidación de la eumelanina negra mayor resistiría más la acción del gen mutante, expresando residuos eumelánicos que, por el contrario, estarían casi totalmente anulados en presencia de niveles de oxidación de menor entidad. Las observaciones sobre el Canario se remontan, verosímilmente a hace muchos años y ya en aquellos tiempos se describían residuos de eumelanina sobre rémiges y timoneras. Hoy no tengo noticia alguna de Negro Satiné por cuanto no hay criadores que hayan emprendido esta vía. Por esto no hay que excluir que la actual selección haya llevado la calidad de la eumelanina a niveles tales que la expresión de un moderno Negro Satiné pueda ser similar a la de un Jilguero; - El aspecto relativo a la feomelanina tiene sin duda otra explicación. En los ejemplares de menor calidad, y no sólo en los de sexo femenino, se observa que el lipocromo de fondo no es terso sino que se ve alterado por trazas que tienen un color que evoca el de la feomelanina.
La circunstancia de que el Jilguero no evidencie en absoluto feomelanina en la mutación Lutino, aún teniendo una consistente dotación en el tipo base, refuerza mi tesis: lo que aparece residualmente en la interestría no es feomelanina sino eumelanina bruna. - Última consideración: el subplumaje del Negro Satiné es gris, signo de que el Satiné no inhibe completamente la eumelanina, ni siquiera en el Canario. Tras estas explicaciones, podemos hacernos idea de lo complejo del tema y porqué no es fácil hablar en términos absolutos de los diferentes aspectos de las melaninas. Pero todo esto es necesario conocerlo no sólo de cara al enjuiciamiento, sino también desde el punto de vista de la selección, como expondré en el apartado dedicado a la selección de los reproductores, en un posterior número de la revista.
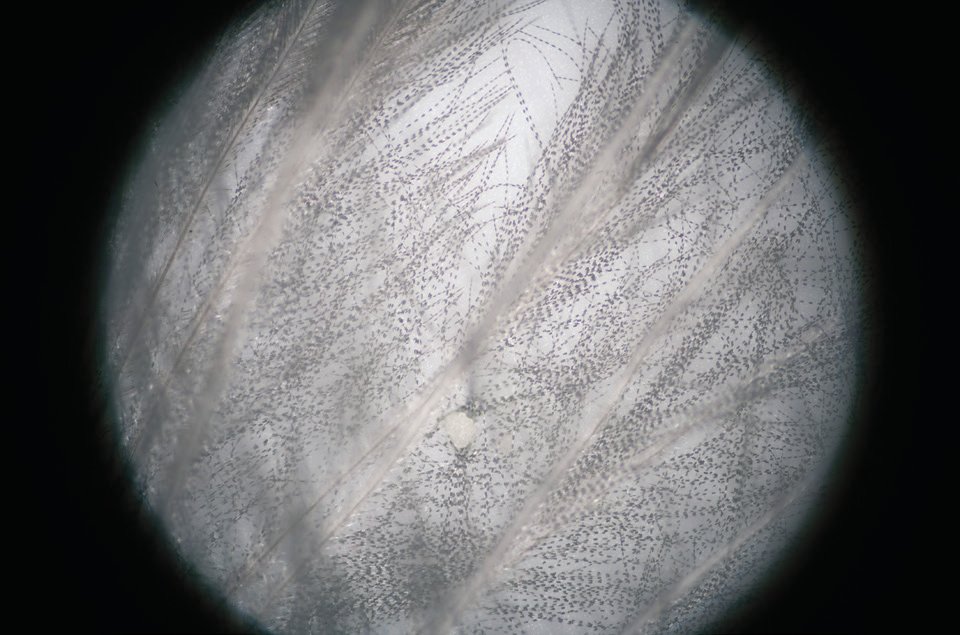
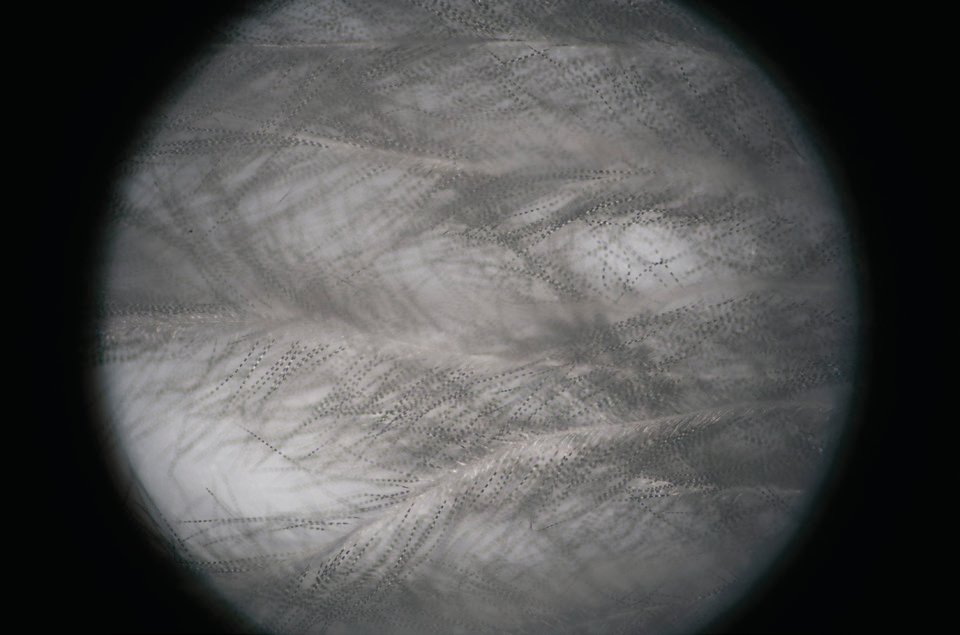
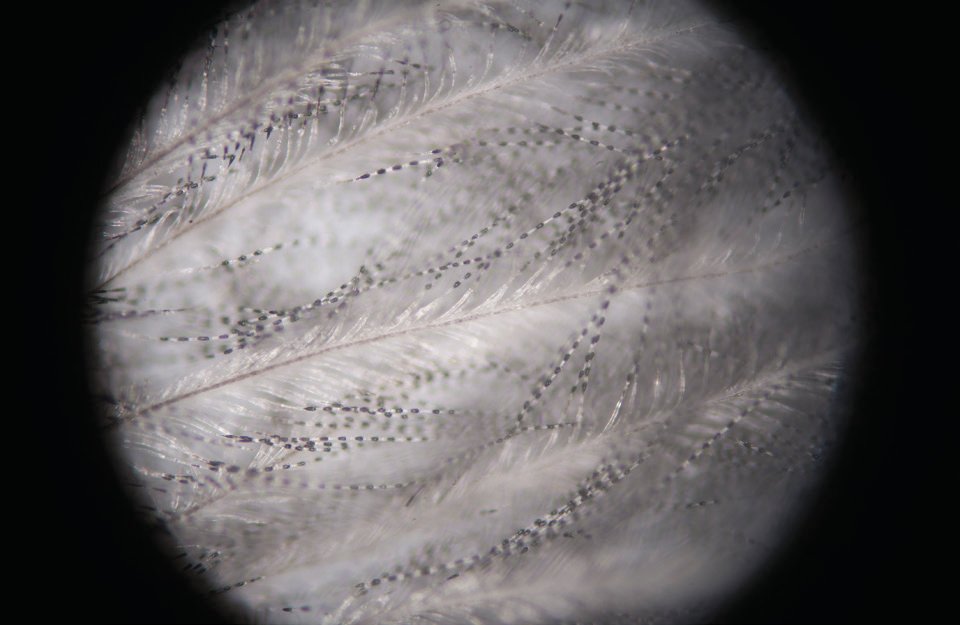
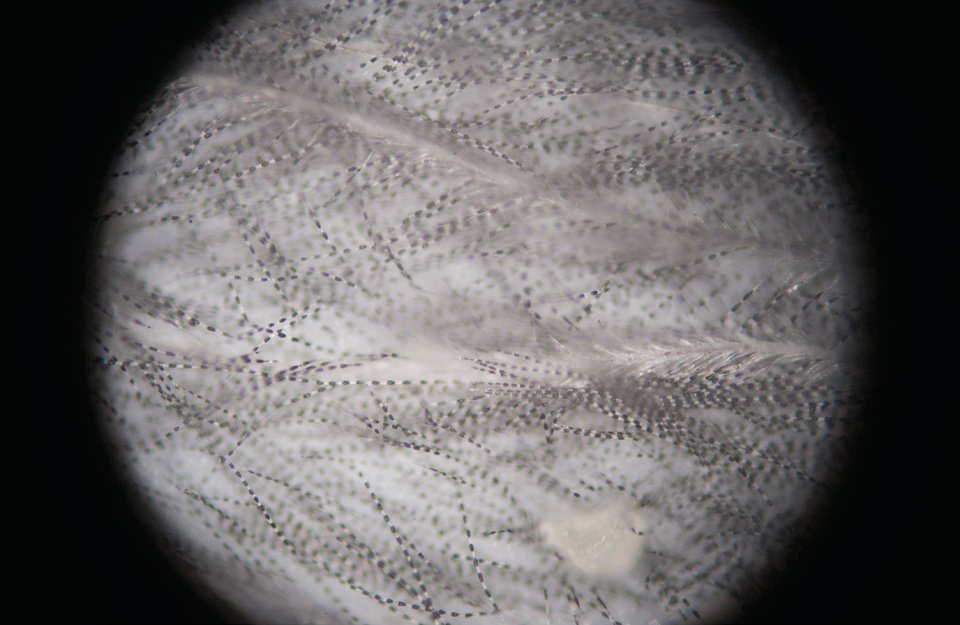
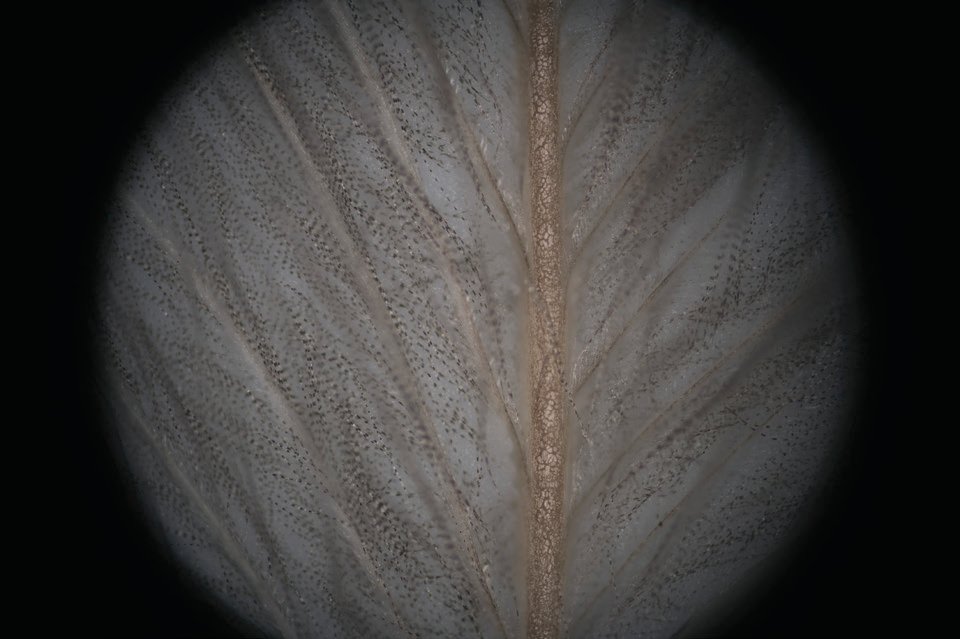
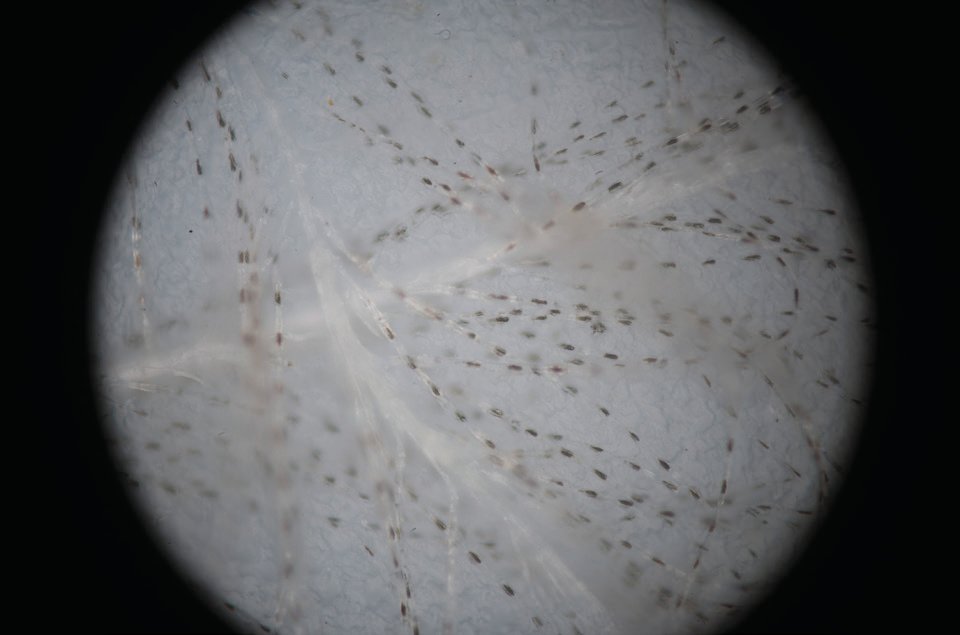
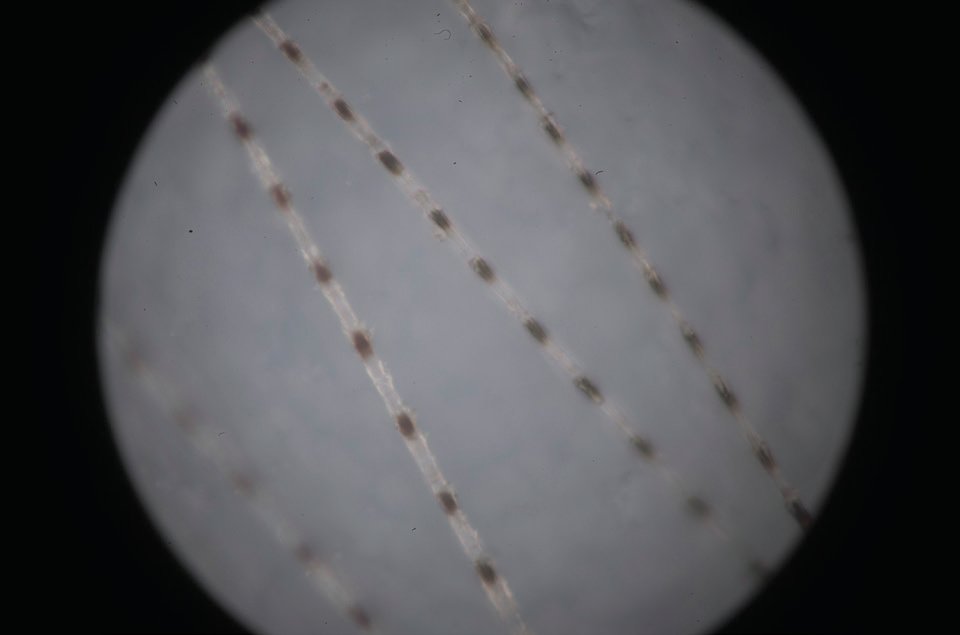
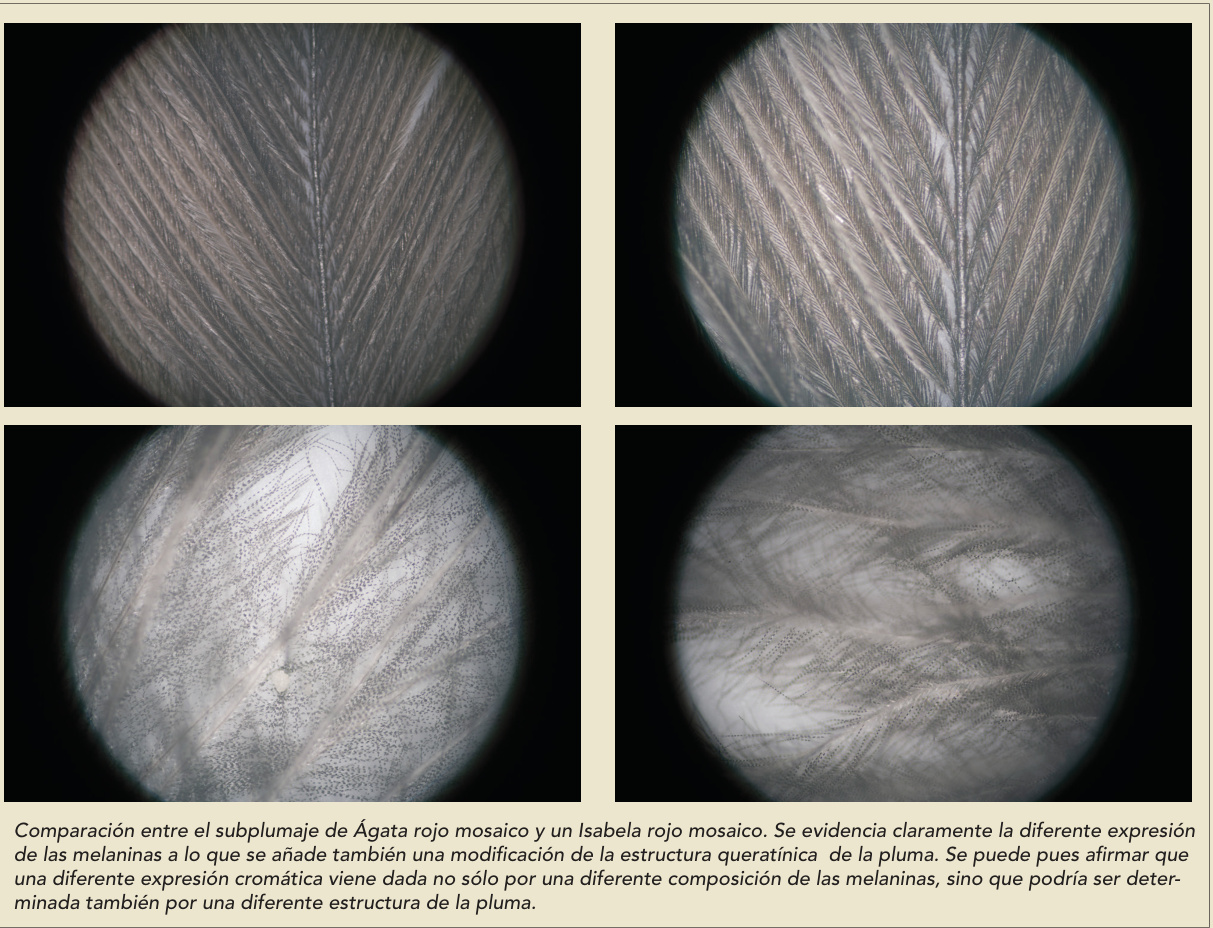
constatar que algunas tonalidades expresadas por las melaninas son generadas por determinadas condiciones con las que las mismas se disponen sobre las plumas. Por ejemplo, lo que a simple vista nos puede parecer gris es en realidad el efecto cromático percibido, porque del examen al microscopio resulta que el gris está constituido por gránulos de melanina negra intercalados con amplios espacios de pluma en los que no hay melanina. La sucesión de espacios vacíos y de ámbitos pigmentados crea así el gris. La eumelanina es también responsable de la pigmentación del pico, de las patas, de las uñas, del ojo y de la piel. Los centros de convergencia Los pigmentos melánicos ocupan zonas muy precisas en el interior de las plumas, denominados centros de convergencia. En particular: - la eumelanina negra y la eumelanina bruna están presentes en la zona “vaporosa” (subplumaje), en el raquis y en la zona central adherente al mismo raquis y forman el diseño melánico; - la feomelanina bruna se localiza a lo largo de los bordes de la pluma y forma el diseño feomelánico.
Las eumelaninas son responsables del diseño y su amplitud, y su longitud y riqueza de pigmentos es variable, como también es variable la cantidad y la extensión de la feomelanina. Los lipocromos pigmentan toda la pluma (o casi), constituyendo el color de fondo, que transparenta entre los centros de convergencia y se manifiesta de forma evidente allí donde hay menor cantidad o no hay melaninas. Así éstos interactúan con las melaninas y contribuyen a crear variaciones cromáticas, que hacen aún más amplia la gama de colores que podemos encontrar en esta fascinante disciplina. La evaluación de las melaninas La evaluación de las melaninas comporta la observación de la expresión de las melaninas presentes sobre el Canario. Las melaninas no sólo pigmentan las plumas, sino también los ojos, las patas, el pico y la piel. Los factores a tomar en consideración son más de uno:
Las interferencias sobre las melaninas
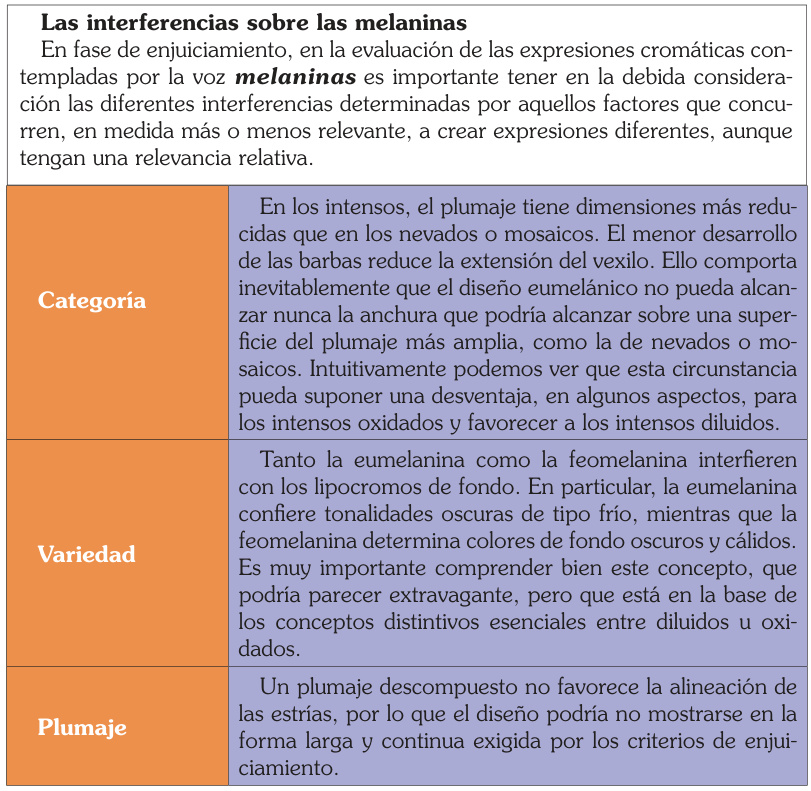
En fase de enjuiciamiento, en la evaluación de las expresiones cromáticas contempladas por la voz melaninas es importante tener en la debida consideración las diferentes interferencias determinadas por aquellos factores que concurren, en medida más o menos relevante, a crear expresiones diferentes, aunque tengan una relevancia relativa.
- Conformación del diseño. Examinar las estrías, barras y bigotes, que se diferencian según la cantidad de melaninas que se exige deban afectar a la librea o de su dislocación sobre la librea misma, conforme a la distinción ya expuesta entre oxidados y diluidos. Insistimos en que en los primeros, el diseño debe ser ancho y largo y con una cierta simetría; en los segundos, el diseño debe ser fino y roto. Pertenecen a la línea de los oxidados los Canarios denominados Negro y Bruno. Se incluyen entre los Canarios de melaninas diluidas (reducidas) los Canarios llamados Ágata e Isabel. Estos cuatro constituyen los tipos base sobre los que se implantan todas las mutaciones adjuntas; - expresión de las marcaciones sobre rémiges y timoneras, directamente relacionada con el concepto de borde. Este último es la zona que se extiende a lo largo del vexilo externo de las plumas fuertes no afectadas por eumelanina o bien en medida reducida. En los oxidados, este borde debe ser lo más limitado posible. Por el contrario, en los diluidos conviene que sea muy amplio.
En este contexto, se evalúa también, cuando sea necesario, la ausencia o no de eumelanina en el raquis de las plumas; - tonalidad melánica del diseño. A cada tipo le corresponde una particular tonalidad de las melaninas, que debe ser uniforme sobre toda la librea. Una tonalidad distinta a la estándar o no uniformemente distribuida será objeto de penalización; - Grado de oxidación, de dilución o reducción de las melaninas sobre la librea. Este factor constituye el punto de inflexión entre oxidados y reducidos. Su comprensión es de fundamental importancia puesto que esta diferenciación se refleja sobre todas las mutaciones que actúan sobre los cuatro tipos base. Este concepto será analizado a medida que vayamos examinando cada uno de los tipos. - Grado de oxidación o reducción de pico, patas y uñas. Para los oxidados y en particular para el Negro (con excepción de algunos tipos) se exige partes córneas oxidadas. Para los diluidos, por su parte, las partes córneas deben ser rigurosamente de color carne, es decir carentes de eumelanina (la feomelanina no se deposita en las partes córneas); - Tonalidad del ojo.
En algunos casos, se exige para ciertos tipos que el ojo sea rojo (ausencia total de melanina) o bien rojizo (ausencia parcial de eumelanina). Cada uno de estos elementos concurre, en diferente medida, en la determinación de la puntuación máxima atribuible a melaninas, que es de 30 puntos, aunque el juez sólo podrá asignar un valor que no supere los 29 puntos, puesto que se admite que la perfección no existe. Para determinar el valor a atribuir a las melaninas de un Canario, cada uno de los aspectos que hemos relacionado debe ser considerado por separado, asignando a cada uno de ellos una puntuación parcial, que concurrirá a determinar el valor global de las melaninas. Aconsejo seguir el orden de cada una de las voces que integran las melaninas ya que una lectura repetida según el orden que sugiero comporta la adquisición de un esquema mental y, por consiguiente, de un método de enjuiciamiento que permite tener una comparación completa y ecuánime, que reducirá notablemente los errores y que además permitirá la comparación entre dos o más ejemplares siguiendo un mismo criterio para cada uno de ellos.
Una vez adquirida la suficiente práctica, este método permitirá un reducción del tiempo en la evaluación de las melaninas y, si fuese adoptado por todos los jueces, supondría reducir la subjetividad, sin duda uno de los principales factores que minan la uniformidad de los enjuiciamientos. Se trata de seis voces diferentes, que tienen incidencias diferentes. - Conformación del diseño: a la que se le atribuye máximo 4 puntos porque es la única de las seis voces en la que no es posible alcanzar la perfección. De hecho, no nos encontraremos nunca ante un Canario que tenga un diseño simétrico, completo y de dimensiones que respeten en su totalidad lo exigido por el estándar. En todas las demás voces, sin embargo, sí es factible conseguir la máxima expresión. - Expresión de las melaninas sobre rémiges y timoneras: 5 puntos. - Tonalidad eumelánica del diseño: 5 puntos. - Grado de oxidación, de dilución o de reducción de las melaninas de la librea: 5 puntos. - Grado de oxidación o de dilución de pico, patas y uñas: 5 puntos. - Tonalidad del ojo: 5 puntos. La excelencia del tipo se premia únicamente con 29 puntos.
No es posible optar por otra puntuación, mientras que para el bueno (27-28), el suficiente (2426) y el insuficiente (18-23) es posible asignar puntuaciones con intervalos cada vez más amplios.


Texto: Diego Crovace Fotos: Javier Mas Fotos microscopio: Giuseppe Andriano