
Explicaremos en este artículo los conceptos genéticos de la cabecera y su estrecha relación con los fenotipos observables en los canarios ya que, a veces, no son suficientemente entendidos y valorados con la profundidad deseada por los criadores de las diferentes razas y gamas de canarios de color. El término homocigosis proviene de homo = igual y cigosis = unión de gametos, pues en este caso, los alelos (genes responsables de un mismo carácter) son idénticos; es decir, un mismo gen aparece en doble dosis, o sea, se encuentran dos copias idénticas de un determinado gen en un individuo diploide (2n). Ejemplo: AA, aa, etc. Por el contrario, en el caso de los individuos heterocigóticos (hetero = distinto), los alelos son diferentes. Ejemplo: Aa. Como, vemos, los términos anteriores se oponen. Recordemos que los seres diploides como el canario, presentan los cromosomas dispuestos por parejas de cromosomas homólogos, tanto los autosomas como los cromosomas sexuales y que el canario presenta cuarenta pares (39 de autosomas y uno de cromosomas sexuales).
Por otra parte, los individuos homocigotos o puros, al igual que los heterocigotos (o impropiamente llamados híbridos), pueden serlo para uno, dos o más caracteres; así, tenemos individuos monohomocigóticos u homocigóticos monogénicos, diheterocigóticos y polihomocigóticos u homocigotos poligénicos. La endogamia o consanguinidad incrementa el porcentaje de genotipos homocigotos y con ello la posibilidad de que genes letales o perjudiciales para el individuo se expresen y muera o sufra una enfermedad genética. Por el contrario, los cruces exogámicos, con “sangre nueva”, permiten aumentar el grado de heterocigosis en detrimento de la homocigosis, siendo su máxima expresión en el hibridismo, o sea, en el cruce de diferentes especies de aves, e incluso pertenecientes a géneros diferentes. Este último caso es la máxima expresión de hibridismo, siendo estos híbridos los que ofrecen mayor dificultad su consecución. En los híbridos tiene lugar la llamada heterosis o vigor híbrido, así como una disminución de la fertilidad e incluso esterilidad en muchos casos.
En las aves, los genes responsables de genotipos homocigóticos se pueden localizar en autosomas o bien en el segmento homólogo de los cromosomas sexuales Z o W, pues en el segmento diferencial de dichos cromosomas, sólo existe un alelo, bien en el cromosoma Z o en el W, y hablamos, en este caso, de hemicigosis, en lugar de homocigosis o heterocigosis.
Relaciones entre alelos
Los individuos homocigotos pueden ser dominantes (AA) o bien recesivos (aa), según que dicho gen duplicado sea de carácter dominante (aquel cuyo efecto fenotípico prevalece sobre el producido por el gen recesivo) o no. Ejemplo, el gen para el carácter no opal es dominante con respecto al gen opal, de carácter recesivo, que queda enmascarado ante la presencia del gen dominante. La expresión del genotipo, influida por el medioambiente, da lugar al fenotipo (la forma que se muestra, los caracteres observables y medibles). Es decir, un mismo genotipo puede originar fenotipos diferentes según las características del medioambiente.
Las relaciones entre los alelos dominantes y recesivos, presentes en los genotipos heterocigóticos, aparte de la codominancia -expresión del fenotipo de ambos genes- y herencia intermedia -se produce un fenotipo entremezclado al de ambos caracteres-, no siempre son de dominancia completa o total, sino que en muchas ocasiones existen diferencias fenotípicas observables entre dichos genotipos, aunque en muchos casos y con la finalidad de abreviar, a efectos prácticos, los consideramos simplemente como dominantes en lugar de dominantes incompletos. Ejemplo: oxidación/dilución, donde un ejemplar negro portador de dilución puede presentar uñas blancas o signos de dilución en el plumaje, a diferencia del negro homocigótico. Cuando los caracteres son determinados no por una pareja de genes sino por varias, como ocurre en la herencia poligénica o multifactorial, los fenotipos siguen una variación continua, en función del número de parejas de genes en situación de homocigosis, pues existen pequeñas variaciones en la graduación de un determinado carácter.
Por ejemplo en la talla, concentración de lipocromo, factor de refracción, etc., en función del número de parejas que presentan los genes responsables de estos caracteres con efectos acumulativos o sumatorios.
Utilidad de los portadores
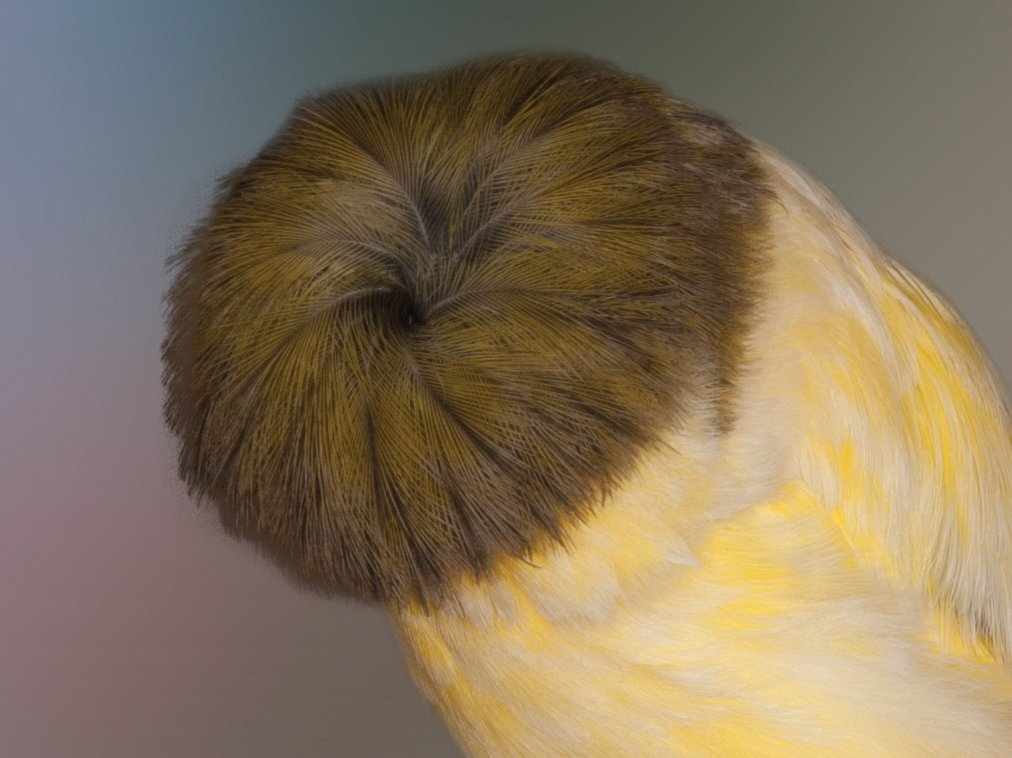
Los ejemplares homocigotos facilitan mucho la fijación y extensión a otras gamas de nuevas mutaciones, especialmente si son debidos a genes dominantes. Es el caso del canario jaspe doble dilución (DD) que cruzado con otro melánico clásico, origina en primera generación todos los descendientes jaspe simple dilución (SD), al presentar dominancia incompleta con respecto al gen para el carácter no jaspe. A nivel práctico y a falta de ejemplares homocigotos, se pueden utilizar los individuos portadores para fijar mutaciones de carácter recesivo mediante consanguinidad. La dominancia de un alelo con respecto a otro también tiene sus ventajas, pues impide que genes letales, subletales o genes recesivos responsables de alguna enfermedad genética se expresen. Los genotipos homocigotos para genes letales y subletales son eliminados mediante selección natural, en diferentes proporciones, por lo que la frecuencia génica correspondiente se ve disminuida. Así, el gen blanco dominante en homocigosis es letal, el gen intenso y el gen para el carácter moña son subletales y en homocigosis muchos genotipos son eliminados.
Los genotipos heterocigóticos, comúnmente son conocidos también como “portadores” del gen recesivo correspondiente -portadores (/) de eumo, de opal, topacio, etc.- Suponen, en algunos casos, un mejoramiento del fenotipo con respecto al homocigoto de melanina normal, como ocurre con los machos ágata portadores de pastel que suelen presentar menos feomelanina y un lipocromo más luminoso que los homocigóticos. En otros casos, ocurre al contrario, como los ejemplares ágata portadores de opal, bruno portador de phaeo o de dilución, negro portador de dilución, correspondiendo a un fenotipo negro (o bruno) impuro pero con ciertos defectos o rasgos de impureza. Estos canarios portadores se utilizan como ejemplares de trabajo para mejorar determinados fenotipos, ya que no son ejemplares de concurso debido a su impureza fenotípica. Se utilizan para cruzarlos con los individuos puros u homocigóticos, dando estos cruces, en numerosas ocasiones, mejores resultados que puro X puro.
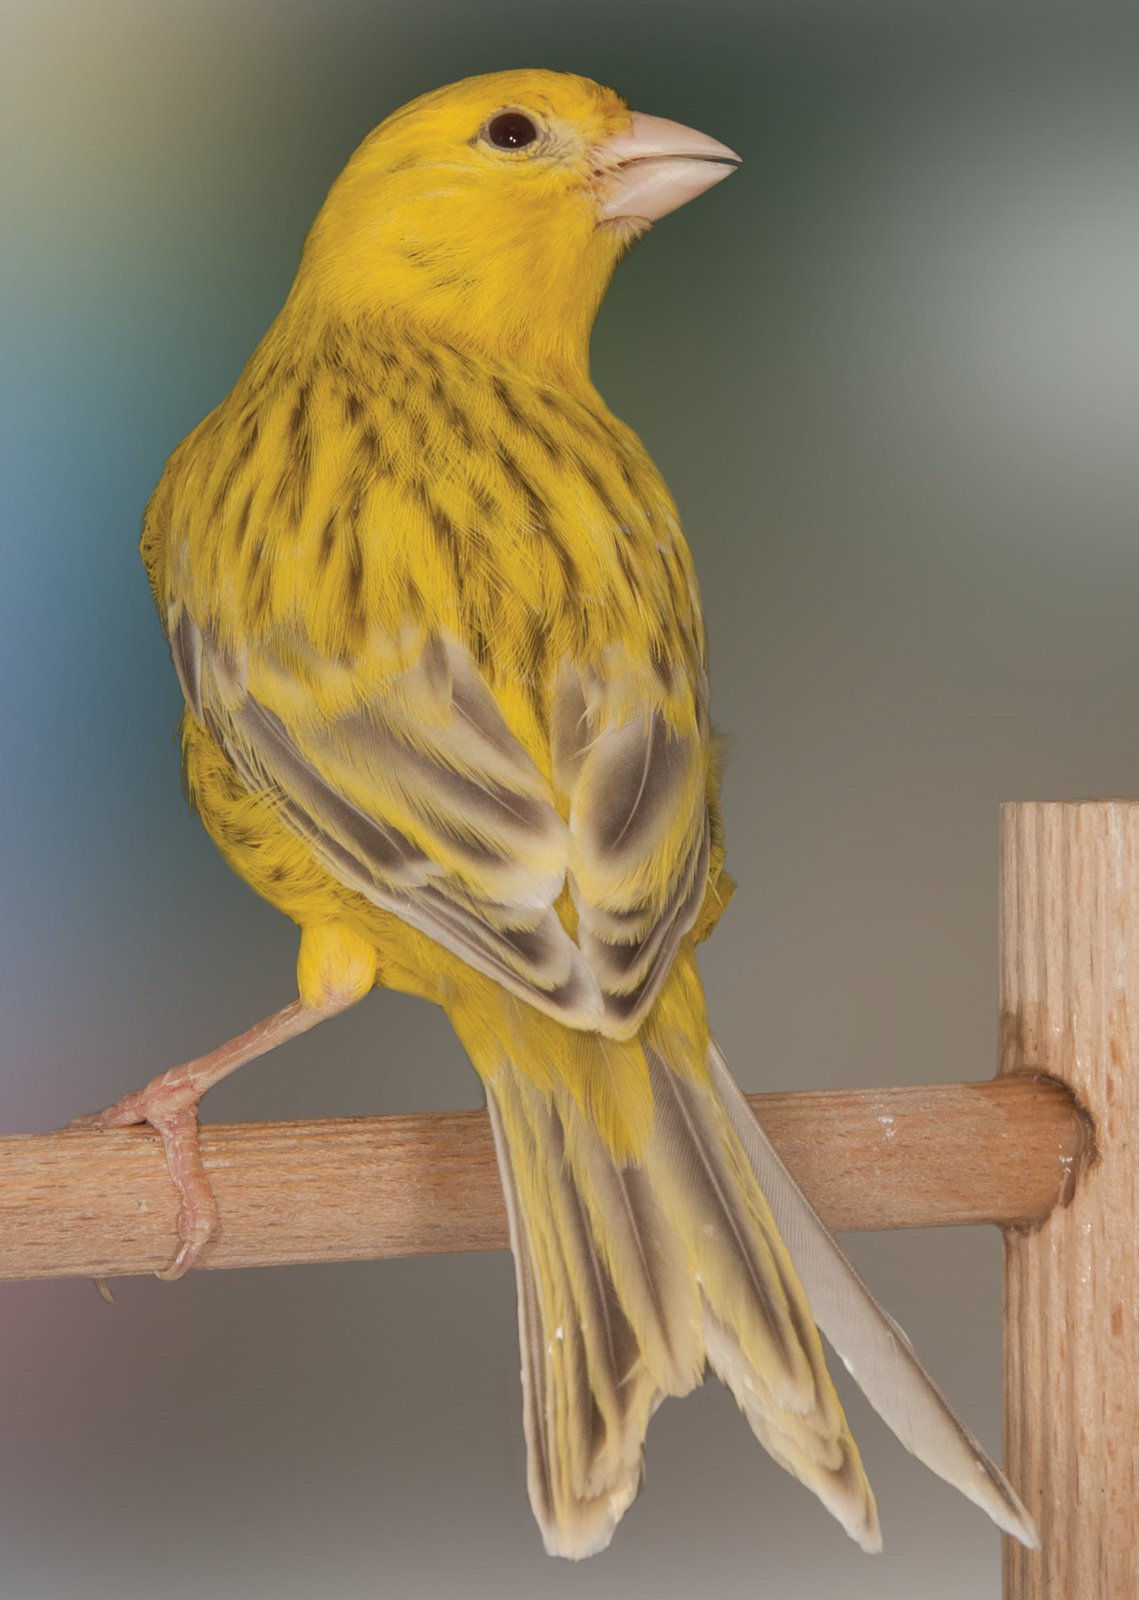
Un caso especial de individuos heterocigóticos son los machos llamados passe-partout (sirve para todo en español) que mediante crossing-over, son capaces de generar buen número de gamas diferentes de canarios de color (véase artículo de O.P. nº 66, Negro amarillo (o rojo) intenso: “super passepartout”) Existen portadores con un fenotipo prácticamente indistinguible de los ejemplares puros u homocigotos, como por ejemplo, ágata/isabela y sólo mediante un cruce prueba podremos identificarles. Estos ejemplares son también aptos para concurso y en algunas ocasiones resultan muy competitivos. Finalmente, existen portadores como los ejemplares ágata/satiné, con un fenotipo muy similar a otras mutaciones, pastel en este caso, y pueden ser confundidos. Los intensos portadores de mosaicos presentan fenotipo de semiintensos e incluso de nevados, especialmente las hembras. La hemicigosis, concepto citado anteriormente, posibilita que los genes recesivos, por ejemplo letales y subletales, se expresen en simple dosis, al no ser enmascarado su efecto por un gen dominante, como ocurre en el caso de la heterocigosis.
Los genotipos hemicigóticos sólo se producen en las hembras de las aves -en los mamíferos en los machos-, al corresponder al sexo heterogamético (fabrica dos tipos de gametos en relación a los cromosomas sexuales). Son ejemplos de genotipos hemicigóticos los correspondientes a las hembras pastel, satiné y marfil, o sea, se trata de caracteres ligados al sexo, que en el caso del canario, todos los que conocemos son de carácter recesivo y holándricos, pues el locus (sitio que ocupa un gen en el cromosoma) del gen responsable, se sitúa sobre el segmento homólogo -fragmento común presente en los cromosomas sexuales- del cromosoma sexual Z.
Ejemplos de genotipos: AA = genotipo homocigótico dominante. Aa = genotipo heterocigótico. aa = genotipo homocigótico recesivo. Zp W = genotipo hemicigótico recesivo. Zl W = genotipo hemicigótico recesivo letal. No viable. LL = genotipo homocigótico dominante letal. No viable. Ll = genotipo heterocigótico. Portador de gen letal. Viable. ll = genotipo homocigótico recesivo letal. No viable. Aa Bb CC Dd ee = genotipo homocigótico para dos caracteres (uno homocigótico dominante y otro homocigótico recesivo) y heterocigótico para tres. a1 a1 a2 a2 a3 a3 a4 a4 a5 a5 = genotipo polihomocigótico en una herencia de tipo multifactorial o poligénica.
1. ¿Es lo mismo un ejemplar heterocigótico que un portador? ¿Cuál es su diferencia? Ya hemos dicho anteriormente que los individuos heterocigóticos también son conocidos como portadores. Sin embargo, existen ejemplares heterocigóticos como los canarios jaspe SD, píos, amarillo-naranja, etc., que no presentan genes de transmisión recesiva, sino codominantes o equipotentes; o sea, con la misma fuerza genética o, al menos, sin que exista una clara relación de dominancia entre ambos genes y, por consiguiente, entre el fenotipo producido por uno y otro gen. En estos casos, no es correcto utilizar el término de portadores para referirnos a ellos. Explicado resumidamente: todos los portadores son heterocigóticos pero no todos los individuos heterocigóticos son portadores.
2. ¿Cómo diferenciar a un portador de un ejemplar puro? A. A nivel genético - Por el tipo de cruce podemos conocer si los descendientes son portadores o no. Por ejemplo, al cruzar un ágata eumo X ágata, todos los descendientes son portadores de eumo, necesariamente. - Cuando un ejemplar procede del cruce de dos portadores y fenotípicamente no son distinguibles los puros de los portadores, la única conclusión fiable acerca de la genética de dicho ejemplar es decir que tiene 2/3 (66,66%) de posibilidades de ser portador, como ocurre tras el cruce por ejemplo de dos portadores de pico rojo (urucum). - Mediante el llamado cruce prueba, el cual consiste en cruzar el ejemplar del que sospechamos pueda ser portador, con otro homocigoto (puro): si en la descendencia sale al menos un individuo homocigoto recesivo, significa que es portador. No obstante, también nos puede dar un falso negativo, debido a la mayor influencia del azar si la descendencia es escasa. Por ejemplo, cruzamos un posible portador de isabela con una hembra ágata y sólo obtenemos dos hembras ágata, pero el no obtener hembras isabela no significa necesariamente que el ejemplar no sea portador.
Es lo mismo que cuando tiramos una moneda dos veces al aire y en las dos ocasiones nos sale cara (o cruz) y no es porque la moneda tenga una sola cara (o cruz), sino debido al azar porque el número de tiradas eran reducido. A medida que aumentáramos el número de lanzamientos o de crías obtenidas, la frecuencia se acercaría más al 50% e intervendría menos el azar y los resultados serían mucho menos aleatorios. En los casos en que los fenotipos de los ejemplares homocigotos y heterocigóticos son idénticos y no muestran diferencias, el cruce prueba es el único método para identificar los portadores, aparte de pruebas de laboratorio de identificación génica que, claro está, quedan fuera de nuestro alcance. B. A nivel fenotípico Algunos ejemplares portadores son prácticamente idénticos a los ejemplares homocigóticos, como ocurre con un ágata/isabela, por ejemplo. Hay que tener “ojo de experto” para diferenciar los portadores cuando las diferencias son insignificantes y no siempre es posible su diferenciación fenotípica.
En otras ocasiones sí es posible diferenciarlos; por ejemplo en el caso de los intensos homocigóticos, que presentan una mayor carga lipocrómica relacionada con el tipo de pluma más estrecha y corta, incluso con ausencia de plumas en algunas zonas como las cejas muslos.
3. ¿Qué tipos de apareamientos son desaconsejables en los ejemplares portadores? - En el caso de genes letales, subletales o subvitales como intenso, blanco dominante, moña, piel negra, etc. no es aconsejable cruzarlos entre sí por el riesgo de que una parte de la descendencia sufra muerte embrionaria o en los primeros días o taras genéticas. - El cruce de dos portadores nos impide diferenciar en la descendencia los individuos homocigóticos de los portadores, al tratarse de un gen recesivo. Salvo determinados signos fenotípicos presentes en algunos casos, como por ejemplo en los canarios ágata portadores de opal que suelen presentar mayor cantidad de feomelanina. O sea, debemos cruzar los ejemplares a ser posible de forma que conozcamos siempre el genotipo de la descendencia. Por ejemplo, si cruzamos homocigótico dominante X homocigótico recesivo, todos los descendientes serán portadores. Así topacio X no topacio, produce 100% de portadores de topacio.
4. ¿Qué tipos de apareamientos son aconsejables en los ejemplares portadores? En la mayoría de las mutaciones recesivas es preferible el cruce puro X portador, al menos cada dos o tres temporadas, para evitar exceso de dilución, disminución de la concentración de lipocromo en el caso de marfiles, o bien mejorar determinados caracteres como el diseño o la oxidación melánica, como en el caso de los brunos portadores de phaeo X phaeo. Recordamos por otro lado, que el exceso de homocigosis puede dar lugar a la llamada depresión consanguínea, con todos los problemas que conlleva.
5. Adquisición de ejemplares
En el momento de adquirir ejemplares es muy importante que el criador se asegure, en lo posible, del genotipo de los mismos para evitar que sean portadores de determinadas mutaciones recesivas que no le interesen en su criadero, pues en la mayoría de las ocasiones no se puede diferenciar a los portadores con seguridad. Todo ello, para prevenir sorpresas en las próximas temporadas de cría, especialmente si se utiliza consanguinidad (endocría) con los ejemplares adquiridos, y llegar a descontrolarse en cuanto al genotipo de los descendientes, dando pasos atrás en la selección genética llevada a cabo durante muchos años. Y al contrario, si lo que se va buscando son ejemplares portadores, preguntar al criador de qué tipo de cruce proceden, pues si proceden del cruce de dos portadores, la probabilidad de ser portador no es el 100% sino del 66,6%.
Recordemos que en el caso de las mutaciones autosómicas recesivas, ambos sexos pueden ser portadores de las mismas y en aquellas recesivas que están ligadas al sexo (marfil, pastel, satiné y dilución), sólo los machos pueden ser portadores por lo que, en este último caso y para evitar arriesgarnos, será preferible adquirir hembras, ya que su fenotipo se corresponde con el genotipo que presentan. En otras ocasiones, puede ocurrir que los ejemplares adquiridos sean portadores al mismo tiempo de varias mutaciones y que se expresen solapadas en la descendencia (ejemplo opal y onix), originado un fenotipo intermedio, motivo de descalificación, o incluso que se llegue a pensar que se trata de una nueva mutación.
Bibliografía
Cuevas Martínez, Rafael. Genética y reproducción aplicadas a la ornitología deportiva. Croma press. S.A. 2012. Cuevas Martínez, Rafael. Los canarios lipocrómicos y melánicos. Editorial Hispano Europea S.A. 2010.
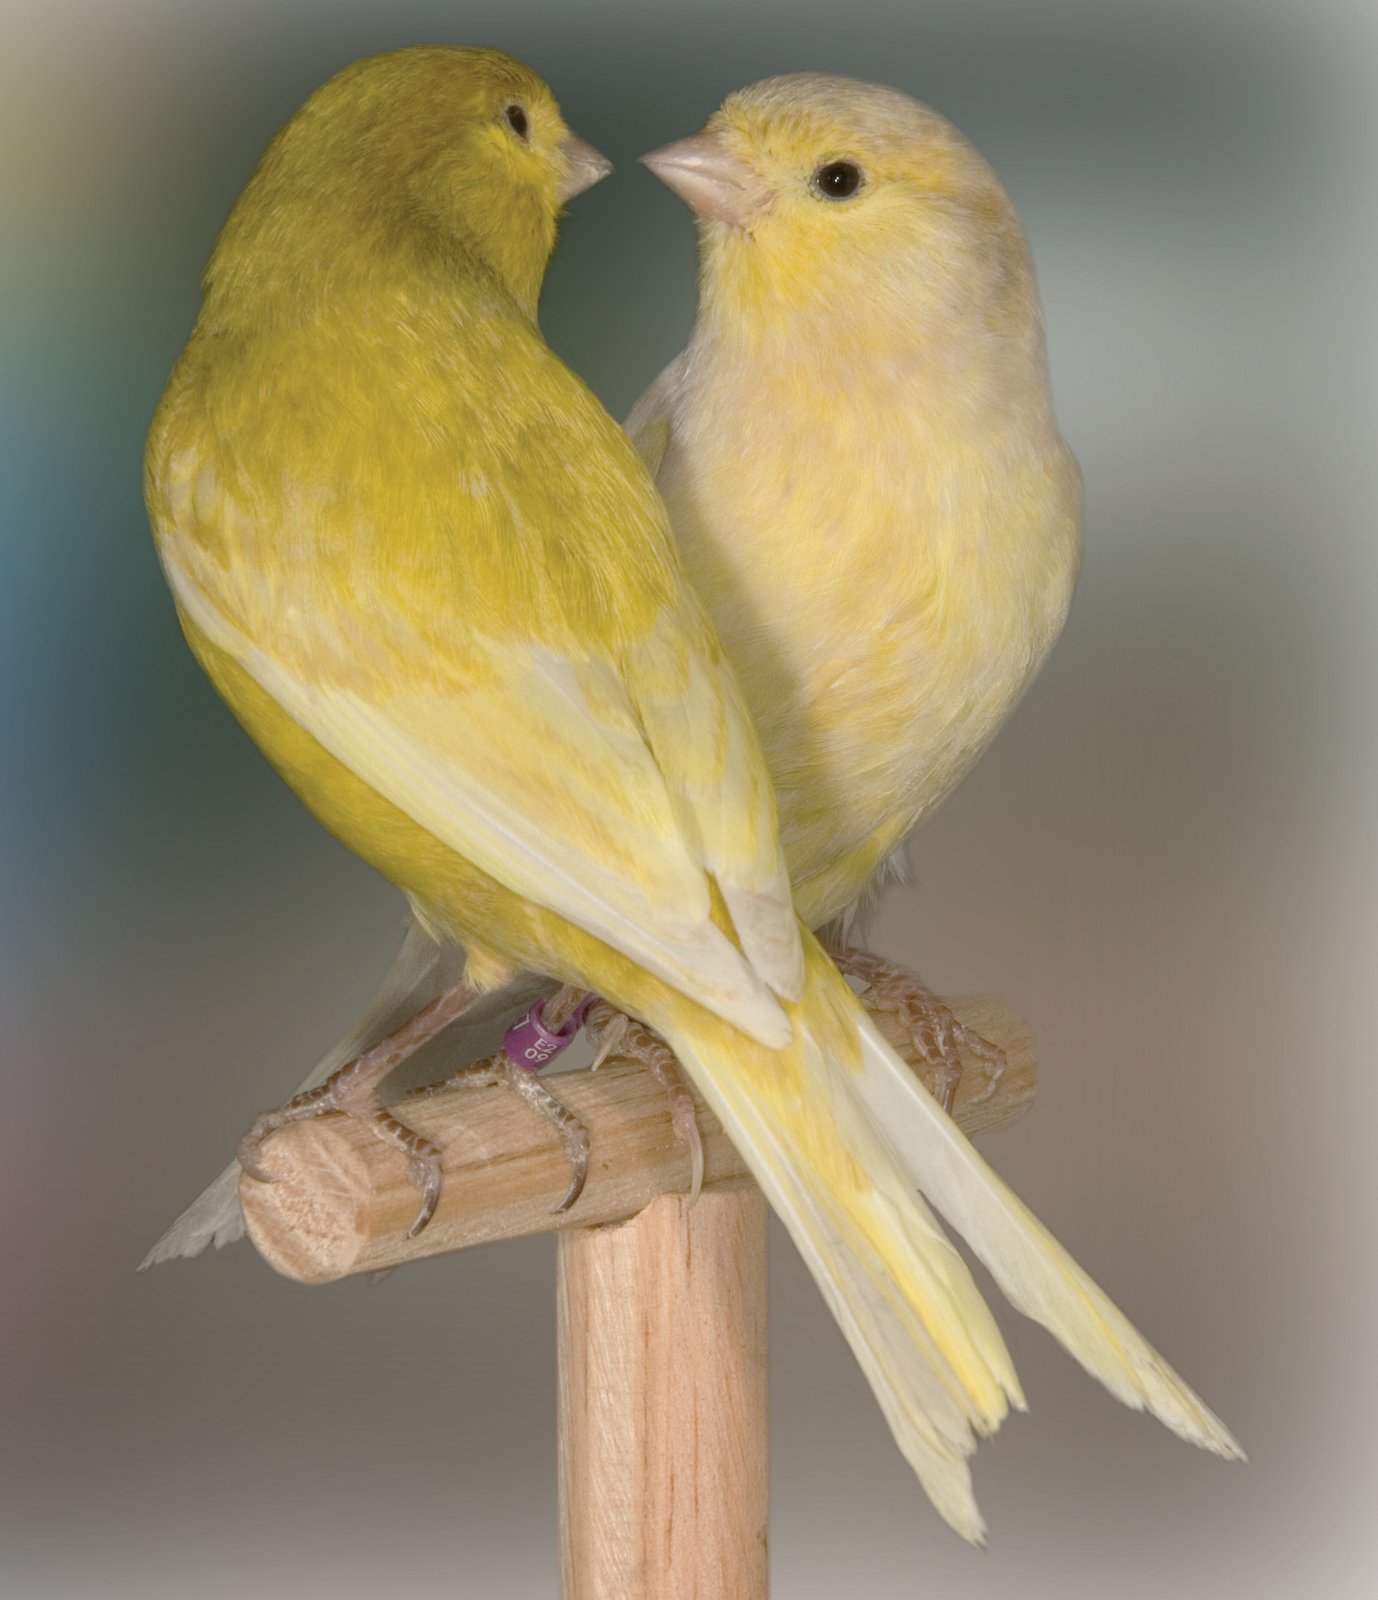
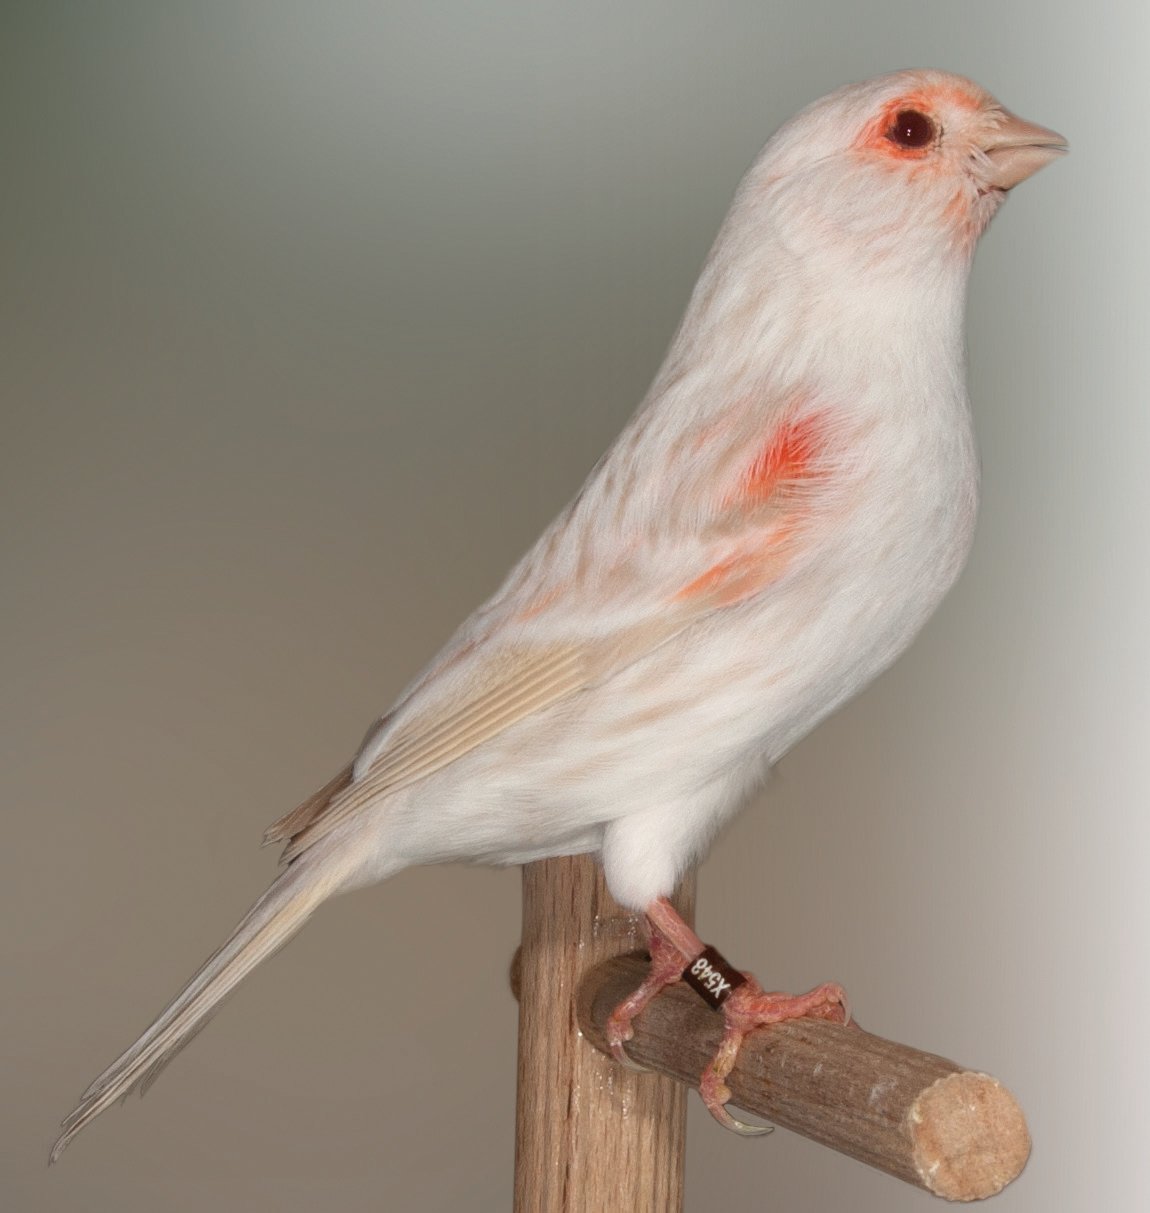
Texto: Rafael Cuevas Martínez, miembro CRO/COM. Fotos: Javier Mas. Esquema: © anigrafics.com.