...un “jizz” inconfundible
1ª Parte
- Mimmo.... mira aquel cernícalo en pleno vuelo. ¡Qué bonito es! Fabrizio, un veterinario apasionado de la ornitología, reclama mi atención mientras regresamos a casa después de un concurso. Miro por la ventanilla de la derecha, estamos en la autopista, y por el rabillo del ojo veo, sobre el campo, al lado de la carretera, un pájaro que, suspendido a media altura bate las alas continuamente con ritmo preciso y ordenado. Me recuerda la imagen de aquella paloma que se encuentra a menudo en los iconos religiosos. - Pero ¿cómo sabes que es un crenícalo? - pregunto. - Sólo un cernícalo sabe hacer tan bien ese tipo de vuelo- responde. Fabrizio, a pesar de estar a contraluz y sin apenas distinguir su color, ha reconocido a la rapaz sólo por su silueta. - Tiene un “jizz” inconfundible. El término “jizz” me deja un poco perplejo, porque en mis conocimientos va asociado con un significado muy alejado de la ornitología. Pero para no mostrar mi ignorancia, asiento con un simple gesto de la cabeza. Apenas llego a casa, busco en Google para aclarar mis dudas. El resumen del “Dictionary of Birds” dice sobre el término “jizz”: “combinación de caracteres no reconocibles individualmente, que identifica en el campo a una criatura viviente”. De hecho, el término “jizz” se usa frecuentemente por los aficionados al birdwatching y se refiere concretamente a aquella sensación general que transmite un pájaro y que nos permite enseguida adscribirlo a una especie en particular, aunque no se capten todos los detalles de su plumaje.
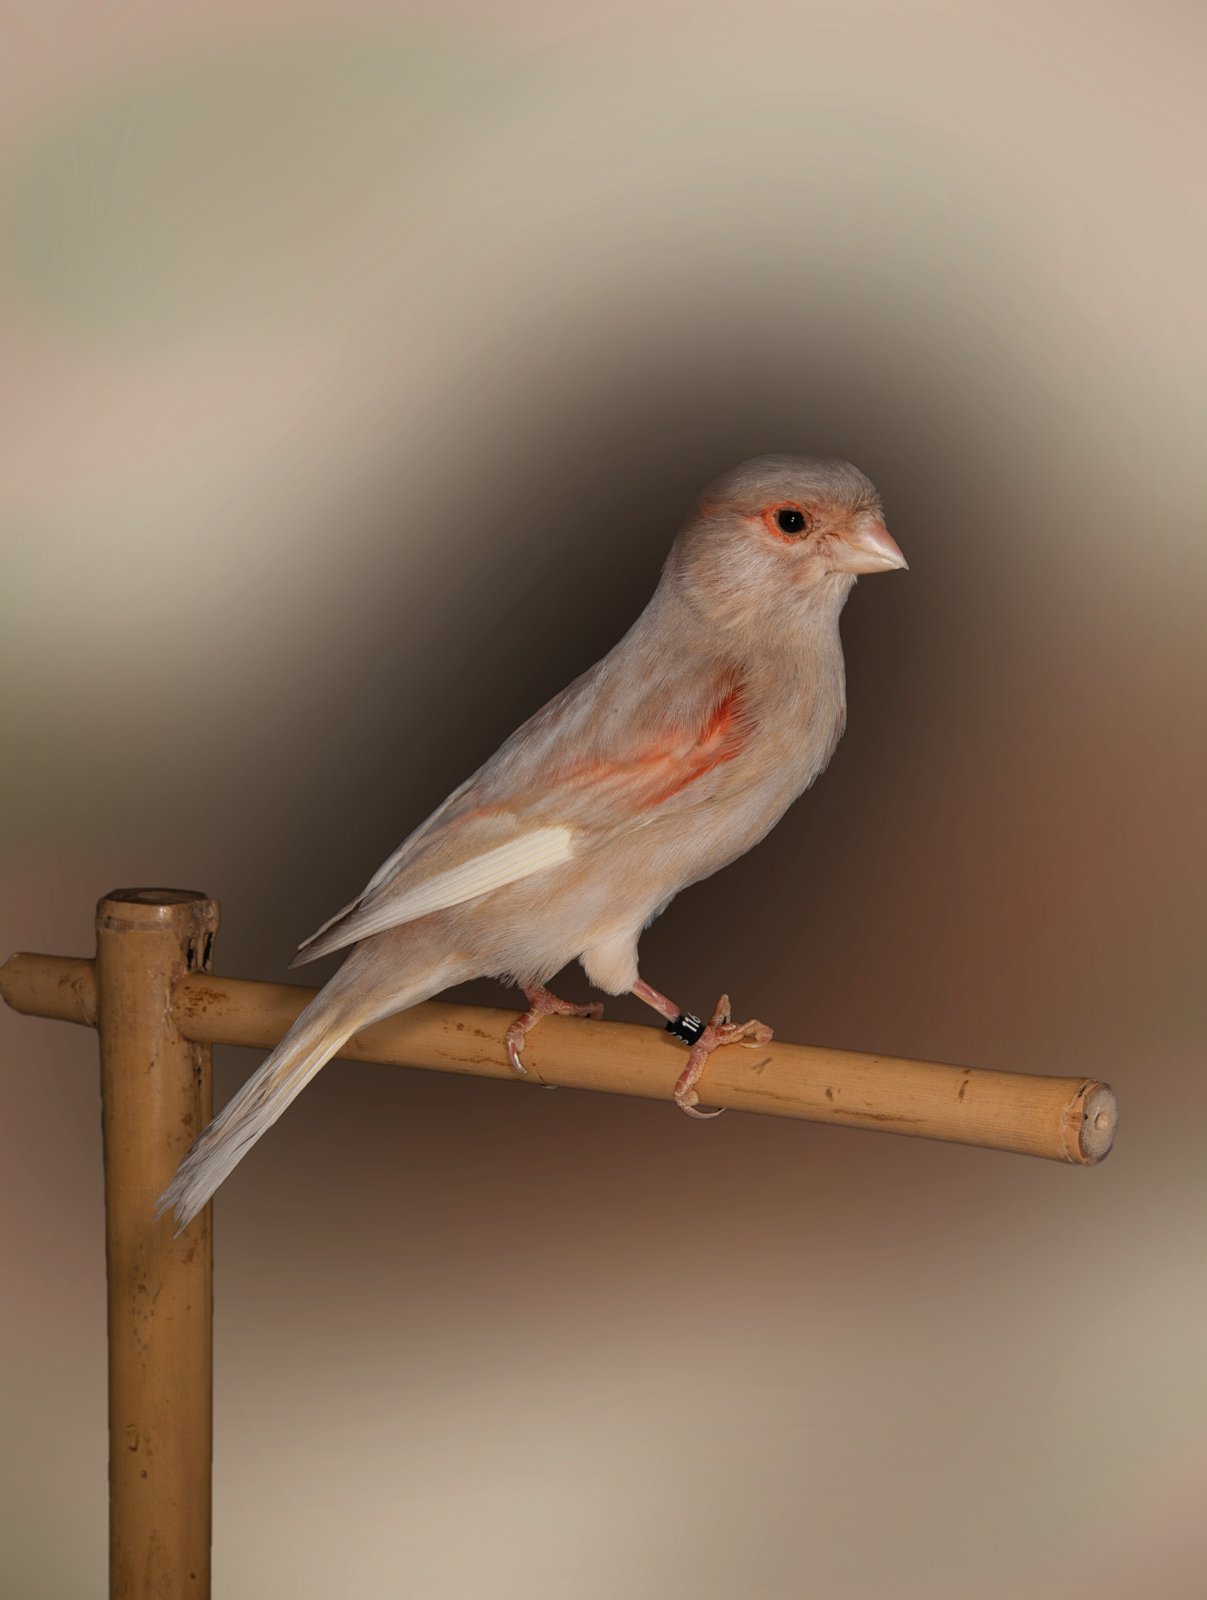
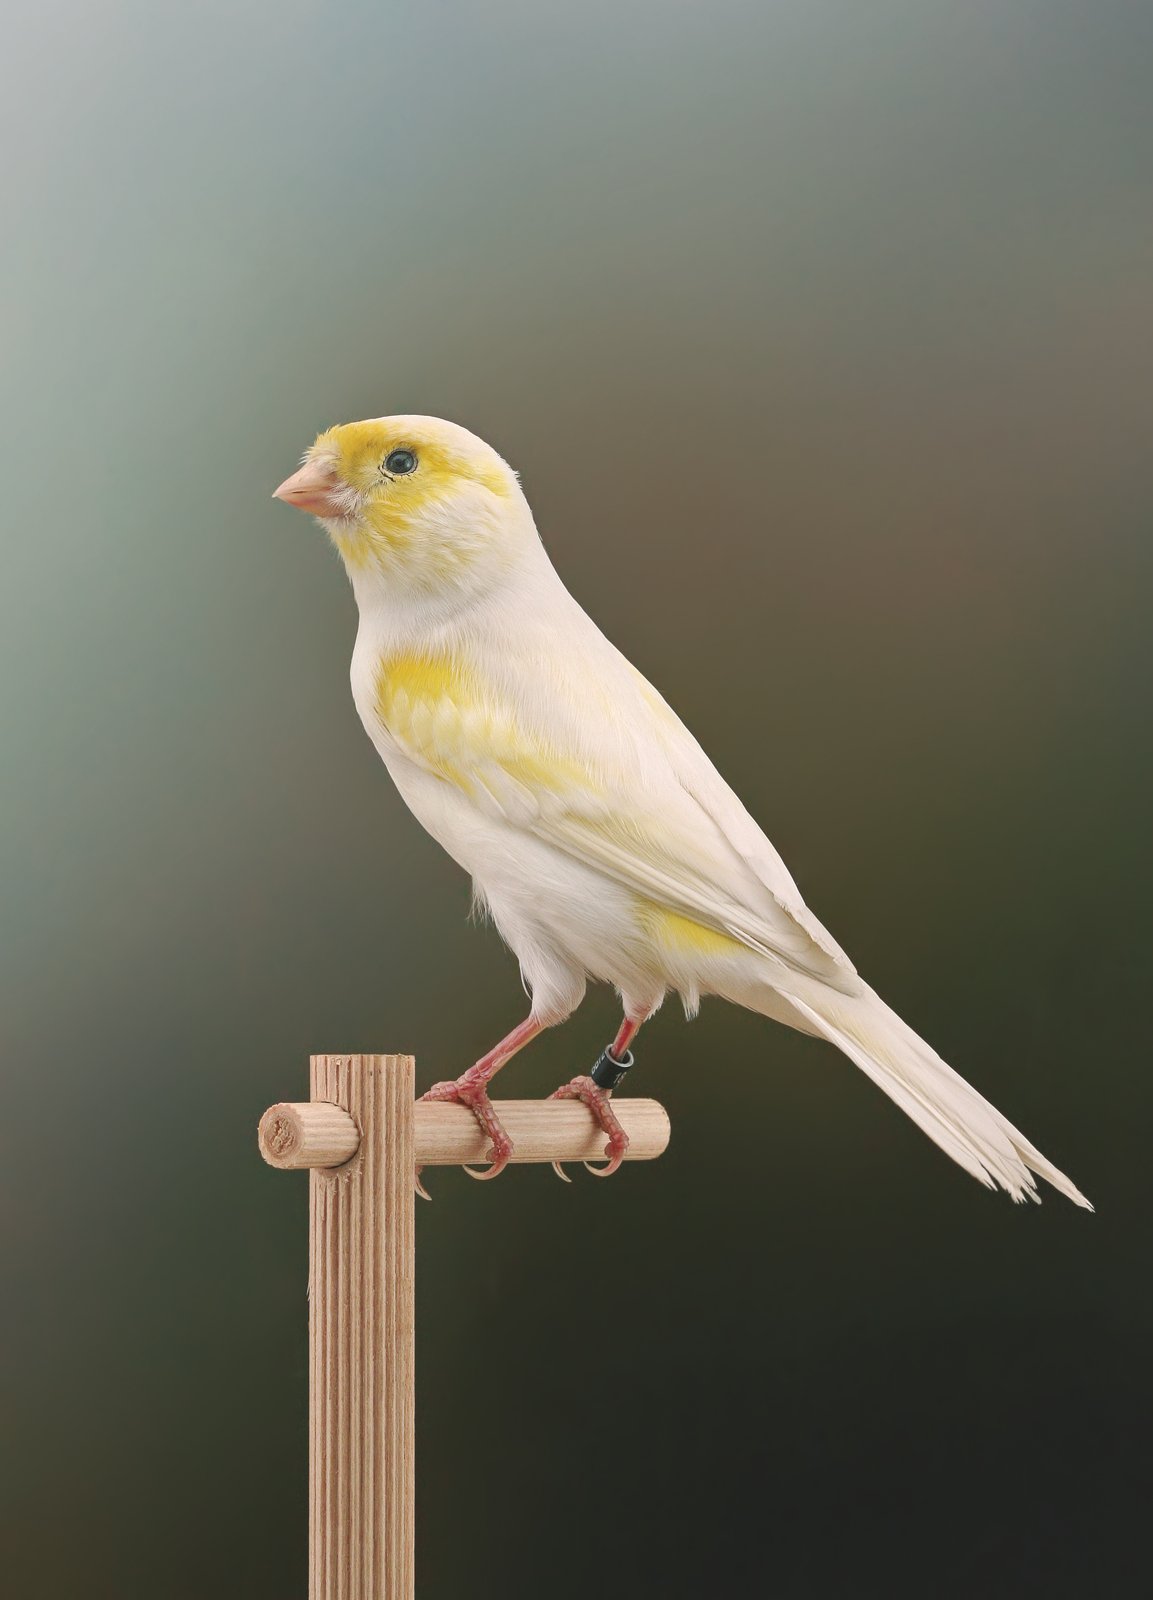
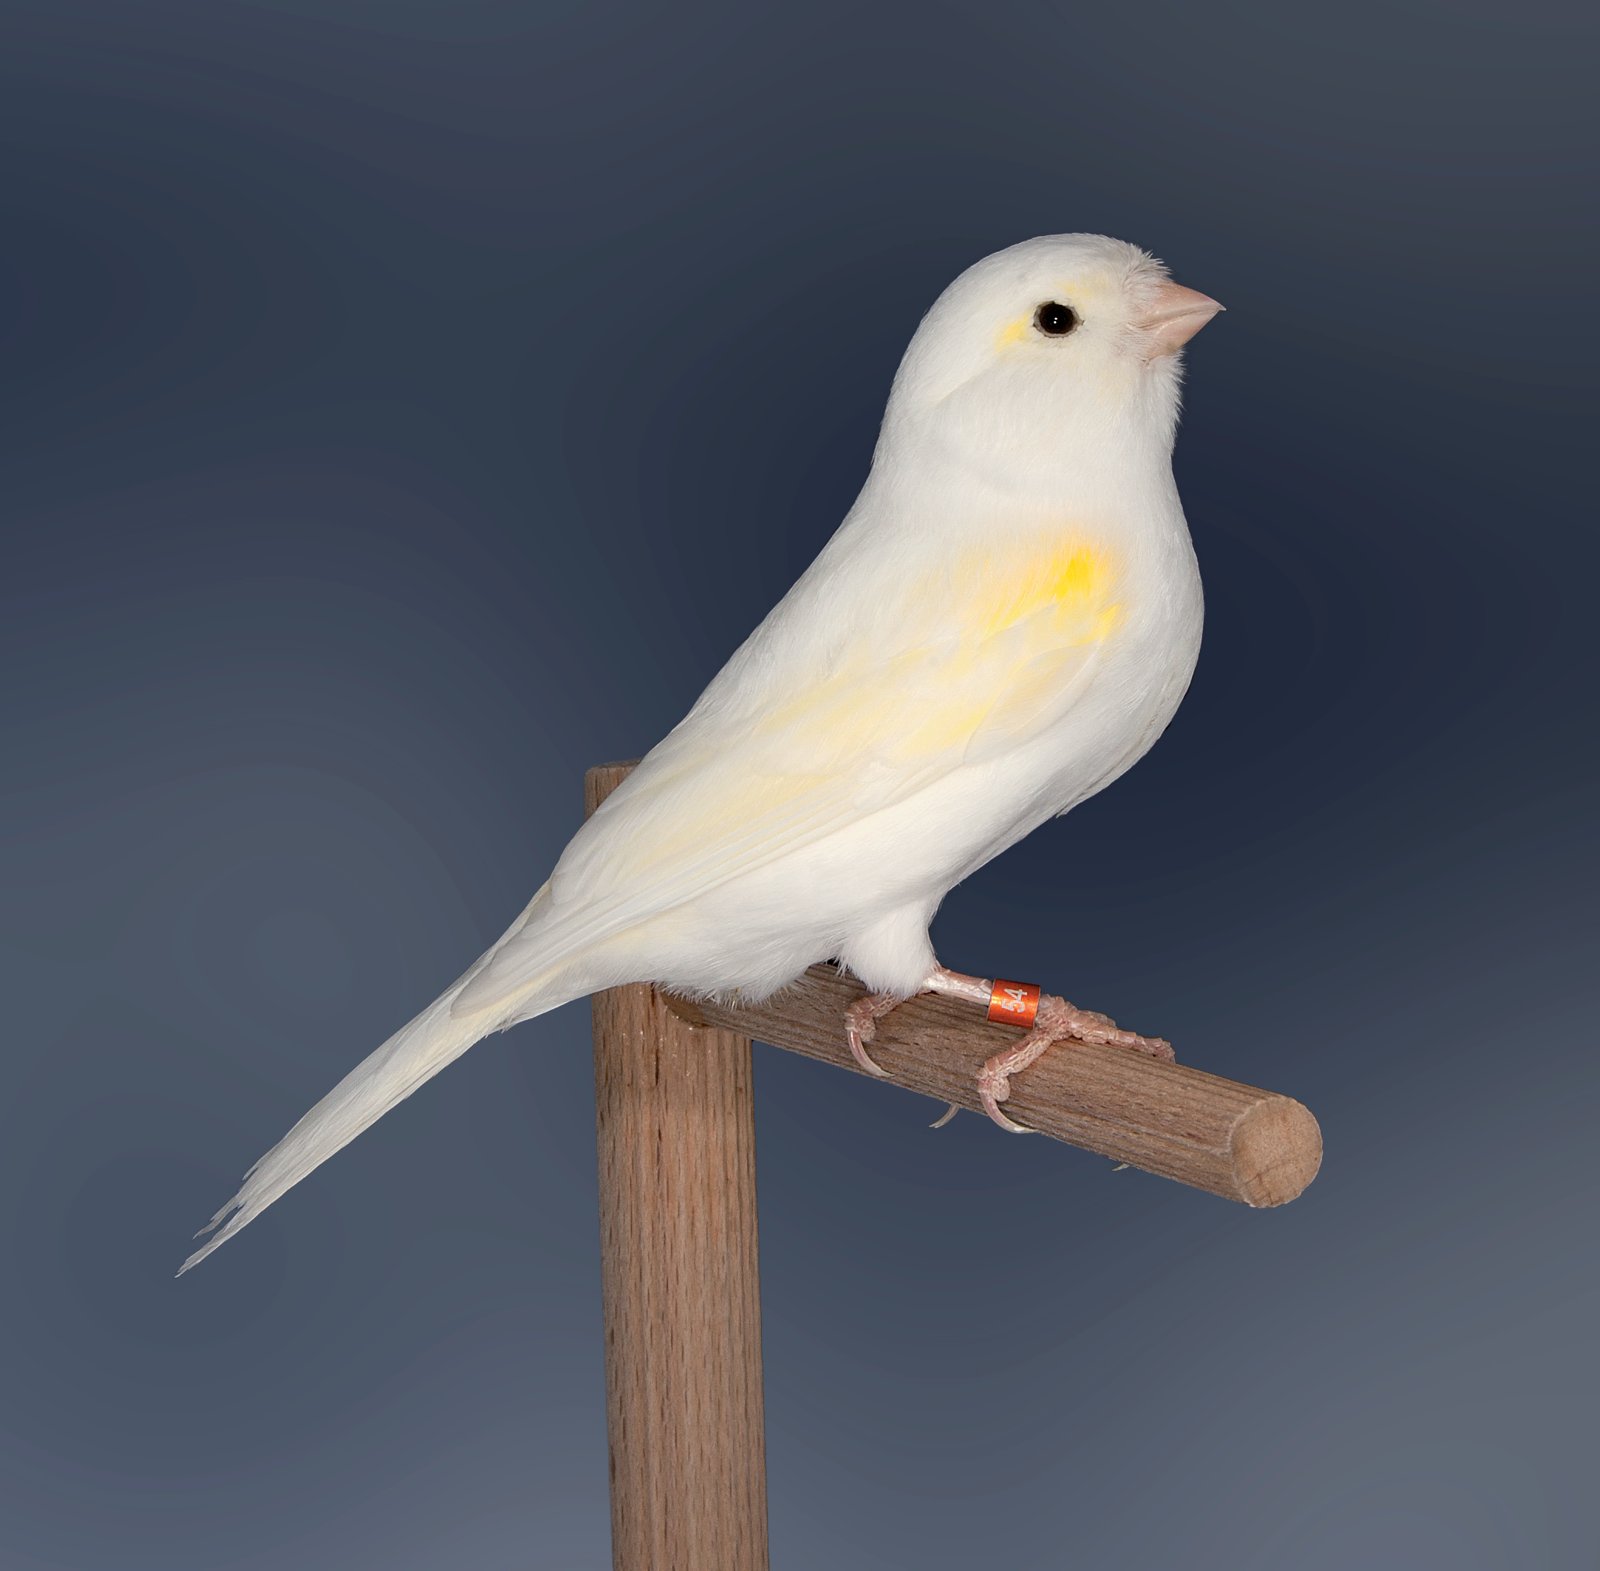
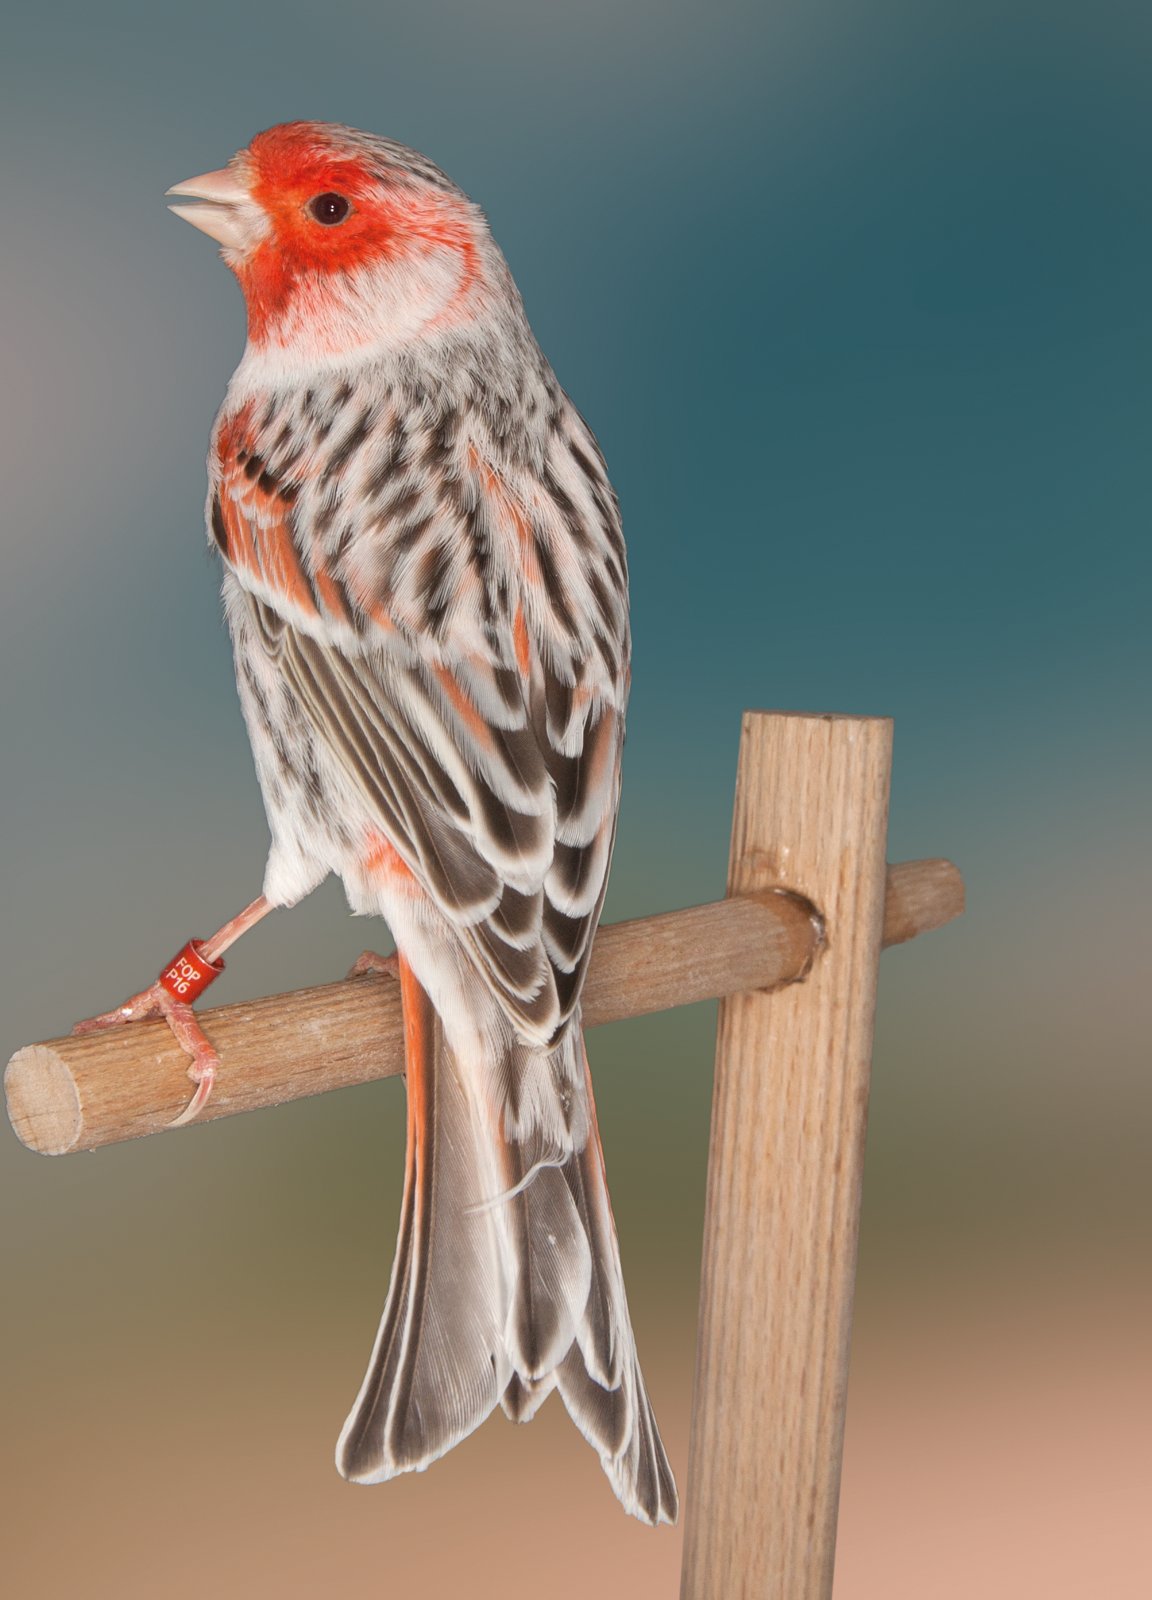
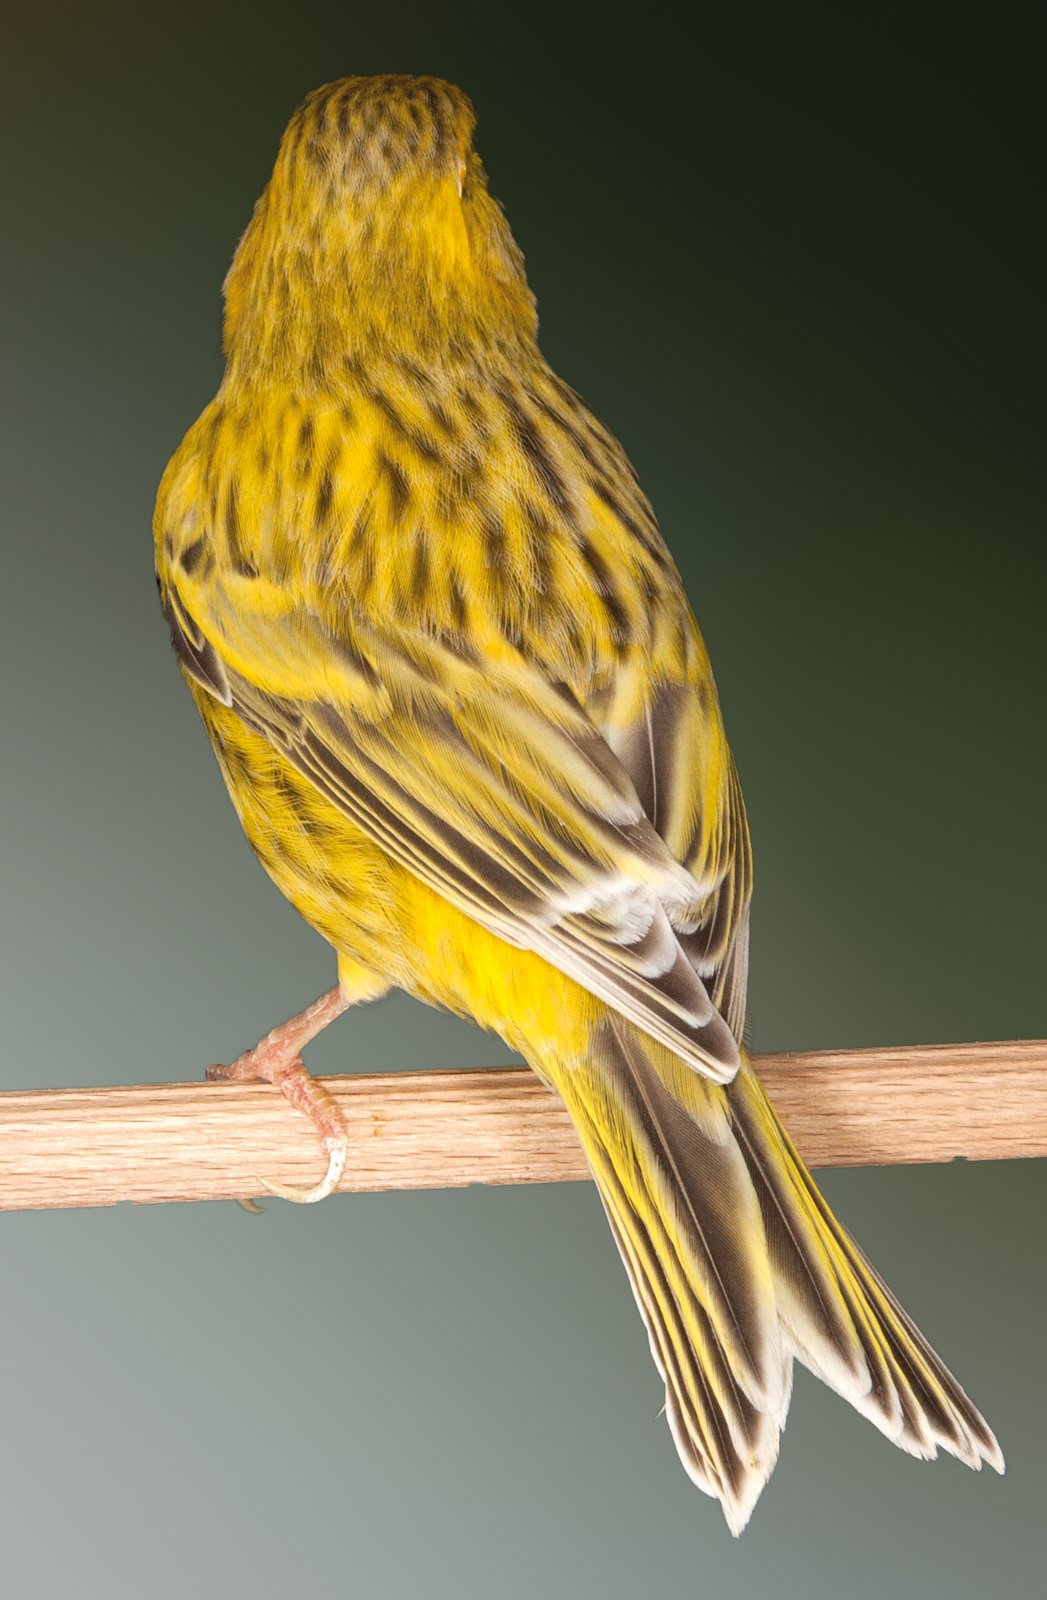
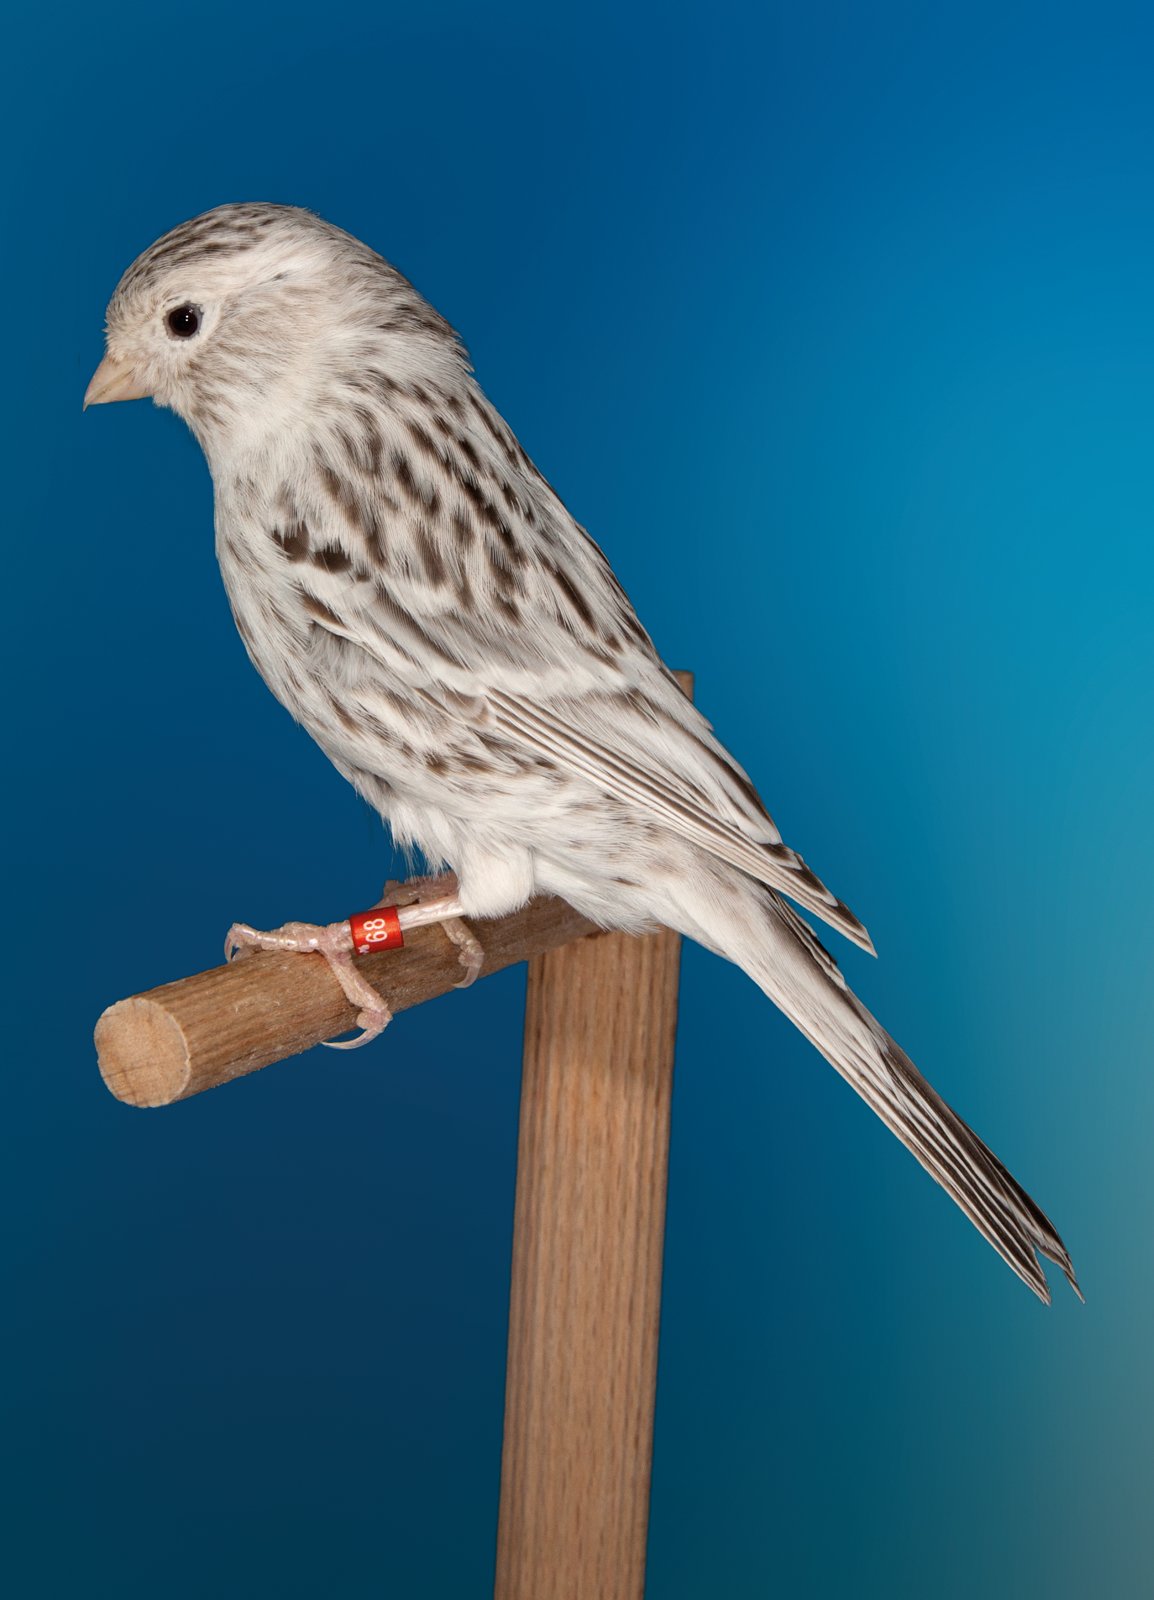
El jizz es un proceso cognitivo idéntico al que nos hace reconocer una cara conocida en medio de una multitud de extraños. Es el proceso que ayuda a los canaricultores mas avezados a reconocer y distinguir los diferentes tipos de canarios basándose sencillamente en su aspecto general, en la conformación de su silueta, en su modo de moverse, en su postura, o en todos estos elementos juntos, o en cualquier otro aspecto indefinible, pero no por ello menos real y perceptible. El “jizz” es exactamento todo esto. Un canario Negro, con pico y patas negruzcas, con estrías negras, tiene un jizz inconfundible, se le reconoce a dos metros de distancia, incluso en una voladera, mezclado con otros tipos. Lo mismo podríamos decir para un Pastel bruno, en el que su plumaje, de un marrón denso, lo hace inconfundible, para un Opal, en el que el azulado resulta un atributo discriminatorio, para un Ala Gris, en el que el evidente perlado le confiere una belleza única. Pero si la tipicidad de los ejemplares observados deja que desear, el jizz pierde consistencia y el reconocimiento puede hacerse complicado. De ahí la necesidad de enumerar las características de la especie, describir por consiguiente analíticamente el jizz, algo que los criterios de enjuiciamiento concretan de forma detallada en los diferentes considerandos. Pero no obstante esta descripción analítica, la identificación de algunos tipos no es nada fácil. Llamo la atención de los lectores sobre tres tipos en particular (pero hay otros): ágata topacio, ágata pastel y ágata eumo, que crean dudas incluso entre jueces de un cierto nivel. En este artículo me propongo exponer los elementos indispensables para reconocer un Ágata Topacio, es decir, su jizz.
El tipo Topacio
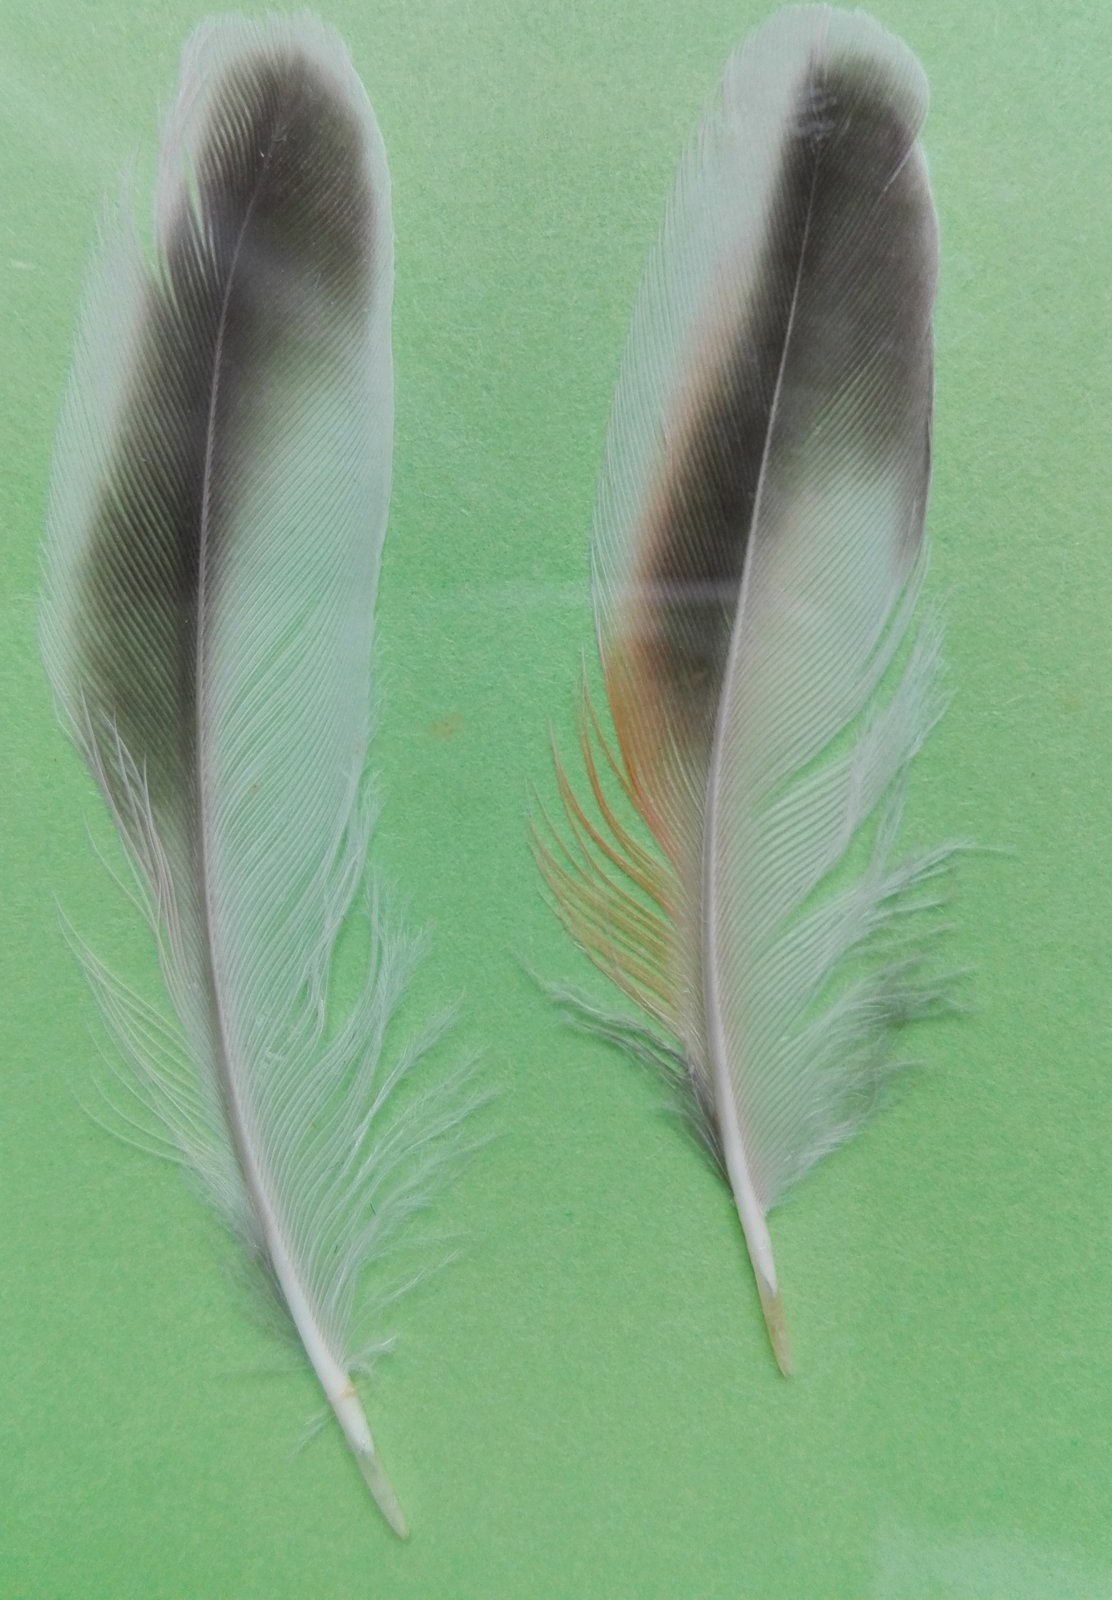
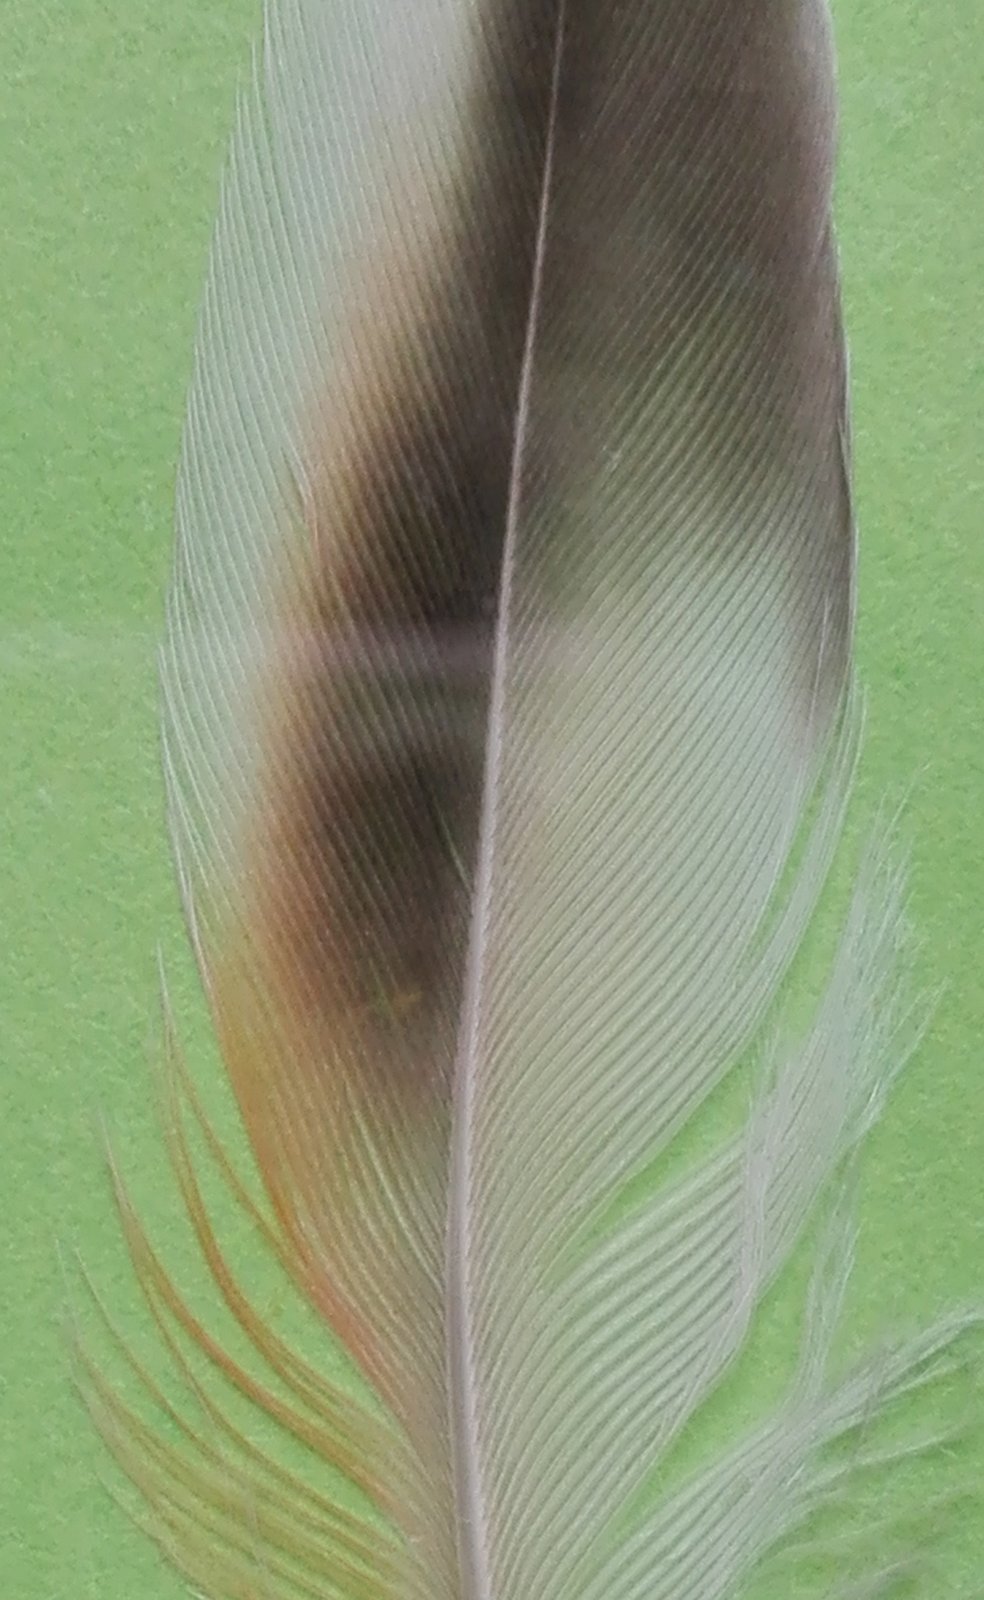
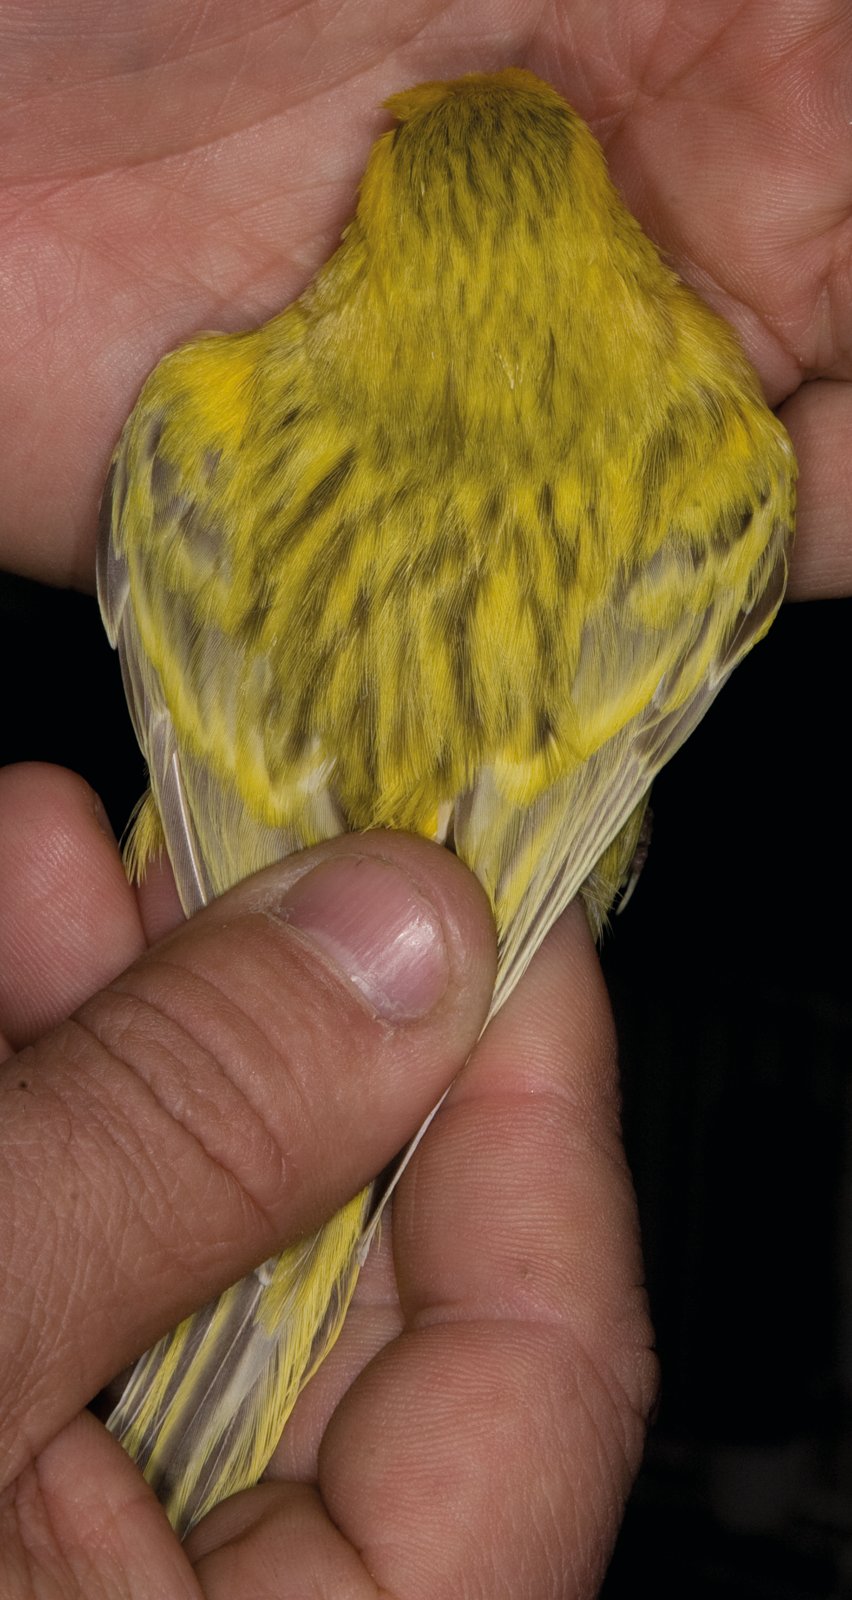
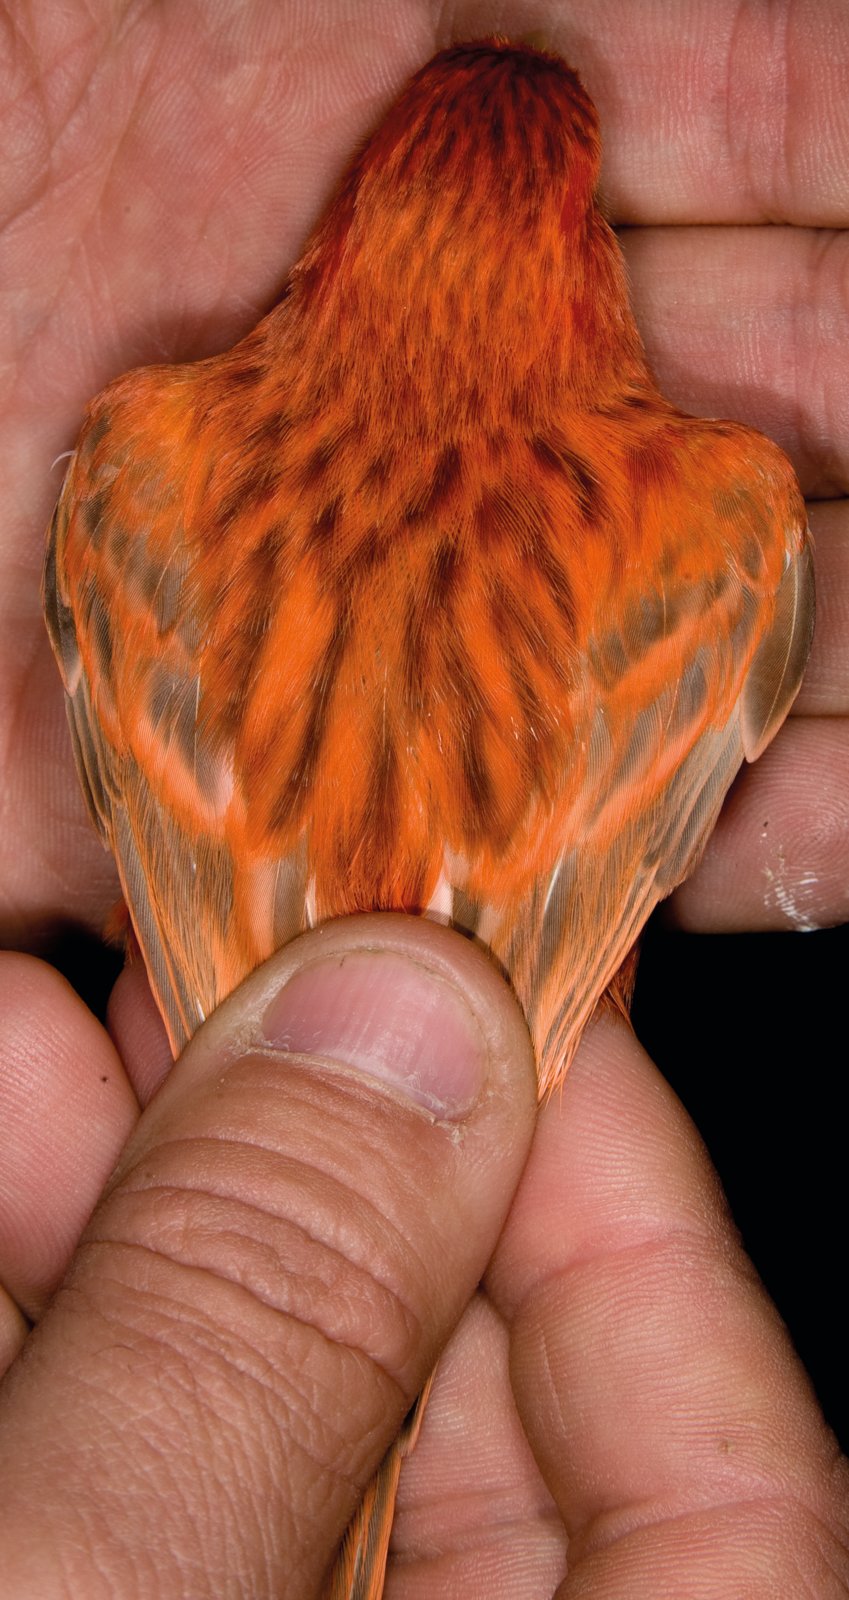
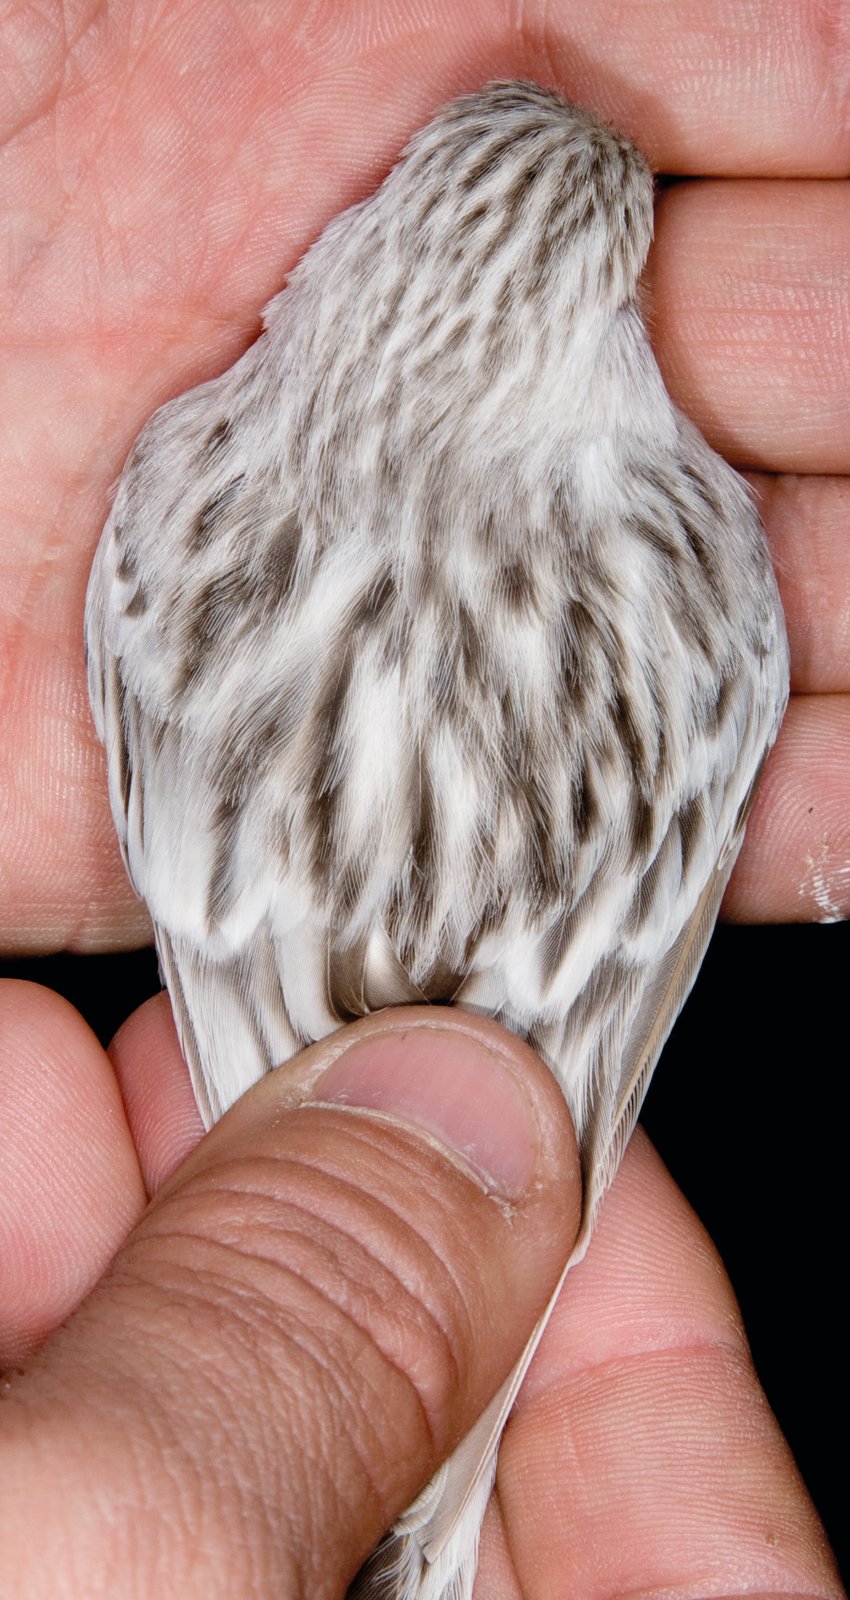
La mutación topacio se caracteriza por la producción de eumelanina, que se concentra alrededor del raquis más despigmentado de los tipos clásicos. En efecto, tal concentración de pigmentos en el centro de la pluma es una de las características de los canarios Topacio; no debe sorprendernos por ello que al principio se les llamase “rubino de melanina central”. Como consecuencia de esta concentración del diseño, la periferia de las plumas asume una coloración de una tonalidad muy clara, que en los ejemplares Ágata Topacio es casi blanca. Esta falta de melanina hace que el lipocromo sea muy luminoso, una característica nada despreciable de esta mutación, y la casi despigmentación de todas las estructuras córneas, pico, patas y uñas y, principalmente, raquis de las plumas. La despigmentación del raquis de las plumas constituye uno de los indicadores de reconocimiento de un canario Topacio, particularmente en el caso en que se planteen dudas y pueda existir confusión con otro tipos melánicos como Ágata Eumo o Ágata Pastel. Sin embargo, identificar a un canario como Topacio refiriéndose sólo a este indicador puede llevarnos a error, por lo que es necesario tomar en consideración otros factores. Uno de los factores que diferencia de manera concluyente a un Ágata Topacio de otros tipos es la reducción extrema de pigmentación que se observa en los bordes de las plumas, que aparecen de un color muy diluido, prácticamente blanco, y de forma irregular y poco simétrica. Conformación ésta que hace único el plumaje del topacio respecto a otras mutaciones del tipo Ágata.
La historia del Topacio
La mutación Topacio apareció a caballo entre los años 60 y los 70 del siglo pasado, al mismo tiempo que la mutación Phaeo, pero fue tratada con mucha suficiencia y considerada casi un desecho de criadero. Algunos criadores de Phaeo, al seleccionar el phaeo sobre base negrobruno, encontraron en el criadero ejemplares que mostraban aún una mínima cantidad de eumelanina gris-bruna en el centro de las plumas de alas y cola. Fueron llamados “rubinos de melanina central” (rubino era el término con el que en aquellos tiempos se calsificaba el actual Phaeo) y fueron objeto de penalización en los concursos. En Italia. se tuvo la idea de transferir esta particularidad a los Rubinos Ágata, tipo no reconocido ya. Esta combinación dejó entrever leves trazas de diseño sobre rémiges y timoneras, señal de que se estaba consolidando una latente nueva mutación. Un criador italiano, Nocetti, continuó seleccionándolos durante algunos años pero, como sin embargo ocurre a menudo, estos ejemplares no fueron tomados muy en consideración, hasta que decepcionado, se deshizo de todos sus ejemplares. Fue un criador francés, Mario Ascheri, quien captó los efectos fenotípicos de estos genes, quien se hizo con los ejemplares de Nocetti y se los llevó a Francia. Transfirió y perfeccionó la mutación en particular en ejemplares Ágata, una elección que no fue casual, sino meditada, porque la introducción de ágatas extremadamente típicos mejoró sensiblemente las características fenotípicas del futuro Ágata Topacio. El resto es ya historia por todos conocida. La mutación fue objeto de debates y discusiones e incluso había quien negaba la posibilidad de existencia de la misma. Por ese motivo quizás, la mutación Topacio ha sido la más seriamente estudiada, con un enfoque claramente científico, con confirmación en laboratorio. Es obligado recordar la importancia de los estudios de Jan Van Mol, Ingte Onsmann, Mauro Tolomelli, Marco Torno y Giovanni Canali.
El locus C y sus alelos
Locus C es el nombre científico del gen INO (autosómico recesivo), que contiene el código indispensable para la producción de tirosinasa, un enzima muy complejo y quizás el más importante en la producción de melaninas. Si por efecto de una mutación, los numerosos aminoácidos, 529 para ser exactos (Mochii M, Yamamoto H, Takeuchi T, Eguchi G-1992), que constituyen el enzima modifican su estructura, la tirosinasa sufre un proceso de degradación (se crea una isoencima), que limita la actividad en la producción de melanina de la enzima misma. La publicación científica de Jan Van Mol, en los años 80, liga la degradación de la tirosinasa con el nacimiento de la mutación topacio. Si la calidad de la tirosinasa queda tan degradada que no es capaz de producir una síntesis pigmentaria suficiente, dará origen al tipo Phaeo; por el contrario, si la degradación es mucho menor, dará origen al tipo Topacio. Es importante saber que la producción de eumelanina está muy influida por la tirosinasa, al contrario de la feomelanina, que es menos dependiente (Cleffman 1964); esta menor dependencia justifica, también en el caso de ausencia de tirosinasa, la presencia de feomelanina en el plumaje de los actuales Phaeo. Por lo tanto, el Topacio (InoT) y el Phaeo (InoPh) son formas mutadas del mismo gen ancestral Ino+ (alemorfismo múltiple). El gen InoT domina parcialmente a su alelo InoPh, pero ambos son dominados por el gen ancestral Ino+. De ello se deduce que de un acoplamiento entre InoT e InoPh se originará una prole intermedia, confirmando así la fallida regresión al tipo clásico (autocomplementación fallida) su naturaleza de alelos del mismo gen Ino. Por su parte, el comportamiento genético de la mutación topacio, en relación a las melaninas clásicas,es autosómica y recesiva por lo que el topacio necesita para su existencia de progenitores portadores de al menos un alelo del gen.
El topacio, una mutación albinoide
Para los canaricultores, un canario es albino, muy sencillamente, cuando tiene el plumaje blanco y los ojos rojos (albinismo total). Tras un atento examen de la literatura científica sobre este tema, esta simple constatación es más compleja de lo que se piensa; el albinismo conoce de muchos matices y tonalidad de color. En los años 50 del siglo pasado, el nacimiento de tres hijos “normales” de una pareja humana de albinos confirmados hizo comprender la existencia de diferentes formas de albinismo. La hipótesis de que el albinismo se debía a un sólo alelo recesivo quedó superada (P.D. Trevor-Roper, en 1952). La literatura científica actual divide al albinismo tanto al SL (ligado al sexo) como al NSL (no ligado al sexo) en dos grupos principales: tirosinasa positivo (Ty-pos) y tirosinasa negativo (Ty-neg) o más sencillamente T+ y T-. Como sabemos, las melaninas son producidas por células de la piel llamadas melanocitos, situadas en la dermis, en contacto con estrato germinativo epidérmico y en la papila de las plumas. De aquí entran en la epidermis o en las plumas en formación, coloreándolas de bruno o de negro. En los albinos T-, no se produce tirosinasa y no se genera ninguna molécula de eumelanina en los melanocitos. El resultado es un animal que no posee absolutamente ningún pigmento marrón, negro u oscuro. En la forma de albinismo T+, se produce tirosinasa, pero no tiene fácil acceso a los melanocitos. Sin embargo, en la mayor parte de los ejemplares hay una pequeña cantidad de melanina sintetizada en los melanocitos, debida esencialmete al transporte ósmico. Así queda claro que los albinos de tipo T+ son generalmente más oscuros que los albinos del tipo T-, que aparecen blancos, en la totalidad de los casos. La mutación Topacio (y su alelo Phaeo), se encuadra en avicultura científica como una mutación albinoide T- (tirosinasa negativa) NSL (no ligada al sexo).
Sobre la síntesis de las melaninas
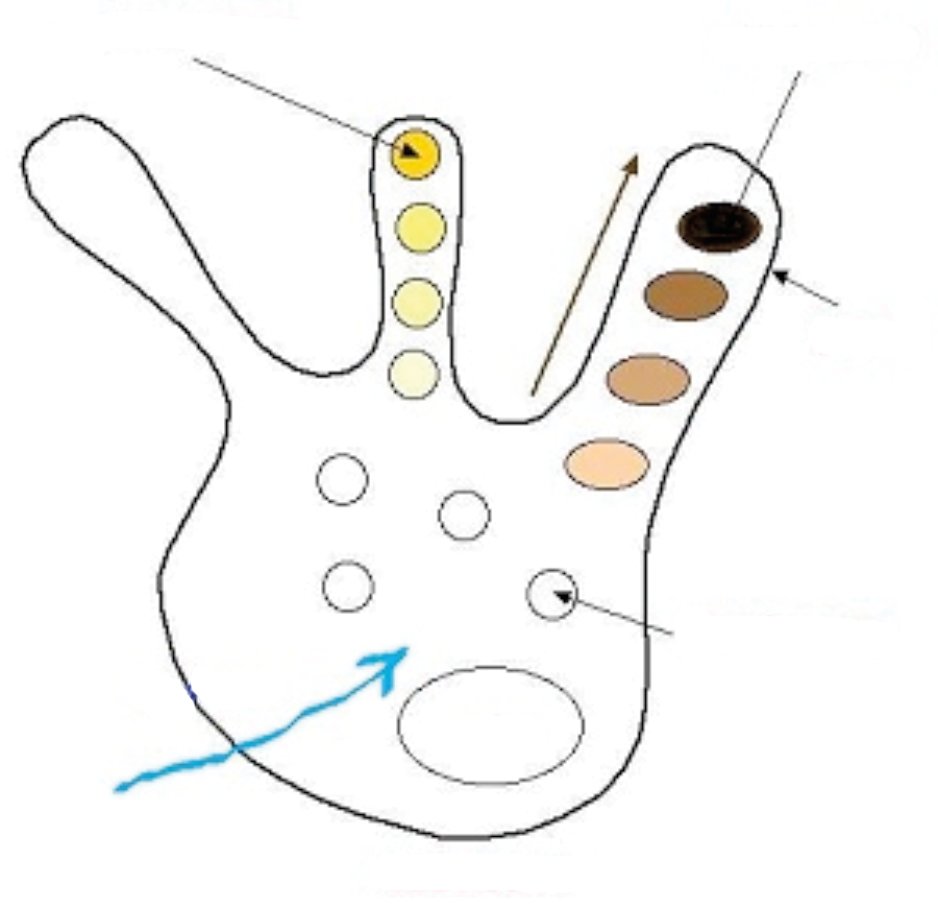
La vía metabólica para la obtención de melaninas es la siguiente: tirosinasa⟶dopa ⟶dopaquinona⟶melanina. El paso de dopaquinona a melanina no es directo. Los dos primeros pasos son reacciones químicas catalizadas por la enzima tirosinasa. Estas reacciones se producen en los melanosomas (orgánulos delimitados por una membrana situada en el interior de los melanocitos). Por lo tanto, para provocar el albinismo basta que la cadena metabólica se interrumpa en cualquiera de sus puntos: la ausencia de tirosinasa es, en cualquier caso, la causa principal del albinismo. Pero no todos los albinos carecen de tirosinasa y en estos casos el problema reside en algún otro paso que no involucre a la tirosinasa o en el transporte de los precursores de la melanina al interior de los melanosomas. Estos ejemplares son los que hemos definido como tirosinasa positivos, en contraposición con aquellos que carecen completamente de tirosinasa, a los que hemos denominados tirosinasa negativos. Los ejemplares T+ se presentan ligeramente más oscuros que los T- por cuanto se producen algunas moléculas de melanina y consiguen colocarse en los melanosomas. Tratemos de comprender mejor esta afirmación, que perfecciona la precedente teoría de Van Mol, es decir cómo es posible la existencia de modificaciones albinoides del fenotipo de algunos canarios, a pesar de la existencia de tirosinasa. El mutante de van Haff, mejor conocido como Eumo, es el ejemplo primario de un expresión albinoide de los canarios no dependientes de la tirosinasa. La comprensión ahora es posible porque numerosas investigaciones sobre algunas formas de cáncer en el género humano demuestran la estrecha relación entre algunos tumores y la no correcta síntesis de la pigmentación de las melaninas. Tal hipótesis es objeto de numerosos estudios y cada año, se publican centenares de artículos científicos sobre el tema.
Síntesis de los melanosomas
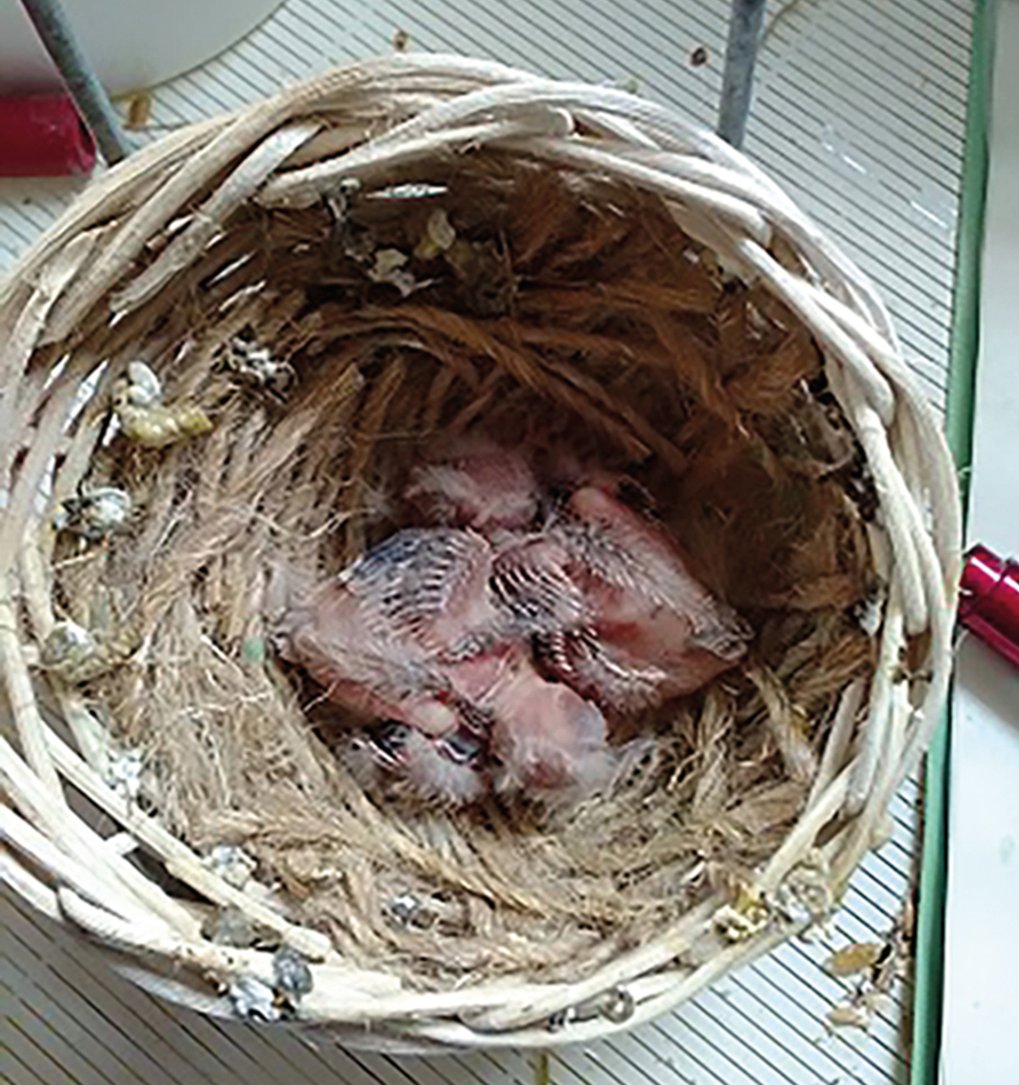
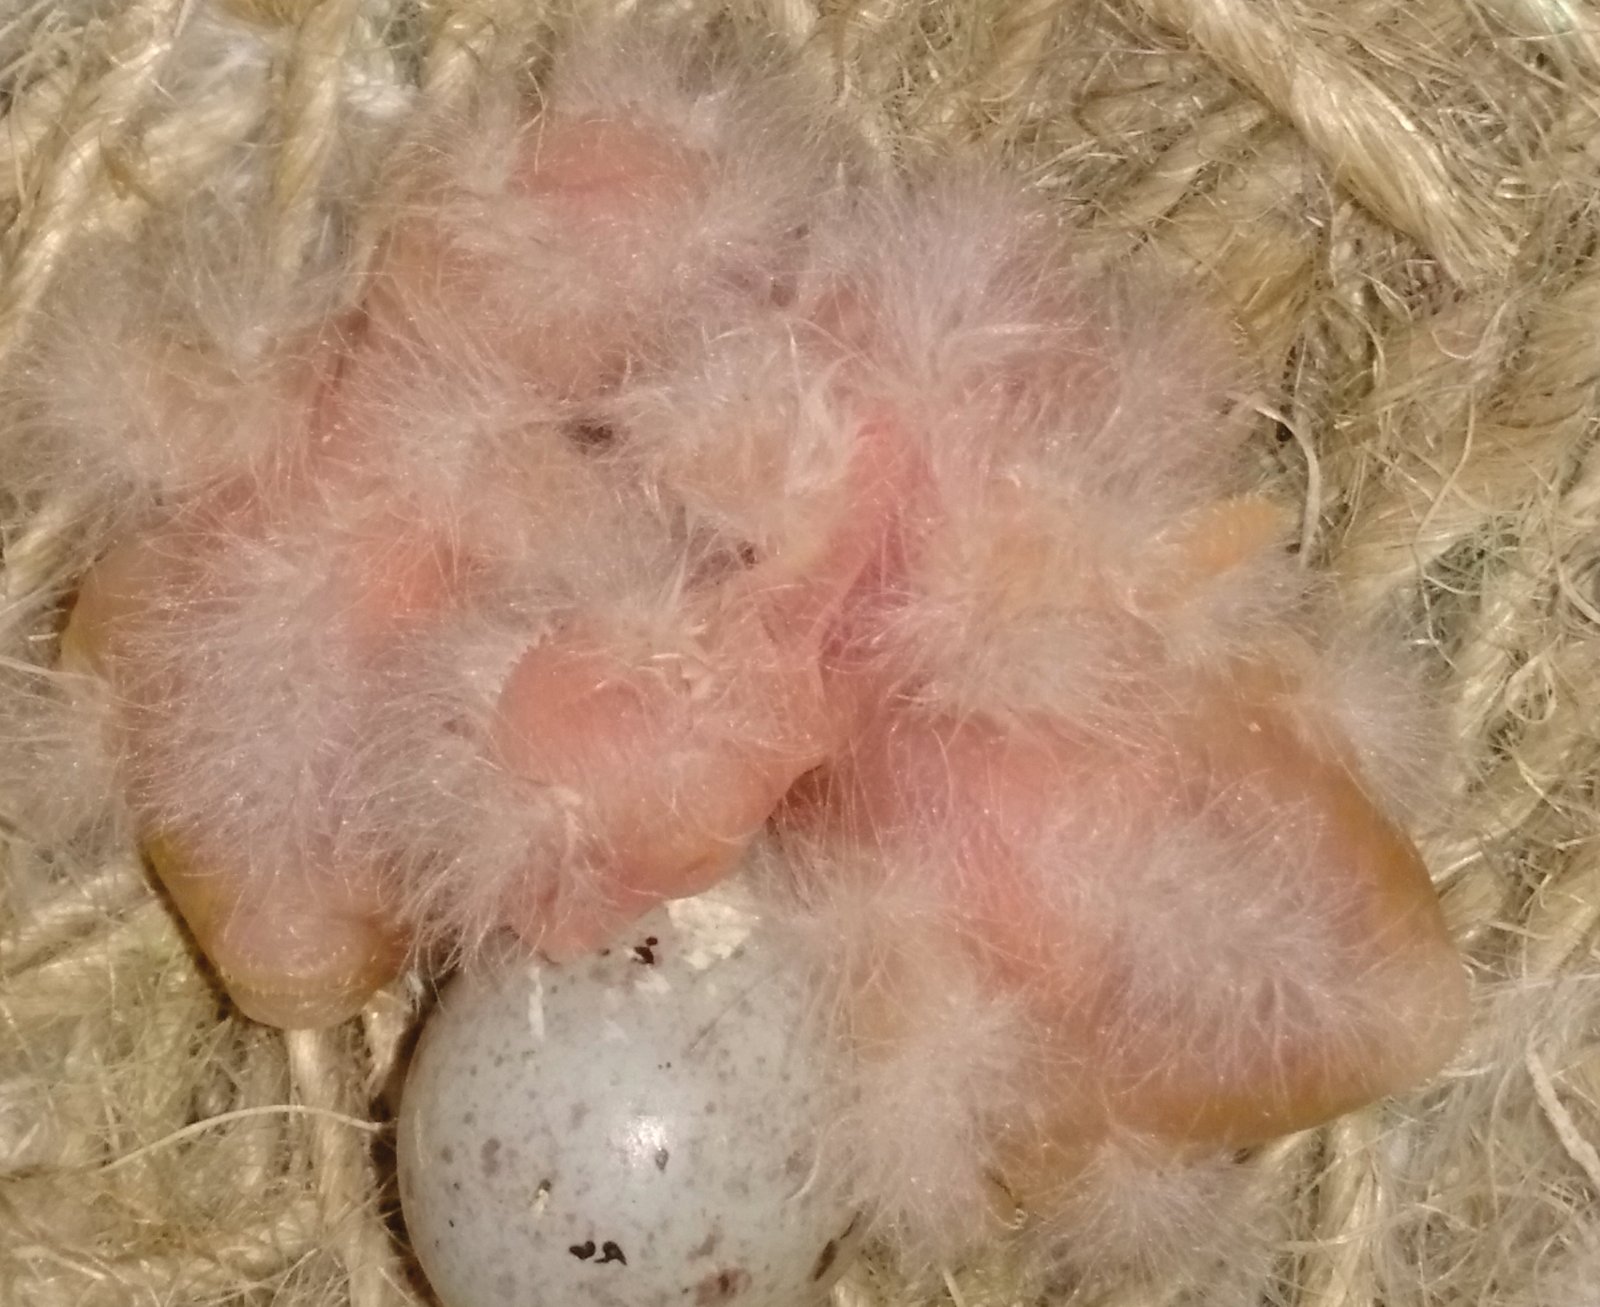
La melanina tiene su origen en la formación de gránulos de pigmento, conocidos como melanosomas, en el interior de los melanocitos. El melanosoma está formado en esencia por una estructura matricial proteica, con forma de filamentos en espiral incoloros; son numerosas y diferentes las proteínas que componen la matriz. La producción de estas matrices incoloras está controlada por más de un gen, en el sentido de que cada proteína tiene un gen específico que la soporta en una correspondencia biunívoca. Si durante la producción de la matriz proteica de los melonosamas (gránulos de pigmento), falta alguna de las proteínas necesarias por efecto de la mutación de un gen, el resultado será una matriz subdesarrollada (casi siempre más pequeña) o deforme. La consecuencia es que la formación normal del pigmento queda alterada y ninguna coloración negra (último estadio) podrá tener lugar y éste es el efecto del albinismo tirosinasa positivo (Ty-pos). La mutación Satiné es un ejemplo evidente de albinismo SL (ligado al sexo) T+, esto es independiente de la tirosinasa pero ligada a la degradación de la matriz de los melanosomas. Por su parte, la mutación Phaeo (y por ende su alelo Topacio) son ejemplos de albinismo NSL del tipo T-. En los Phaeo, la falta de tirosinasa impide al premelanosoma convertirse en eumelanina (conformando el típico diseño en escamas), mientras que en el Topacio la tirosinasa está inicialmente ausente (los ojos rojos son un signo macroscópico), pero después se recupera (quizás a causa de la alimentación), lo que permite la formación de eumelanina, que sin embargo se queda en los primeros estadios. Son poquísimos los melanosomas que alcanzan la madurez plena del estadio IV de la coloración negra. Por tanto, las mutaciones Phaeo y Topacio determinan ambas un bloqueo de la síntesis de las eumelanina (el mismo efecto cualitativo) pero con efectos cuantitativos diferentes (bloqueo total en la Phaeo y bloqueo parcial en la Topacio). Sin embargo, los dos tipos tienen subplumaje oscuro y todo hace pensar en un proceso reparador que restituye el gen o los genes a su función primitiva. Estos conceptos fundamentales ponen límites: teniendo en cuenta la naturaleza Ino del Topacio, estos nunca podrán producir melaninas de color negro, por cuanto ningún melanosoma podrá alcanzar el nivel IV de oxidación de las melaninas. La naturaleza albinoide del Topacio se motiva incluso sin recurrir a justificaciones científicas. De hecho, quien cría topacio sabe que a su nacimiento los noveles, además de tener los ojos rojos (manifestación del albinismo latente) tienen un color de la piel difícilmente distinguible de la de los canarios lipocrómicos, a pesar de que son melánicos.
Formación del plumaje del Topacio
Analizaremos ahora la forma en que las melaninas del topacio se transfieren a las plumas en vías de desarrollo y en particular, la formación de los rebordes claros y asimétricos de las plumas. Como en todos los pájaros, también en los Topacio los melanocitos se hacen más densos en la base del nacimiento de la pluma, situado en la raíz del folículo. Al lado de los melanocitos se encuentran los queratinocitos, responsables de la síntesis de la queratina, que es la principal proteína de las plumas. Ambos tipos celulares se encuentran al nivel del collar del folículo, vinculados por un sistema quimico-histológico interconectado. Los melanocitos poseen numerosas proyecciones dendríticas responsables de la transferencia de las melaninas a los queranocitos de las barbas y, por consiguiente, condicionan las zonas de coloración de las plumas definitivas. Existen genes capaces de controlar tanto la estructura de las ramificaciones dendríticas como la liberación de las melaninas por parte de los melanocitos. Sin lugar a dudas, las mutaciones que intervienen en el control histoquímico de la liberación de las melaninas interfieren en la distribución de éstas sobre el plumaje y, en particular, en la formación de los rebordes. La más sencilla de las interpretaciones de esta distribución melánica debería prever una interacción aditiva de la mutación Ágata y de la mutación Topacio. La menor producción de melanina por parte de los melanocitos en las primeras fases de la génesis de las plumas (efecto de la mutación Ágata, también ella misma albinoide (SL T+) configura bordes, que son los primeros en formarse, que la mutación topacio hace que estén casi privados de melanina, conformando zonas de evidente rarefacción melánica. En las fases sucesivas, la melanogénesis arranca de nuevo y se llega a la formación de eumelanina degradada, la cual estará presente sólo en las zonas formadas en último lugar, es decir en las zona central de las plumas, alrededor del raquis. La coloración de la melanina alrededor del raquis se queda, sin embargo, a medio camino porque el factor InoT impide la formación de negro y por consiguiente que la melanina llegue a ser negra. Pero aquí ocurre algo verdaderamente desorganizado, porque la liberación de las melaninas se produce con tiempos diferentes para cada barba, por lo que las diferentes barbas resultan pigmentadas de forma diferente, justificando así los rebordes asimétricos y totalmente despigmentados; son los melanocitos los que establecen el ritmo (caótico) de deposición del pigmento sobre cada barba y este ritmo es hereditario.
Texto: Cosimo Alfonzetti. Créditos fotográficos conservados en el artículo.