Introducción ¿Turba? ¿No será Torba o Bruno recesivo? Sí, es Turba, la denominación en español de esta mutación. Torba, en cambio, se trata de la denominación italiana, que se ha importado a España sin traducir. ¿Acaso llamamos en España “rosso” a los canarios rojos? ¿U “opale” a los opales? La Turba es el carbón fósil formado a partir de residuos vegetales, de color pardo oscuro, aspecto terroso y poco peso. El color de este material se consideró como el apropiado para denominar a esta mutación de carácter recesivo y autosómico (Gómez, 2012). En el presente artículo hablaremos sobre un factor al que considero no se le ha prestado la suficiente atención. Factor que podría ayudarnos a clarificar muchas dudas en torno a la eumelanina marrón. Se trata de una mutación de origen autosómico, que produce a primera vista eumelanina marrón. Esto hace que puedan surgir varias preguntas. ¿El origen de la eumelanina marrón está únicamente ligado al cromosoma sexual Z?
¿Cómo es que una misma apariencia fenotípica es producida por distintos genes? Características del Mejicano Con pico robusto, activo en la jaula y de actitud gallarda, el Carpodaco mejicano es una especie fringílida americana. En la actualidad, goza de muchos adeptos en España y ello se refleja en la concurrencia de ejemplares en los concursos, principalmente a nivel nacional. Esta afluencia se ha visto por fin recompensada de manera que el Carpodaco mejicano ha pasado a considerarse Exótico Doméstico (F1). Es importante reseñar que la sección de exóticos se presenta dividida en dos grandes grupos: Exóticos domésticos (F1) y Exóticos no domésticos (F2). Cada grupo es enjuiciado con planillas de enjuiciamiento distintas, por tanto, la valoración será diferente. Los carpodacos se caracterizan por poseer entre su librea tintes rojizos o rosáceos. Son muy gregarios durante el período de reposo, sin embargo, en la época de reproducción se vuelven territoriales y agresivos.
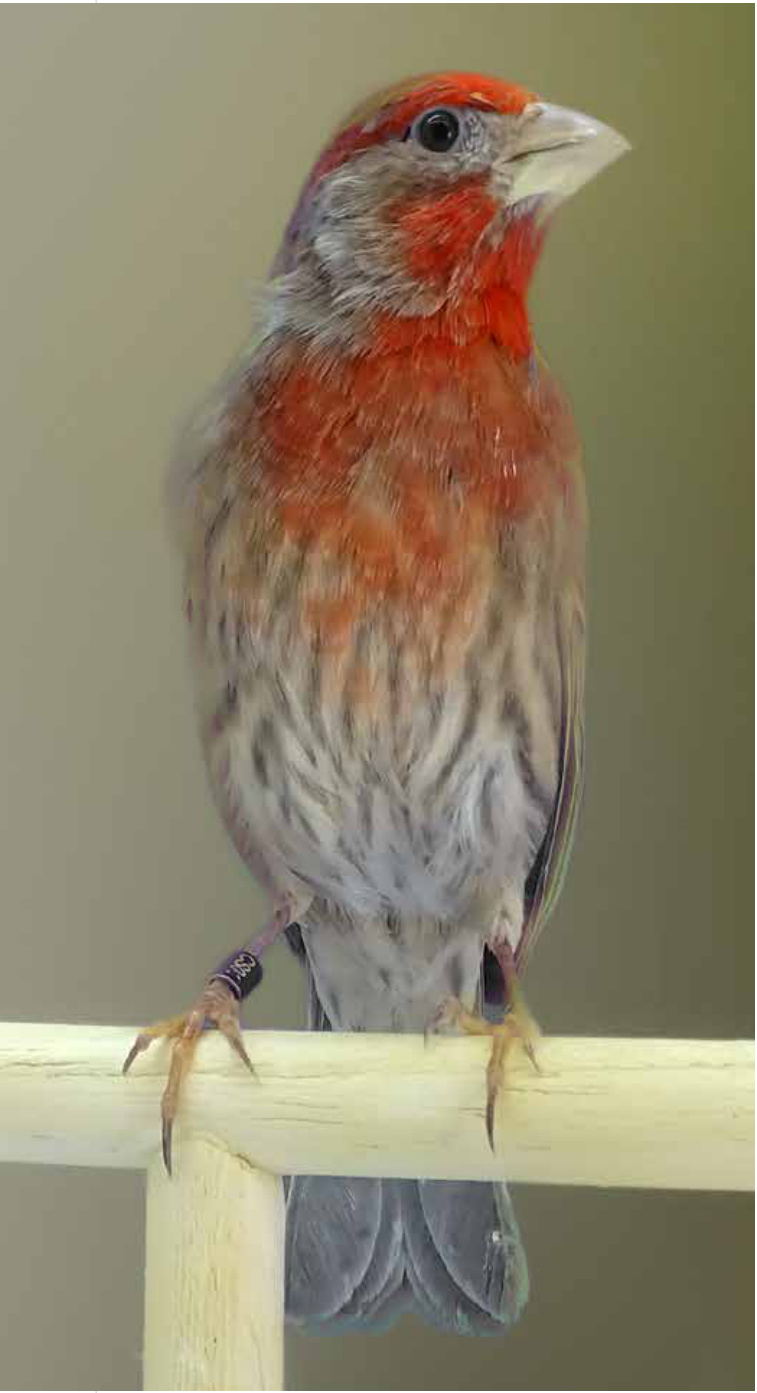
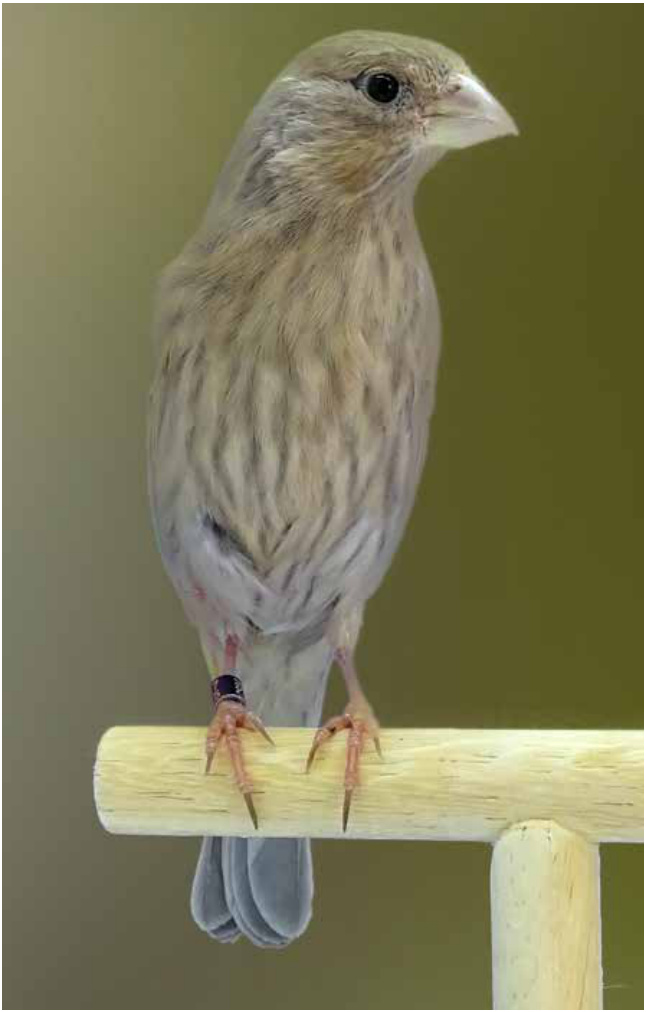
Presentan un evidente dicromatismo sexual, que en el Carpodaco mejicano se puede evidenciar ya desde la primera muda. Esto es debido a que adquiere el plumaje de adulto ya en su primer año, al contrario que el resto de las especie de su género (Esuperanzi, 2005). Alcanza una talla que varía desde los 12,5 cm hasta los 15 cm en los ejemplares de mayor talla (Clement, Harris, y Davis, 2011). Su silueta es más bien esbelta, aunque en los mejores ejemplares será muy armónica y no tendrán las patas excesivamente alargadas, mostrando demasiado la tibia. El dicromatismo sexual se evidencia principalmente por la distribución y cantidad de lipocromo en su librea de adulto. En el macho, abarca la frente, el mentón, el pecho, la garganta, la lista superciliar, además del obispillo. En cambio, en la hembra sólo podremos apreciar un ligero velo rosado en las zonas descritas con anterioridad, aunque éste deberá presentarse más evidente en el obispillo.
En cuanto al diseño, está formado principalmente por estrías eumelánicas, con una buena carga de feomelanina, distribuidas por todo el cuerpo en las hembras. En los machos, al poseer tintes rojizos en la frente, el mentón, el pecho, la garganta, la lista superciliar, además del obispillo, no podremos apreciar dichas estrías en estas zonas. La denominación científica de la especie ha sido hasta hace poco “Carpodacus mexicanus”. Sin embargo, en marzo de 2012, a propuesta de Richard C. Banks para la lista de Clement se cambió esta denominación al ubicar al Carpodaco mejicano dentro de un nuevo género llamado Haemorhous. El nuevo género esta formado por las tres especies norteamericanas del antiguo género “Carpodacus”, que son Carpodacus purpureus, Carpodacus cassinii y Carpodacus mexicanus. Haemorhous es una palabra que podría ser sinónima de “Carpodacus” y viene a significar “varios tonos de rojo”, que es la mayor de las particularidades de las tres especies norteamericanas.
Esta nueva denominación fue también aprobada por casi todas las listas de clasificación de aves, incluida, por ejemplo, la de Howard and Moore en su 4ª edición. Dicho cambio tuvo su origen en el estudio de Arnaiz-Villena y col. de 2007, donde pudieron determinar una gran distancia filogenética de Carpodacus cassinii y Carpodacus mexicanus respecto de las especies de su género. En dicho estudio no se incluía al Carpodacus purpureus. Posteriormente, los estudios de Lerner y col. (2011) y Zuccon y col. (2012) llegaron a las mismas conclusiones respecto de la distancia filogenética de las tres especies americanas con el resto de especies Carpodacus del viejo mundo. Al contar con una distribución muy amplia y tratarse de una especie por lo general sedentaria (Clement, Harris, y Davis, 2011), es habitual que se hayan podido identificar varias subespecies.
Siguiendo la lista “The eBird/Clements checklist of birds of the world: 2015” las subespecies reconocidas en el Carpodaco mejicano son: - Haemorhous mexicanus frontalis: suroeste de Canadá al oeste de los Estados Unidos, Baja California y noroeste de México. - Haemorhous mexicanus clementis: canal de Islas (frente al sur de California) y las islas Coronados (frente al norte de Baja California). - Haemorhous mexicanus amplus: Guadalupe I (frente a Baja California) - Haemorhous mexicanus ruberrimus: sur de Baja California y noroeste de México (Sonora, sur de Sinaloa y suroeste de Chihuahua). - Haemorhous mexicanus rhodopnus: árida central tropical de Sinaloa. - Haemorhous mexicanus coccineus: montañas del suroeste de México (sur de Nayarit y suroeste de Zacatecas hasta suroeste de Michoacán). - Haemorhous mexicanus potosinus: sur de Texas (Rio Grande Valley).
De Chihuahua hasta suroeste de Tamaulipas. - Haemorhous mexicanus centralis: meseta del centro de México (Guanajuato, Querétaro y estados adj.). - Haemorhous mexicanus mexicanus: sur de la meseta central de México (este de Michoacán hasta Hidalgo y Oaxaca). - Haemorhous mexicanus roseipectus: sur de México (sur de Puebla y Valle de Oaxaca). - Haemorhous mexicanus griscomi: suroeste de México (Sierra madre del sur de Guerrero). - Haemorhous mexicanus mcgregori: antiguamente San Benito e isla de Cedros (Frente a Baja California). Considerado extinto desde 1938. Las diferencias entre las razas se muestran principalmente en los machos y se relaciona con la oxidación del dorso y la extensión e intensidad del color carmesí en la frente y la nuca hasta la corona, a los lados de las mejillas y del mentón al pecho.
En la raza nominal, los machos de México son ligeramente más oxidados en las partes superiores como el dorso, y el tono carmesí de la frente y lista superciliar es más profundo que en las partes inferiores como la barbilla, la garganta y la parte superior del pecho; los lados y la parte inferior del pecho son de color gris-marrón y el vientre y los flancos son de color blanquecino, veteado de color marrón. La subespecie amplus es la raza más grande, con una base más grande o más pesada en el pico (apreciable en el campo) y tiene tonos carmesí que se extienden sobre los lores inferiores y las mejillas. La subespecie frontalis presenta abundante rojo en la cabeza y la parte superior del vientre (Clement, Harris, y Davis, 2011). En el libro “Finches & Sparrow” se hace referencia a que existen ejemplares en los que el rojo aparece reemplazado por amarillo.
En ningún momento se hace referencia a que estos sujetos de tintes amarillos constituyan una subespecie o raza sino que sólo algunos ejemplares presentan estos tintes amarillos sin, aparentemente, ningún patrón previsible. En mi opinión, lo más probable es que estos ejemplares “amarillos” antes y/o durante la muda hayan estado enfermos; también, y en cualquier caso, podría ser debido a que hayan tenido una alimentación pobre en carotenos. Según varios estudios realizados por Geoffrey Hill en los años 90, se concluyó que “las hembras de carpodaco mejicano escogen pareja fijándose en los machos más rojos. Estos individuos más coloreados tienen mejor condición física, más resistencia a los parásitos, y son mejores padres” (Senar, 2004).
Siguiendo los estudios de Geoffrey Hill, debido a que las hembras de su especie prefieren claramente aparearse con sujetos de tintes rojo brillante, se puede concluir que los ejemplares de tintes amarillos o anaranjados no son más que sujetos en malas condiciones físicas, ya sea debido a una enfermedad o a una alimentación pobre antes y/o durante el periodo de muda. Esto no significa que no se descarte la posibilidad de que existan ejemplares “amarillos” en los que, debido a una alteración genética heredable, su lipocromo se presente diluido o, mejor dicho, modificado tal y como ocurre en el Camachuelo común (Pyrrhula pyrrhula). De hecho, parece ser que hay criadores españoles trabajando para fijar esta variedad “amarilla”. En cuanto a su cría en cautividad, podemos decir que es el más prolífico y conocido de su género, siendo utilizado por muchos criadores como nodriza de otras especies cuya cría en criadero es más compleja.
Debemos prestar atención a los machos, pues suelen tener la líbido muy alta, pudiendo provocar que no dejen a la hembra tranquila durante el periodo de incubación y destete de los pollos. Por ello, se recomienda separar al macho cuando no colabore en las labores de cría de los polluelos. Su fogosidad aumentará si es criado en jaula. Particularidades de la mutación Esta mutación en el Carpodaco mejicano da pie a un amplio debate sobre la eumelanina marrón. En un principio, la mutación que originaba eumelanina de color pardo oscuro, y no negra, tuvo siempre su origen en una alteración genética heredable del segmento diferencial del cromosoma sexual Z. De hecho, ya hay un estudio genético en el Diamante mandarín donde se da nombre al gen que codifica la enzima responsable de la formación de la melanina, llamándolo (TRP-1), siglas en inglés de la proteína relacionada con la Tirosinasa-1.
Sin embargo, esto no es así en el Carpodaco mejicano en el que la mutación (turba) que provoca la producción de eumelanina marrón tiene un origen distinto, ubicado en los cromosomas autosómicos. Esta es una clara evidencia de que en la síntesis de la melanina (melanogénesis) actúan varias parejas de genes y no sólo el ubicado en el segmento diferencial del cromosoma sexual Z. La alteración genética de los sujetos turba y bruno produce que fenotípicamente se aprecie lo que hasta la fecha se denomina como eumelanina marrón, mostrándose, por tanto, como una prueba de que podemos encontrarnos fenotípicamente a dos ejemplares prácticamente iguales, en referencia a la mutación que les afecta, pero que, sin embargo, no presenten un genotipo común.
“El factor bruno impide la transformación de la eumelanina marrón en negra, debido a una menor polimerización y oxidación en las etapas finales de la melanogénesis, y es debido a que la enzima responsable de dicha transformación (peroxidasa) queda inactivada, o al menos parcialmente, ya que en los canarios brunos podemos apreciar restos de eumelanina negra dispersa en el subplumaje” (Cuevas, 2010, p. 175). El factor turba, también denominado “Bruno recesivo”, da pie a pensar en la teoría de que esta mutación produce que la eumelanina no logre terminar su proceso de oxidación y, por tanto, adquiera un color pardo oscuro. Sin embargo, en el caso de esta mutación, al ser de tipo autosómico, no queda tan clara esta posición de la interrupción del proceso de melanización. Más bien, podríamos hablar de una reducción de la carga y, por tanto, de la concentración eumelánica que produce ese tono marrón.
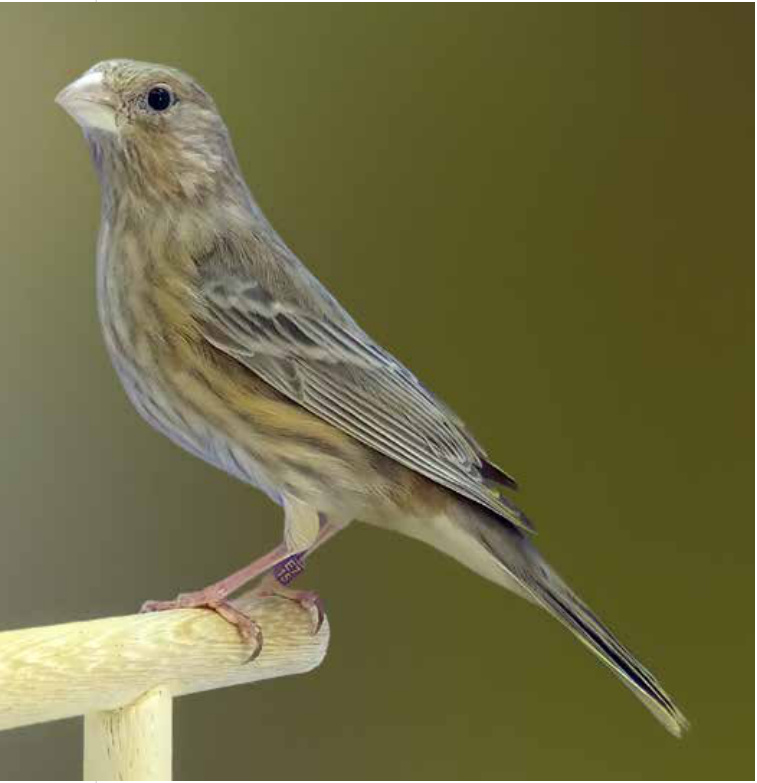
El que la melanina sea marrón o negra depende de su concentración, es decir, cuanto más sustrato (tirosina) exista para oxidar y polimerizar posteriormente, la melanina estará más densa, y por tanto aparecerá más oscura, con lo que el peso molecular de la melanina negra será también mayor que el de la marrón. Es por ello que la concentración y distribución de los melanosomas (corpúsculos citoplasmáticos donde se almacena la melanina) en el plumaje origina las diferentes coloraciones desde el marrón hasta el negro (Cuevas, 2010). En algunas ocasiones, se han podido observar Carpodacos mejicanos turba que son difícilmente distinguibles de otros sujetos clásicos posibles portadores de turba y que, además, posean mucha feomelanina, en los que la tonalidad de las partes córneas suele ser el elemento esclarecedor, siendo en los turba de un tono marrón escasamente cargado de melanosomas.
También he podido conocer, gracias a las apreciaciones de los criadores, que los ejemplares turba, al nacer, se distinguen de los clásicos por ligeras diferencias de tonalidad en los ojos, la piel y el plumón. Al contrario de lo que sucede en los canarios de color y otras especies donde actúa el factor bruno, las diferencias y tonalidades en los primeros días de nacimiento son muy superiores. Este puede ser un punto de partida para distinguir fenotípicamente una mutación de otra. Al parecer, la concentración de melanosomas es menor en los ejemplares con el factor bruno comparados con sus clásicos. Por el contrario, en los ejemplares turba, la concentración de melanosomas es inferior que en el clásico, pero esta diferencia no es tan acusada.
Podríamos decir que esto es debido a que la concentración melánica en el Carpodaco mejicano es netamente inferior a la de otras especies de fringílidos; la prueba está en la especial sensibilidad que presentan a determinados fármacos como el antibiótico enrofloxacina por ejemplo, o, también, a otras causas nutricionales o ambientales, que posteriormente dejan hipopigmentaciones en remeras y timoneras con notable frecuencia. Por tanto, esta liviana alteración de la concentración melánica en dicha especie produce como resultado una gran alteración fenotípica, dando como resultado la apariencia de ejemplares afectados por el factor bruno, cuando en realidad el que actúa es el factor turba. En definitiva, el que hayamos apreciado esta alteración fenotípica en el Carpodaco mejicano es posible que sea debido en parte a la escasa carga o concentración melánica que ya de por sí poseen estos ejemplares.
En referencia al estándar podemos decir que los diseños y los tintes carmín se deberán presentar igual que en los sujetos clásicos. En cuanto al tono melánico, la única variación que produce este factor, se suele presentar muy desigual de unos ejemplares a otros; los de mayor calidad serán aquellos en los que el tono sea marrón oscuro, presentándose lo más cálido posible. O sea, el color ideal debe tener tonalidades pardo-rojizas y no pardo-grisáceas. El resto de las características, como el tipo y estructura, el plumaje, la actitud y posición, además de la condición, deberán ser las mismas que presentaría un sujeto clásico de calidad. Combinaciones de mutaciones: Turba Diluido Las combinaciones en este carpodaco están todavía en proceso de fijación. Sigue siendo muy complejo identificarlas debido a la escasa oxidación que presentan y a la fragilidad de los ejemplares que las poseen. Hasta la fecha, todas las mutaciones reconocidas del Carpodaco mejicano son recesivas y autosómicas.
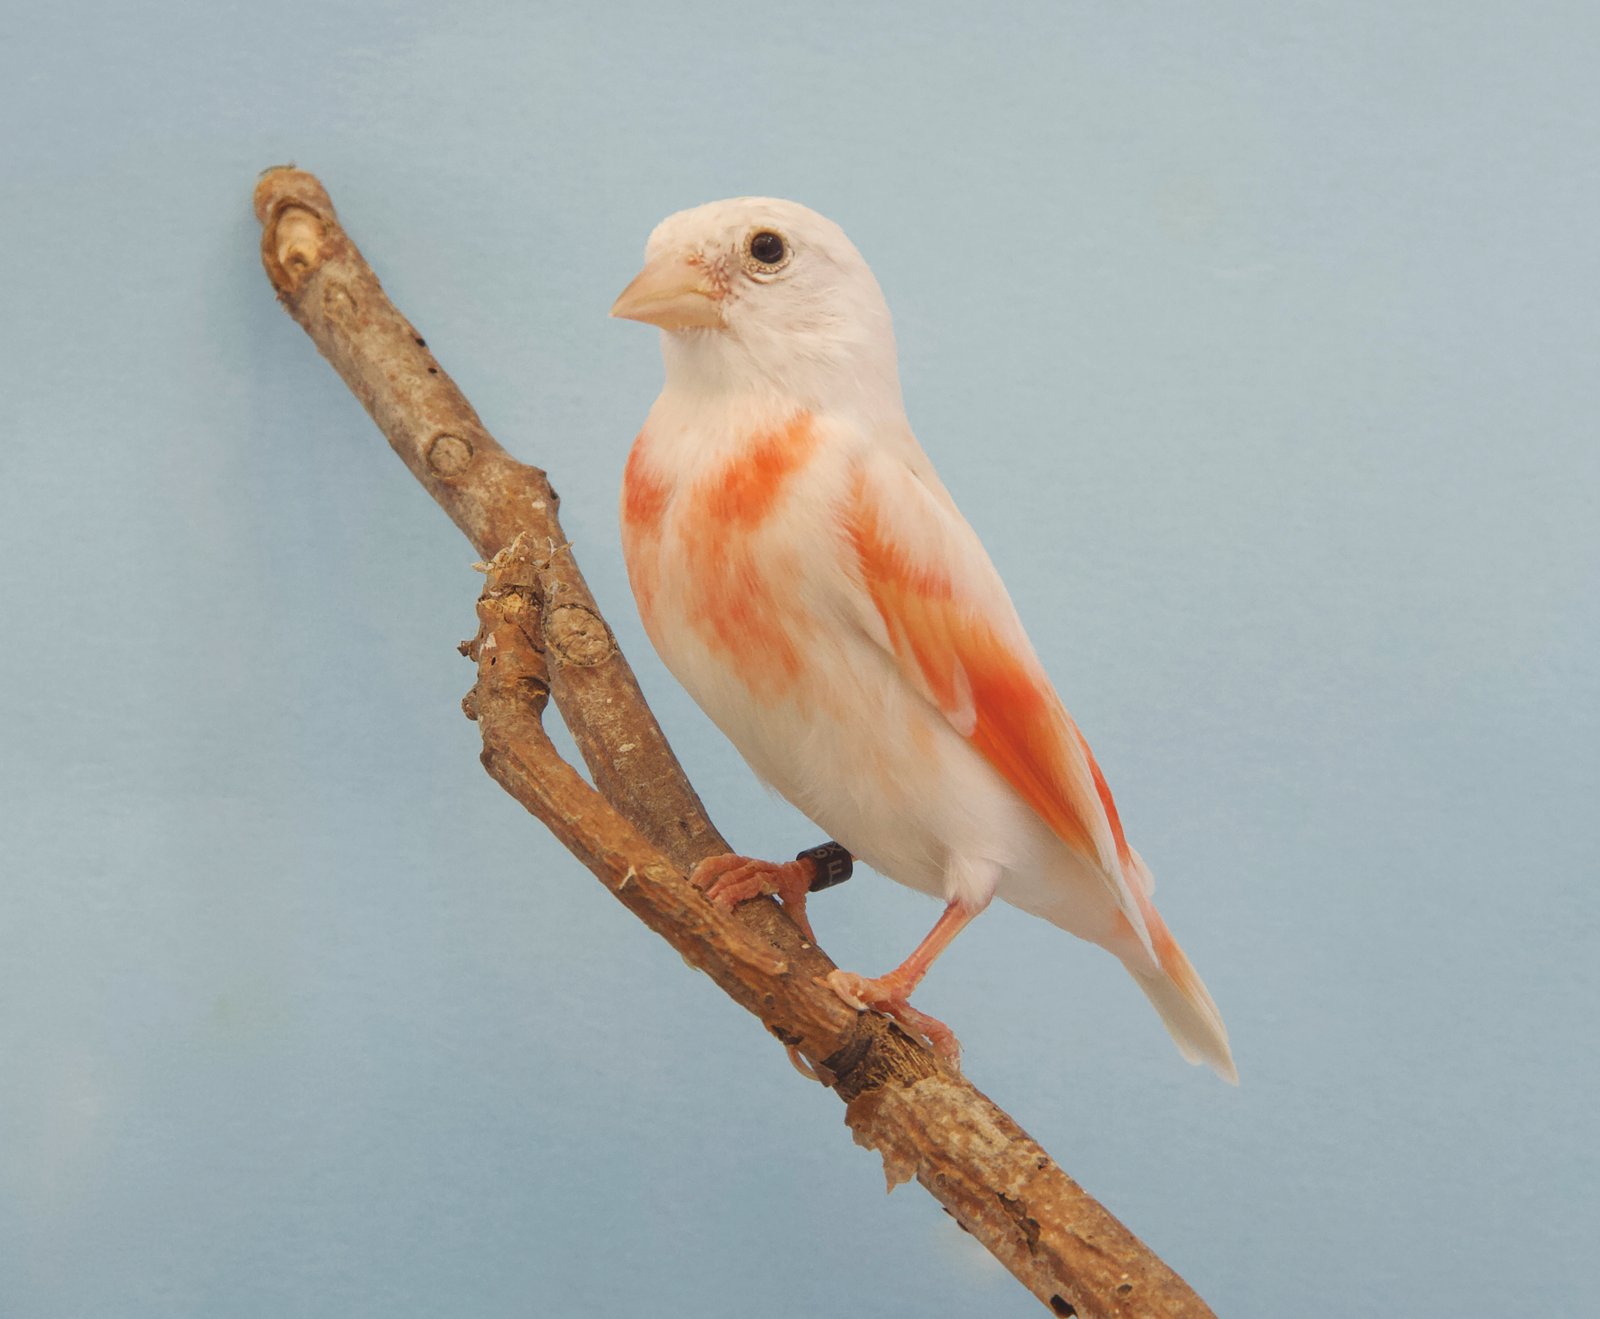
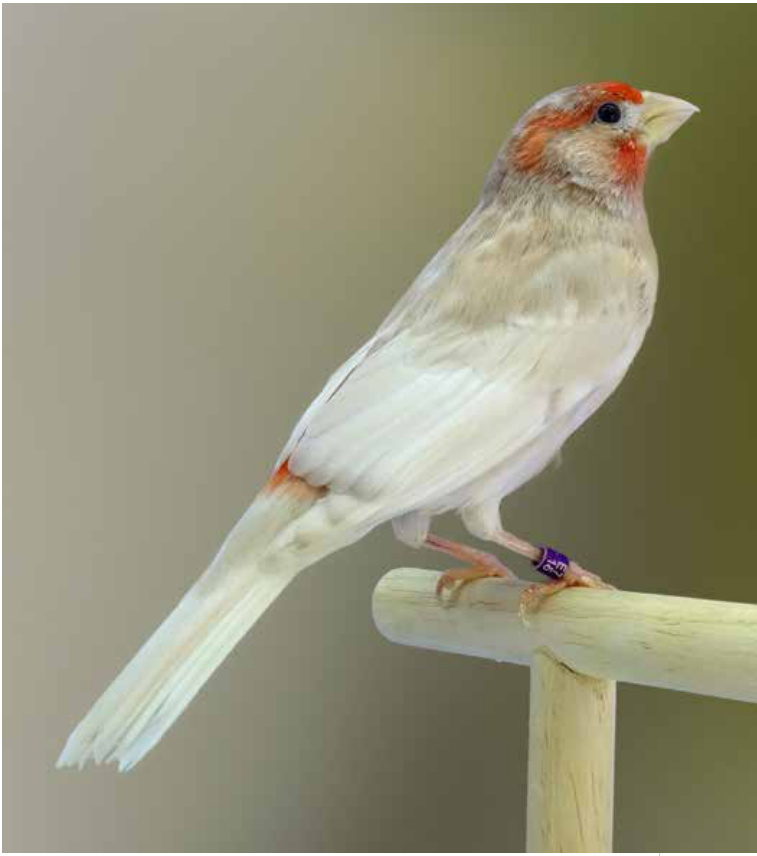
Ello hace que se tenga que recurrir a la consanguinidad para lograr dichas combinaciones. Sin embargo, entre las fotografías que ilustran este artículo podemos ver un macho y una hembra con la combinación turba diluido. Ésta parece presentarse como la combinación que más frecuentemente podemos observar en concurso. Los defectos más habituales en estos ejemplares suelen ser principalmente la falta de vigorosidad y la poca oxidación que presentan, principalmente en las plumas de vuelo. El factor turba, que modifica el color base (marrón oscuro), y el factor diluido, que diluye sensiblemente el depósito eumelánico y prácticamente inhibe el depósito feomelánico, logran en combinación un tono beige claro con ligeros reflejos grisáceos. Sin embargo, este tono parece presentarse muy diverso según la zona. La mejor opción será la búsqueda de un tono uniforme y lo más oxidado posible.
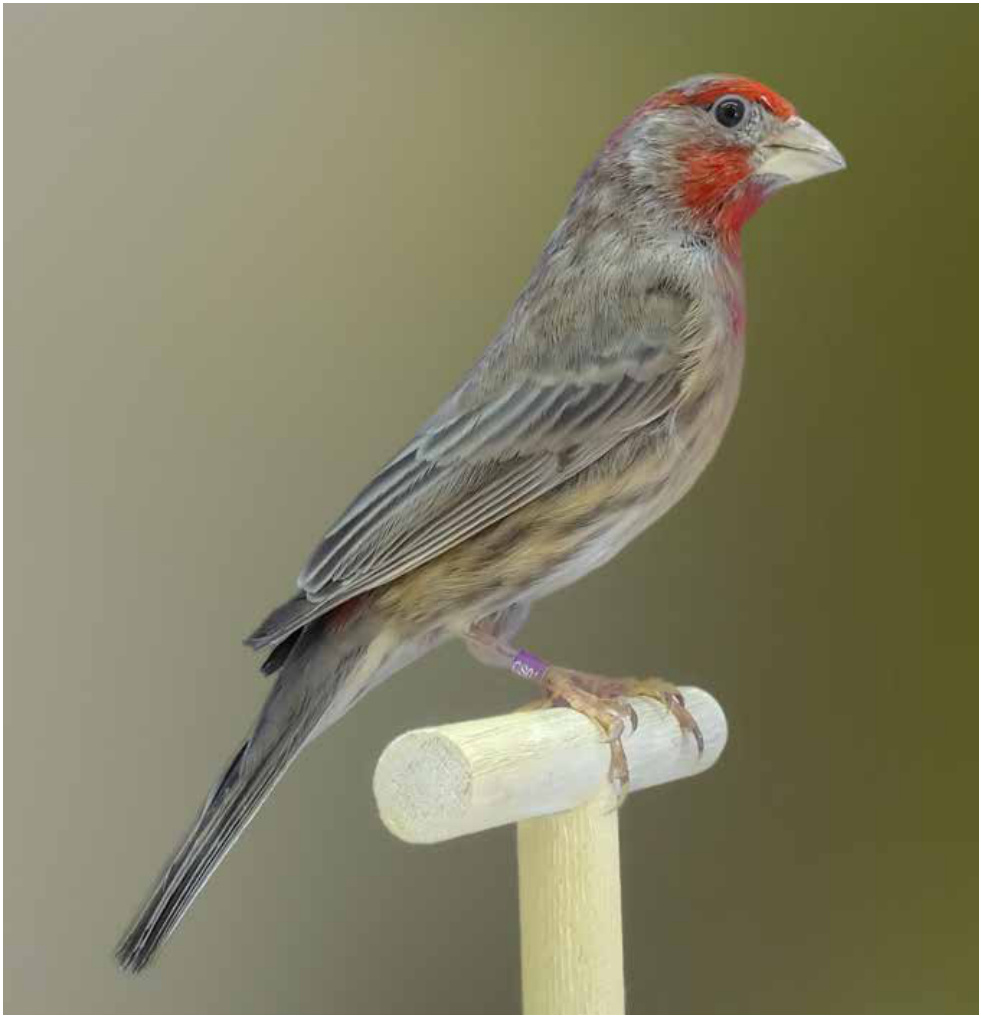
En cuanto al diseño, debe ser el mismo que en el sujeto clásico, aunque mucho menos marcado debido al efecto que produce la combinación. Con respecto al resto de apartados a valorar, estos deberán presentarse como si de un sujeto clásico de calidad se tratara. Vías de selección A mi juicio, el mayor reto al que se enfrenta un criador de Carpodaco mejicano no es su adaptación a la jaula de concurso, sino la selección en la búsqueda de ejemplares que definan lo mejor posible los tonos rojizos en los machos. Lograr un buen contraste entre el rojo carmín y el inicio de la melanina en el pecho, es de lo más complicado de lograr. En las imágenes podemos apreciar lo que podría asemejarse al ideal en cuanto al tono y delimitación del lipocromo de un macho y una hembra de Carpodaco mejicano. En las hembras, los tonos carmín han de ser casi inexistentes; lo mejor es evitar dar alimentos con gran aporte de carotenoides.
En caso contrario, muchas hembras podrán presentar bastante más que “un ligero velo rosado”, principalmente en el pecho y garganta. En cuanto a la selección del Carpodaco mejicano turba, personalmente recomendaría su selección en pureza o, en todo caso, con ejemplares clásicos óptimos. Es indudable que mezclar mutaciones con la intención de buscar buenos ejemplares turba, o de cualquier otro factor, es un camino erróneo; esto es principalmente debido al llamado “efecto portador”, que aporta impurezas a la mutación. Impurezas que luego se verán reflejadas en el fenotipo cromático. Como en la selección de otros muchos factores, el uso de ejemplares clásicos es, en muchos casos, beneficioso. El gen clásico aporta vigor, además de tamaño y oxidación, siempre que se parta de buenos ejemplares clásicos.
Debemos recordar que no sólo hemos de orientar nuestra selección al color, tamaño o cualquier otro de los apartados que se valoran en concurso, sino a la totalidad de ellos, en la medida de nuestras posibilidades. Por ello, en base a la ley de la compensación, debemos buscar individuos que puedan mejorar aspectos en los que nuestros ejemplares deben perfeccionar. Es especialmente recomendable el uso de ejemplares clásicos en la selección de las combinaciones de mutaciones. Aunque, en algunos casos logremos pocos ejemplares con la combinación deseada, estos, en la mayoría de las ocasiones, poseerán una librea mucho más optima y vigorosa. Es evidente que queda mucho camino por recorrer en la selección del Carpodaco mejicano y todavía están por verse ejemplares más robustos y pesados, al igual que machos en los que los tonos carmín aparezcan muy bien definidos.
Aun así, viendo la progresión que está teniendo esta especie en los últimos años, es de esperar que podamos observar sujetos impresionantes en muy poco tiempo. Conclusiones Volviendo a las cuestiones que inicialmente se propusieron y después de todo lo expuesto anteriormente podemos concluir lo siguiente: • ¿El origen de la eumelanina marrón está únicamente ligado al cromosoma sexual Z? No, en el proceso de formación de la melanina o melanogénesis están involucrados más parejas de genes homólogos que el conocido “TRP-1” del Diamante mandarín. Una evidencia de ello son las múltiples mutaciones que afectan a la distribución, concentración y dilución de la melanina en nuestros pájaros, siendo éstas de carácter autosómico (autosomas) o ligado al sexo (cromosoma sexual Z). Por otro lado, podemos concluir que el tono marrón o negro de la eumelanina dependerá de su concentración o, mejor dicho, dependerá de la densidad de melanosomas en las plumas.
Cualquier alteración genética, ya sea la del factor bruno o la del factor turba, puede producir que esta concentración de melanosomas se vea alterada por distintas vías. En el caso de la mutación bruno, debido a una menor polimerización y oxidación en las etapas finales de la melanogénesis y, en el caso de la mutación turba, será distinto y atenderá a una menor afectación en el grado de concentración de los melanosomas. • ¿Cómo es que una misma apariencia fenotípica es producida por distintos genes? Son diversas las causas que pueden producir una misma apariencia fenotípica. En el caso que nos ocupa, debemos tener en cuenta que tratamos con especies distintas, como puede ser el Pardillo sizerín, el Canario o el Lúgano bruno comparadas con el Carpodaco mejicano turba, que a pesar de ser especies de una misma familia (Fringillidae), siguen estando suficientemente alejadas tanto en su genotipo como en la distribución geográfica.
Una evidencia muy significativa de esta distancia es la distinta carga melánica que poseen estos ejemplares, siendo el Carpodaco mejicano el de menor densidad melánica. Es esta una de las características de la especie a tener en cuenta para dar sentido al hecho de que una misma apariencia fenotípica tenga orígenes genéticos distintos. Conjuntamente, el hecho de que en los ejemplares turba, ya desde los primeros ejemplares mutados que se observaron, haya una escasa reducción de la concentración melánica, siendo ésta suficiente para dar un resultado eumelánico marrón oscuro. Por el contrario, en especies afectadas por el gen bruno en homocigosis, la reducción de la carga eumelánica es mucho mayor, evidenciándose ya desde el nacimiento, cuando se puede conocer perfectamente los ejemplares mutados por la tonalidad de los ojos.
Igualmente, en los primeros ejemplares brunos que se han podido observar de cualquier otra especie la tonalidad difiere bastante del marrón oscuro de la mutación turba, siendo más bien un tono beige claro; que posteriormente, mediante la selección, se han logrado ejemplares mucho más oxidados. En definitiva, considero muy importante dar a conocer esta mutación, pues su estudio podrá ayudar a ampliar los conocimientos sobre la génesis de la eumelanina marrón y, además, podrá ayudar a clarificar las diversas causas de su formación. También considero necesario conocer la especie donde se originó dicha mutación, siendo ésta una especie ya considerada doméstica (F1), que nos abre la puerta a un mayor conocimiento de los fringílidos “de tintes rojizos”, y no hablo del Cardenalito de Venezuela, sino que me refiero a los llamados “Camachuelos” pertenecientes a los géneros: Carpodacus, Uragus, Pinicola, Pyrrhula, Bucanetes, Rhodopechys, etc. Bibliografía - Arnaiz-Villena, A., J. Moscoso, V.
Ruiz-delFalle, J. Gonzalez, R. Reguera, M. Wink, and J. I. Serrano-Vela (2007). Bayesian phylogeny of Fringillinae birds: status of the singular African oriole finch Linurgus olivaceus and evolution and heterogeneity of the genus Carpodacus. Acta Zoologia Sinica 53: 826-834. - Clements, J. F., T. S. Schulenberg, M. J. Iliff, D. Roberson, T. A. Fredericks, B. L. Sullivan, and C. L. Wood. (2015). The eBird/Clements checklist of birds of the world: v2015. Recuperado de http://www. birds.cornell.edu/clementschecklist/download/ - Clement, P.; Harris, A.; Davis, J. (2011). Finches & Sparrow (reimpresión en tapa dura). Londres, Reino Unido: Bloomsbury Publishing Plc. - Cuevas, R. (2010). Los Canarios Lipocrómicos y Melánicos. Barberà del Vallès, Barcelona, España: Editorial Hispano Europea, S.A. - Esuperanzi, R. (Ed. 2ª en Castellano). (2005). Los Fringílidos. Jilgueros, Pardillos, Verderones y otros pájaros silvestres. L`Hospitalet, Barcelona, España: Hispano Europea, S.A. - Gómez, E. (2012).
Revista Nuestros Pájaros Nº 15. El Carpodaco Mejicano y sus mutaciones. Sevilla, España: Confederación Ornitológica Española. - Guerrero, M. (2015). Revista Ornitología Práctica Nº 69. ¿Existe la Eumelanina Bruna o Marrón en Canaricultura de color?. Godella, Valencia: Ed. Croma press, S.A. - Lerner, H. R. L., M. Meyer, H.F. James, M. Hofreiter, and R.C. Fleischer (2011). Multilocus resolution of phylogeny and timescale in the extant adaptive radiation of Hawaiian honeycreepers. Current Biology 21: 1838-1844. - López, H.A. (2009). Causa genética de la mutación bruno en el diamante mandarín (Taeniopygia guttata castanotis). Recuperado de http:// avesmagacin.com.ar/articulo/causa-genetica-dela-mutacion-bruno-en-el-diamante-mandarin-taeniopygia-guttata-castanotis/ - Rodríguez, J.M. y Borrajo, J.L. (2012) Estándar del Camachuelo Mejicano. Colegio de Jueces de la Federación Ornitológica Española. - Senar, J.C. (2004). Mucho más que plumas. Barcelona, España: A. Omedes. - Zuccon, D., R.
Prŷs-Jones, P.C. Rasmussen, and P.G.P. Ericson (2012). The phylogenetic relationships and generic limits of finches (Fringillidae). Molecular Phylogenetics and Evolution.


Texto: Roberto Jurado Medrán. Créditos fotográficos conservados en el artículo.