Texto: Francisco Manuel Reyes Sosa Fotos: Javier Mas
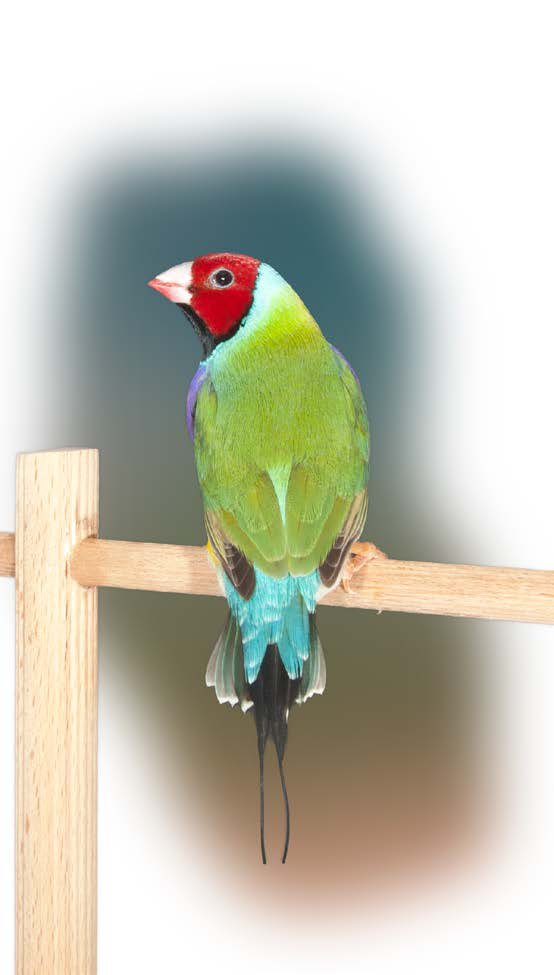
La teoría de la historia de la vida (lifehistory theory) predice que las hembras pueden alterar y controlar la inversión reproductiva (el esfuerzo que dedicaran a la reproducción) que aplicarán en cada intento de cría particular según la calidad de su pareja [1,2]. Cuando los machos de gran calidad no abundan, las hembras potencialmente pueden aceptar compañeros menos “agraciados” pero alterar estratégicamente su inversión relativa en hijos e hijas para mejorar la viabilidad de sus descendientes actuales o incluso reservar recursos para oportunidades futuras con parejas más interesantes [3]. Sin embargo, existen pocas evidencias experimentales que puedan soportar estas ideas de como las hembras son capaces de adaptar sus esfuerzos reproductivos según la calidad de los machos y esta afirmación continua siendo controvertida. Es muy difícil de demostrar esto, sin caer en el análisis de las decisiones de algunos individuos concretos (sin que pueda extraerse una regla o teoría general) o en contextos donde es difícil de predecir que ganancia neta tiene la decisión que cada hembra realiza. Aun así, muchos estudios se han centrado en las decisiones que toman las hembras según los rasgos masculinos como el color, la condición física, u otras variables ambientales o sociales continuamente cambiantes. Pero la verdad que son también innumerables los estudios que han sido incapaces de demostrar convincentemente o incluso predecir el valor adaptativo de las decisiones de las inversiones diferenciales que realizan las hembras en reproducción. No obstante quisiera detallaros uno publicado hace ahora unos años. En 2009, científicos australianos investigaron la respuesta reproductiva adaptativa empleando diamantes de Gould (Erythrura Gouldiae). Para mí, el diamante de Gould y sus mutaciones están en nivel superior, en cuanto a belleza, que muchos otros pájaros de jaula. Pues bien, el diamante de Gould sirvió para demostrar la capacidad que tienen las hembras de anticiparse y modular su esfuerzo reproductivo al predecir las condiciones físicas ligadas al sexo que provocan emparejamientos entre pájaros genéticamente incompatibles[4].
La calidad del macho es demostrable por el color de su cabeza que puede ser negra o roja según un gen ligado al sexo. Como se adelantaba en un artículo en esta revista[5] de ese mismo año, en la naturaleza se cuentan aproximadamente 3 individuos de cabeza negra por cada individuo de cabeza roja. Pero lo realmente llamativo es que esto ocurre a pesar que el color rojo es dominante sobre la cabeza negra. Existen numerosas hipótesis, quizás la que pueda tener más sentido es la de que son poblaciones de pájaros separadas que se han vuelto a juntar pero no quiero entrar en este tema. Por su comportamiento genético, las hembras son homocigóticas para este gen y por tanto su genotipo se expresa en su fenotipo (herencia ligada al sexo), mientras que los machos pueden ser homocigotos rojos o negros y heterocigotos rojos portadores de negro. El fenotipo de los machos rojos homocigotos y portadores es indistinguible[6]. Lo realmente llamativo es que en la naturaleza, los individuos son capaces de discriminarse entre sí demostrando su preferencia por ejemplares que tengan el mismo color de cabeza que ellos. En poblaciones silvestres, solo un 30% de las parejas son entre de individuos con cabeza de diferente color y esto es quizás debido a que escaseen machos del mismo color al que las hembras buscan[7]. En un interesantísimo artículo en esta misma revista, con el sugerente título de “Baile de máscaras”[8], Lorenzo Pérez detalla que esta discriminación tiene un fundamento genético en un mecanismo para reducir riesgos de incompatibilidades reproductivas al elegir parejas de su mismo color de cara. Esta selección precopulatoria por la pareja debe tener probablemente un sentido adaptativo. En cautiverio parece estar demostrado que las parejas de diferente color de cabeza (diferente genotipo) muestran una mayor mortalidad de crías4. Mis débiles experiencias con el diamante de Gould no permiten asegurar este hecho y según las referencias de otros criadores más experimentados a los que he contactado en la mayoría de los aviarios deportivos actuales no se han podido confirmar con la rotundidad experimental de estos estudios, que los cruces entre individuos de diferente color de cabezas sean perjudiciales. Quizás por el uso extendido de isabelitas del Japón como nodrizas o por la domesticidad de los pájaros actuales. La realidad es que los datos experimentales son claros y por ahora tendremos que darles validez. Particularmente, parece ser que desde el huevo hasta al alcanzar la madurez de las crías (160 días), las crías de parejas de individuos de diferente cabeza tienen una mortalidad de un 40,2% mayor en machos y un 83,8% mayor de hembras comparadas con parejas de individuos del mismo color de cabeza. La hipótesis de partida de este estudio por tanto es, si las hembras pueden predecir que el resultado del cruce con machos de otro color de cabeza puede resultar en peores condiciones físicas y mayores mortalidades deberían ser capaces de modular su esfuerzo reproductivo con estos compañeros. Así pues se emparejaron al azar 200 hembras (100 rojas y 100 negras) con machos rojos o negros (de genotipo conocido) en jaulas aisladas sin que pudieran ver a otras parejas[9]. Para controlar los efectos genéticos frente a los debidos a los parentales[10] se intercambiaron nidadas con toda la descendencia entre diferentes parejas (con uno o dos días desde la eclosión). Una vez que las crías se valen completamente por si mismas (60 días), se separaron al macho y a las crías de la hembra reproductora. Transcurridos 18 días desde la separación (para asegurar que no hay esperma del primer macho) se emparejó a la hembra con un segundo macho al azar pero de diferente color de cabeza al primero. Cada hembra criaría por tanto con dos machos, uno con la cabeza del mismo color y otro con la cabeza de diferente color. Como se había demostrado anteriormente, las hijas son más susceptibles de morir por incompatibilidades genéticas entre individuos de distinto color de cabeza, y como era de esperar, de los 1473 pollos obtenidos, la descendencia de parejas de distinto color estaba sesgada hacia mayor cantidad de machos (82%) mientras que la descendencia de parejas con el mismo color de cabeza apenas tenían sesgo (45,9% machos). Solo tuvieron un 20% de huevos claros sin ningún síntoma de desarrollo embrionario (a pesar de que fueron incubados), pero incluso incluyendo estos datos como hembras el desfase de machos seguía siendo significativamente mayor en las parejas de cabezas de diferente color. Para confirmar si las hembras en parejas con cabezas de diferente color eran capaces de producir más machos con independencia de los posibles efectos mortales resultantes de las incompatibilidades genéticas, hicieron unos experimentos muy ingeniosos. Pintaron de negro las cabezas de todos los machos de cabeza roja y los pusieron a criar con hembras de cabeza roja y hembras de cabeza negra. Los resultados fueron muy llamativos, los machos de cabeza roja pintada de negro emparejados con las hembras de cabeza negra generaron una prole que no tenía ninguna desviación significativa entre sexos (de los 94 polluelos, 55% machos) a pesar de ser genotípicamente de cabeza diferente a las hembras. Es interesante comprobar que el ratio de sexos de la progenie es similar al producido por machos de cabeza roja heterocigotos con hembras de cabeza roja (56%). Además, los cruces de hembras de cabeza roja con machos de cabeza roja pintada de negro produjeron significativamente más machos (de los 71 pollos el 72% fue macho) a pesar de ser genéticamente completamente compatibles. Estos experimentos únicamente pueden explicarse por efectos maternos más que por incompatibilidades genéticas o por coacción de los machos[11]. Por otro lado los científicos analizaron otros indicadores del estado de forma para encontrar que individualmente las hembras en parejas con diferente color de cabeza produjeron significativamente menos huevos (un promedio de 3,39 frente a 5,67 de parejas con el mismo color de cabeza). Las hembras de parejas con la cabeza de diferente color pusieron además huevos de menor tamaño que las hembras de parejas con el mismo color de cabeza. Como el volumen del huevo no está relacionado con el sexo de la cría resultante, esto indica una inversión diferencial tanto en hijos como en hijas. El tamaño del huevo sí que está relacionado con el estado de forma de la prole, así por ejemplo en diamantes de Gould existe una relación clara con el tamaño del huevo y la masa del pollo a los dos días de eclosionar. Además de controlar el tamaño de los huevos y el peso de los pollitos de las parejas del mismo y de diferente color de cabeza, los investigadores encontraron que los pollos (hijos tanto de parejas con la misma cabeza, como de parejas de diferente color de cabezas) que fueron criados por parejas nodrizas del mismo color de cabeza crecieron más rápidos que los pollos criados por parejas de diferente color de cabeza por tanto con independencia del origen genético de las crías. La diferencia en el peso (hasta un 9,1%) de los pollos entre nidadas criadas por parejas con el mismo o con diferente color de cabeza parece ser debido a que las hembras embuchaban más en las parejas con el mismo color de cabeza. Estos efectos se hicieron más claros cuando se manipuló el color de la cabeza de los machos. Hembras de cabeza negra emparejadas con machos de cabeza roja pintadas de negro (supuestamente genéticamente incompatibles) invertían más esfuerzo en la cría en comparación con las parejas de diferente color de cabeza sin manipular y más o menos lo mismo que parejas que tienen el mismo color de cabeza. Y justamente se obtuvo lo mismo con hembras rojas emparejadas con machos de cabeza roja pintada de negro. Éstas reducían su inversión y gasto en la cría comparadas con parejas de cabeza roja y de una manera similar a hembras de cabezas rojas con machos de cabeza negra. Quedan por tanto evidenciados los numerosos mecanismos precopulatorios y postcopulatorios mediante la manipulación de parámetros relativos a la inversión estratégica en su reproducción de los que disponen las hembras de Gould. Estos resultados demuestran la enorme capacidad que tienen las hembras de ajustar de forma adaptativa el sexo de la descendencia y de asignar más o menos recursos a la cría dependiendo de la calidad de su pareja.
Referencias [1] R. L. Trivers, D. E. Willard, Science 179, 90 (1973). [2] G. C. Williams, Am. Nat. 100, 687 (1966). [3] N. Burley, Evolution 40, 1191 (1986). [4] S. R. Pryke, S. C. Griffith, Evolution 63, 793 (2009). [5] Antonio Luis Rodríguez Barbero, Ornitología Práctica nº34 (2009) [6] H. N. Southern, J. Genet. 47, 51 (1945). [7] S. R. Pryke, S. C. Griffith, J. Evol. Biol. 20, 1512 (2007). [8] Lorenzo Pérez Rodríguez, Ornitología Práctica nº60 (2013) [9] Los materiales y métodos están disponibles en Science Online como material suplementario al artículo. [10] S. C. Griffith, I. P. F. Owens, T. Burke, Nature 400, 358 (1999). [11] W. R. Rice, Science 256, 1436 (1992). m
Texto: Francisco Manuel Reyes Sosa. Créditos fotográficos conservados en el artículo.